
Identification of the NHX gene family in Nicotiana benthamiana
-
摘要:
Na+/H+转运蛋白(NHX)基因家族在维持植物细胞离子稳态和响应非生物胁迫中发挥着重要作用。为了全面解析
NHX 基因家族在本氏烟草(Nicotiana benthamiana )中的组成与功能特征,本文以拟南芥(Arabidopsis thaliana )中已鉴定的NHX蛋白为参考,通过生物信息学方法系统鉴定与分析了本氏烟草NHX 基因家族成员。通过基于局部比对算法的搜索工具(BLAST)比对与基于隐马尔可夫模型(HMM)的结构域识别,最终获得10个包含NHX典型保守结构域(PF00999)的NbNHX 候选成员。进一步通过系统发育分析将该家族划分为液泡膜型(Vac)、内膜系统型(Endo)与质膜型(PM)3类亚家族。NbNHX蛋白理化性质、保守基序、跨膜结构域、信号肽预测及亚细胞定位信息揭示了NbNHX蛋白多定位于质膜、液泡及内质网,具备典型跨膜蛋白特征。共线性分析显示,NbNHX 家族成员间存在一定程度的基因重复关系;与拟南芥之间亦存在保守的共线性连线,提示其在进化过程中具有一定保守性。表达分析结果显示,NbNHX4 、NbNHX5 等基因在病毒片段刺激条件下显著上调,可能在胁迫响应或免疫反应中发挥关键作用。-
关键词:
- Na+/H+转运蛋白 /
- 本氏烟草 /
- NHX基因家族 /
- 生物信息学
Abstract:The Na+/H+ exchanger (NHX) gene family plays a vital role in maintaining cellular ion homeostasis and mediating plant responses to abiotic stresses. To comprehensively characterize the
NHX gene family inNicotiana benthamiana , this study employed known NHX proteins fromArabidopsis thaliana as references and conducted a genome-wide identification and analysis using bioinformatics approaches. A total of tenNbNHX candidate members containing the typical Na+/H+ exchanger domain (PF00999) was identified through basic local alignment search tool (BLAST) alignment and Hidden Markov model (HMM) domain scanning. Phylogenetic analysis categorized the NbNHX proteins into vacuolar-type (Vac), endosomal-type (Endo), and plasma membrane-type (PM) three subfamilies. Further investigations of physicochemical properties, conserved motifs, transmembrane domains, signal peptides, and subcellular localization revealed that NbNHX proteins exhibit typical transmembrane features and are predominantly localized to the plasma membrane, vacuole, and endoplasmic reticulum. Synteny analysis demonstrated segmental duplication events within theNbNHX family, as well as conserved syntenic relationships betweenN.benthamiana andA.thaliana , indicating evolutionary conservation. Transcriptome data analysis showed that genes such asNbNHX4 ,NbNHX5 were significantly upregulated under virus-derived fragment treatment, suggesting their potential roles in stress or immune responses.-
Keywords:
- Na+/H+exchanger /
- Nicotiana benthamiana /
- NHX gene family /
- bioinformatics
-
0. 引言
Na+/H+转运蛋白(Na+/H+ exchanger,NHX)是植物中一类重要的离子运输蛋白,通过Na+/H+交换作用调节细胞内Na+、K+和H+的平衡,从而维持细胞内的离子稳态和pH平衡[1]。这类基因家族广泛参与植物的生长发育和抗胁迫反应,包括盐胁迫、干旱胁迫、高温胁迫以及离子毒性等多种逆境条件下的应答[2]。NHX基因通过调节离子分布直接影响细胞渗透压、气孔开闭以及光合作用效率[3],对植物的生命活动至关重要。因此,系统鉴定植物NHX基因家族的成员并解析其功能具有重要的科学意义。目前,已有大量关于模式植物,如拟南芥(Arabidopsis thaliana)和水稻(Oryza sativa)中NHX基因的研究[4-5],不仅明确了NHX家族成员的分布规律,也揭示了其在非生物胁迫响应中的重要功能。如:拟南芥中的AtNHX1和AtNHX2已被证实在提高植物耐盐性方面发挥了关键作用[1, 6],其通过调节离子转运和细胞渗透压来帮助植物适应盐胁迫环境;水稻中OsNHX1的功能研究也表明其在维持细胞内K+/Na+比例中具有重要作用,进一步佐证了NHX基因在植物抗逆性机制中的重要地位。
本氏烟草(Nicotiana benthamiana)是一种广泛应用于分子植物病理学和基因功能研究的模式植物,具有基因组测序完整、遗传操作简便、生长周期短和转化效率高等优势[7]。作为一种在植物分子生物学研究中应用极其广泛的宿主材料,本氏烟草不仅在病毒诱导的基因沉默(virus-induced gene silencing,VIGS)技术中发挥重要作用,同时也是瞬时表达和亚细胞定位等实验的理想平台。目前针对本氏烟草NHX基因家族的研究仍较为薄弱,尤其缺乏系统的基因组层面的鉴定与功能分析。随着本氏烟草全基因组的发布及公共数据库的完善[8],借助现代生物信息学工具,如TBtools、MEME、HMMER和IQ-TREE等,可以实现对NHX基因家族成员的全面识别与功能预测,并结合系统发育树构建、基因结构分析、蛋白性质预测及表达模式挖掘等手段,深入分析其进化特征与潜在生物学功能[9]。
NHX是植物离子稳态调节机制中的关键蛋白之一[10-11],其借助H+-转运腺苷三磷酸水解酶(H+-adenosine triphosphatase,H+-ATPase)和H+-转运焦磷酸水解酶(H+-pyrophosphatase,H+-PPase)的质子泵活动在膜两侧建立H+电化学梯度,将细胞质中的Na+交换至液泡或胞外,起到降低胞内Na+浓度、减轻离子毒性的作用[12-14]。根据定位差异,NHX蛋白可分为液泡膜型(vacuolar membrane,Vac)、质膜型(plasma membrane,PM)和内膜系统型(endosomal,Endo)3类[15]。其中,Vac亚家族NHX主要调控细胞内渗透压和pH;PM亚家族NHX则更多参与胞外Na+的排出,维持细胞外环境的离子稳定性。此外,NHX蛋白在植物细胞的多种生理过程中扮演着重要角色。包括:调控气孔的开闭进而影响植物的蒸腾作用与光合作用效率[16];在根系中则调控离子的选择性吸收,有助于植物从土壤中获取必要营养元素[17]。NHX蛋白也被认为参与植物对盐、干旱、冷害等逆境胁迫的应答,是植物环境适应的重要遗传因子之一。
本研究围绕本氏烟草NHX(NbNHXs)基因家族开展系统性分析,结合生物信息学手段,从基因组层面系统挖掘NHX家族成员。以本氏烟草全基因组为基础,从蛋白序列中识别出典型的NHX家族成员,并对其基因结构、染色体分布、系统发育关系、蛋白相关性质与结构和保守基序进行全面分析。同时,结合转录组数据挖掘其在胁迫条件下的表达模式,推测其潜在功能。
1. 研究方法
1.1 NbNHXs基因的鉴定与系统发育树的构建
从烟草基因组与蛋白质数据库Nicomics(https://lifenglab.hzau.edu.cn/Nicomics/)下载本氏烟草的基因组文件(NbeHZ1_genome_1.0.fa)和蛋白质数据库文件(NbeHZ1_proteome_1.0.fa)[18]。首先,从拟南芥信息资源网站(https://www.arabidopsis.org/),获取拟南芥的8个AtNHXs家族蛋白序列,基于局部比对算法的搜索工具(basic local alignment search tool,BLAST),对获取的本氏烟草蛋白质数据库文件进行序列比对[19],初步筛选出候选NbNHX蛋白序列;其次,通过HMMER 3.4软件,对初筛获得的蛋白序列的隐马尔可夫模型(Hidden Markov model,HMM)比对[20],确认其是否含有NHX保守结构域(PF00999);再次,为提高结果的准确性,进一步通过美国国家生物技术信息中心(National Center for Biotechnology Information, NCBI)的保守域数据库(https://www.ncbi.nlm.nih.gov/cdd)、InterPro(https://www.ebi.ac.uk/interpro/)以及SMART数据库(https://smart.embl.de)对候选蛋白验证保守结构域,去除不含PF00999结构域的序列;最终,确定NbNHX基因家族成员数量,并进行后续鉴定。
为系统研究NHX蛋白的进化关系,本研究基于对数期望的多序列比较算法(multiple sequence comparison by log-expectation,MUSCLE)对所涉及的蛋白序列进行多序列比对[21],借助TrimAL工具自动修剪比对结果[22],以去除低品质或不可靠的区域。首先,对已鉴定的NbNHX蛋白序列进行家族内系统发育分析。采用IQ-TREE v3.0.0软件基于最大似然(maximum likelihood,ML)方法构建系统发育树[23],替代模型由ModelFinder自动选择为Q. PLANT+G4模型,其中,Q. PLANT为植物特异性经验替代矩阵;G4表示使用4类Gamma分布建模进化速率的变异。为提高分支置信度,设置Ultrafast Bootstrap重复次数为1 000,同时启用SH-aLRT检验,系统发育树构建后,结合结构域注释信息在TBtools中可视化展示[19],其中,结构域注释信息来源于NCBI的保守域数据库,并根据保守结构域的起止位置进一步可视化分析。
为深入探究本氏烟草NHX家族在植物中的系统发育位置,进一步整合杨树(Populus trichocarpa)、拟南芥和番茄(Solanum lycopersicum)中已报道的NHX蛋白序列,与本氏烟草NbNHX成员共同构建跨物种系统发育树。同样采用IQ-TREE v3.0.0软件构建ML树,Q. PLANT+G4为蛋白质替代模型。为评估系统发育树结构的可靠性,设置ultrafast bootstrap重复次数为5 000次,其余参数均保持默认设置。最后,利用iTOL在线工具(https://itol.embl.de/)对所构建的系统发育树进行可视化[24],明确不同物种间NHX家族成员的进化关系与分支归类。
1.2 NbNHXs保守基序、结构域及蛋白质特征分析
通过ExPASy网站(https://web.expasy.org/protparam/)预测本氏烟草NbNHX蛋白的理化性质,包括氨基酸残基数量、分子质量、理论等电点(isoelectric point,pI)、不稳定指数、脂肪族指数、蛋白质疏水性(grand average of hydropathicity,GRAVY)等[25];利用DNAMAN10.0进行序列多重比对;利用MEME在线工具(https://meme-suite.org/tools/meme)保守基序(motif)分析NbNHX蛋白[26],以识别其潜在的功能区域;借助WoLF PSORT网站(https://wolfpsort.hgc.jp/)预测蛋白质的亚细胞定位信息[27],WoLF PSORT基于氨基酸序列特征,通过加权的k-最近邻(k-nearest neighbor,kNN)算法预测,综合考虑已知的信号肽、定位信号基序以及氨基酸组成等特征,因此其输出结果中包含可能定位的得分,得分高者代表该定位的相对可能性更大。为验证预测结果的可靠性,本研究选取NbNHX8基因为实验对象,将该基因片段插入至植物表达载体pCAMBIA1300-35S::YFP中,构建pCAMBIA1300-35S::NbNHX8-YFP融合表达载体。以农杆菌(Agrobacterium tumefaciens)GV3101为介导菌株,通过叶片浸润法将该构建体瞬时转化至本氏烟草成熟叶片中。空载载体pCAMBIA1300-35S::YFP为对照。渗透后植物于暗条件下培养24 h,随后置于常光下培养36~48 h后取样。采用Carl Zeiss公司生产的LSM 780型共聚焦激光扫描显微镜观察黄色荧光蛋白(yellow fluorescent protein,YFP)的荧光信号分布。
为进一步解析蛋白质的结构特征:首先,使用SignalP 6.0平台(https://services.healthtech.dtu.dk/services/SignalP-6.0/)预测其信号肽区域[28],并采用transmembrane hidden markov model(TMHMM)算法(https://dtu.biolib.com/DeepTMHMM)预测跨膜结构域的数量与分布情况[29];其次,利用Prabi(https://npsa-pbil.ibcp.fr/cgi-bin/npsa_automat.plpage=npsa_sopma.html)预测NbNHX蛋白的二级结构,获得α-螺旋、β-折叠、β-转角和无规则卷曲的比例信息[30];最后,采用SWISS-MODEL(https://swissmodel.expasy.org/)预测蛋白质三维结构[31],为后续功能研究提供结构基础。
1.3 NbNHXs的染色体定位、基因结构与启动子区域的顺式作用元件分析
从Nicomics数据库中下载包含本氏烟草基因注释信息的GFF文件(NbeHZ1_annotation_1.0.gff3)[18],并利用TBtools对鉴定的NbNHX基因染色体定位与基因结构可视化展示。根据注释文件信息,将起始密码子上游2 000 bp的区域提交至PlantCare(https://bioinformatics.psb.ugent.be/webtools/plantcare/html/)预测启动子区域的顺式作用元件[32],利用TBtools可视化呈现预测结果。
1.4 NbNHXs的共线性分析与比率计算
基于获得的相关数据,开展本氏烟草基因组内部以及与拟南芥之间的共线性分析。使用MCScanX工具(https://chibba.pgml.uga.edu/mcscan2/)识别同源基因对并构建共线区段[33],通过TBtools可视化呈现分析结果,以展示NbNHX基因在染色体上的分布规律。为进一步探讨共线基因对在进化过程中所受选择压力,使用TBtools计算非同义替代率(Ka)、同义替代率(Ks)以及二者的比值(Ka/Ks)[34],以判断各基因对是否经历正向选择或者负向选择,即Ka/Ks < 1表示负向选择,Ka/Ks > 1表示正向选择。
1.5 NbNHXs蛋白互作网络预测
使用STRING12.0(https://string-db.org/)数据库预测NbNHXs蛋白的相互作用网络[35],并且选定模式植物拟南芥为物种参数,互作置信度分数阈值选择0.700,其他设置保持默认选项,得到与NbNHXs蛋白互作的网络图。
1.6 NbNHXs基因的表达模式分析
从Nicomics公共数据库中下载本氏烟草的转录组测序数据,来源于研究烟草花叶病毒(Tobacco mosaic virus,TMV)P50蛋白介导免疫反应的实验体系[36]。该数据集包含P50-Ob和P50-U1共2组样本。P50-Ob组,构建体来源于TMV普通株,其表达不会诱导本氏烟草产生明显的免疫反应;P50-U1组,为免疫诱导组,构建体来自TMV U1株系,其表达可有效激发植物的先天免疫反应。实验设计中,每组均设置3个生物学重复,以确保统计可靠性。研究者通过农杆菌介导瞬时表达系统将P50-Ob与P50-U1组构建体分别导入本氏烟草叶片中,48 h后取样进行核糖核酸(ribonucleic acid,RNA)提取与高通量转录组测序。并利用TBtools软件可视化分析NbNHX基因家族成员的表达模式,绘制表达热图,展示NbNHX家族成员在不同TMV P50诱导条件下的表达差异。该结果可为进一步探究NbNHX基因在病毒响应过程中的潜在功能提供表达依据。
2. 研究结果
2.1 NbNHXs基因的鉴定与系统发育树的构建
将拟南芥中已报道的8个AtNHX蛋白序列用作查询序列,在本氏烟草的蛋白质数据库中比对BLAST,调整参数(e < 1×10⁻⁵)。利用InterPro、NCBI的保守域数据库与SMART数据库验证结构域,仅保留包含PF00999的序列,最终鉴定出了10个结构域完整且保守性较高的NbNHX蛋白。所有蛋白均含有NHX家族特征性的阿米洛利结合位点,表明其在结构功能上具有典型的NHX类交换蛋白特征。系统发育树分析结果如图 1所示。将鉴定出的10个NHX家族蛋白依次命名为NbNHX1~NbNHX10,10个成员均含有典型的PF00999。
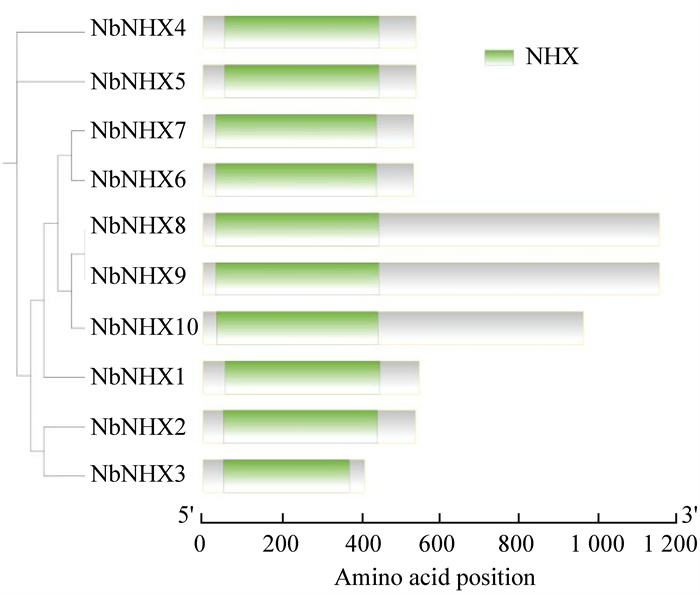 图 1 NbNHX蛋白的系统发育树与相关结构域注:NbNHX为本氏烟草Na+/H+转运蛋白(NHX)家族成员;数字为蛋白编号。Fig. 1 phylogenetic tree and associated domains of NbNHX proteins
 下载:
全尺寸图片
不同物种的NHX基因家族进化树如图 2所示。10个NbNHX蛋白分布于3个系统进化分支。NbNHX1~NbNHX5蛋白归属于Vac亚家族,NbNHX6和NbNHX7蛋白归属于Endo亚家族,NbNHX8~NbNHX10蛋白归属于PM亚家族。其中,Endo与Vac类成员在系统发育树中聚合于接近根部的位置,显示出2类基因在进化上的高度相似性。这2类NHX蛋白可能源自一个共同的祖先基因,随后通过基因复制与功能分化, 最终形成不同亚家族。
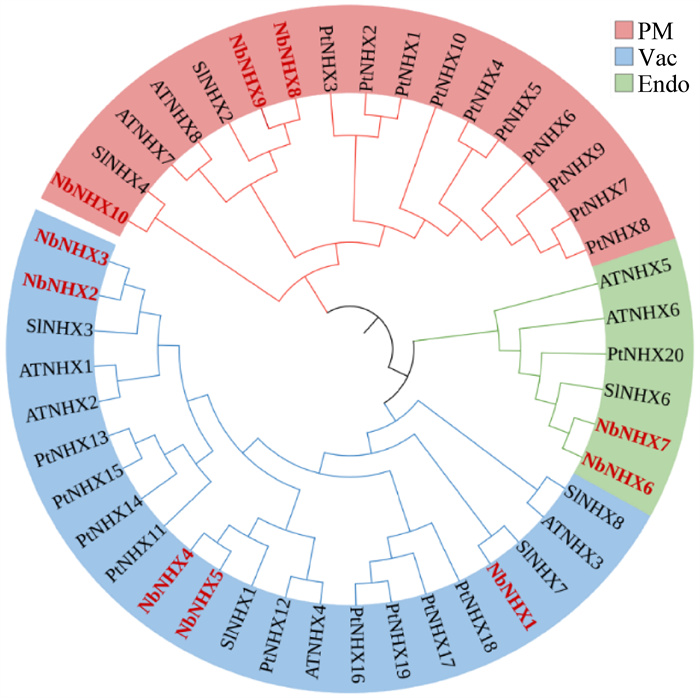 图 2 不同物种的NHX基因家族进化树注:Vac为液泡膜型;PM为质膜型;Endo为内膜系统型。Fig. 2 phylogenetic tree of NHX gene families from different species下载:
全尺寸图片
2.2 NbNHXs保守基序、结构域及蛋白质特征分析
本氏烟草中NbNHX家族蛋白的理化性质列于表 1。各蛋白质的长度分布为407~1 154个氨基酸残基,分子质量为44 868.06~128 173.15 Da,其中NbNHX3的分子质量最小,NbNHX8最大。理论pI为5.47~8.67,其中:NbNHX4与NbNHX5的pI=8.67,为碱性蛋白;其余成员均为酸性或接近中性的蛋白质。根据不稳定指数的预测结果,NbNHX家族成员的指数值为30.10~42.43,其中:NbNHX6、NbNHX7的不稳定指数均 > 40.00,属于不稳定蛋白;其余蛋白质的不稳定指数均 < 40.00,属于较稳定的蛋白。脂肪族指数为98.61~125.53,其中:NbNHX3的脂肪族指数最高,推测具有较强的热稳定性;NbNHX6与NbNHX7相对较低,推测其热稳定性较弱。所有成员的亲水性平均系数均为正值,表明所有NbNHX蛋白呈现疏水性特征。
表 1 NbNHX家族的蛋白质信息及理化性质Table 1 protein information and physicochemical properties of the NbNHX family蛋白质 氨基酸数量 分子质量/Da 等电点 不稳定指数 脂肪族指数 亲水性平均系数 NbNHX1 546 60 025.24 6.89 30.10 114.40 0.518 NbNHX2 536 58 783.99 6.67 36.89 115.32 0.589 NbNHX3 407 44 868.06 6.36 32.04 125.53 0.848 NbNHX4 538 59 252.61 8.67 37.79 112.68 0.570 NbNHX5 538 59 316.65 8.67 38.55 111.77 0.563 NbNHX6 532 58 472.45 5.66 42.43 98.61 0.420 NbNHX7 532 58 442.43 5.66 42.43 98.80 0.424 NbNHX8 1 154 128 173.15 5.95 38.45 101.77 0.053 NbNHX9 1 154 128 028.01 6.13 39.24 101.34 0.041 NbNHX10 961 105 970.13 5.47 35.88 106.85 0.275 本氏烟草NHX基因家族氨基酸序列多重比对结果如图 3所示,其氨基酸相似性为35.93%。NbNHX8、NbNHX9及NbNHX10较其他NHX家族成员明显具有更长的氨基酸序列,主要表现为C端区域存在大量额外氨基酸残基。这些延长区域在其他NbNHX家族成员中并不保守,可能赋予其独特的结构或调控功能。
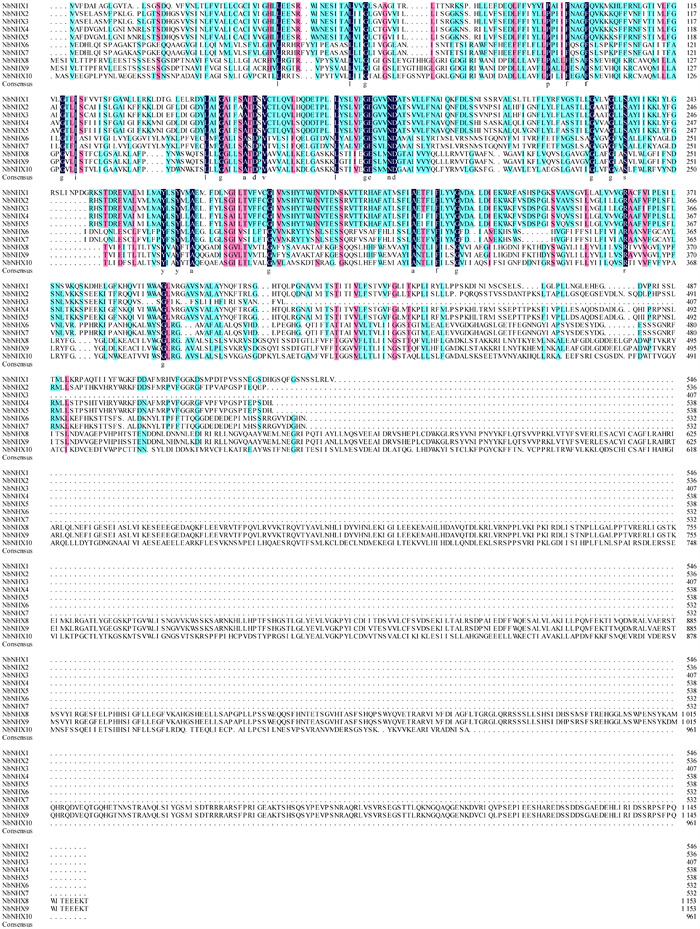 图 3 本氏烟草NHX基因家族氨基酸序列多重比对结果注:不同颜色显示不同的同源性,黑色=100%、粉色≥75.00%、蓝色≥50.00%。Fig. 3 multiple sequence alignment of NHX gene family amino acid sequences in Nicotiana benthamiana下载:
全尺寸图片
NbNHX蛋白的二级结构特征预测结果列于表 2。大部分蛋白的二级构象主要以α-螺旋和无规卷曲为主,同时含有少量延伸链与β-转角结构元件。结果显示,α-螺旋构象在整体结构中所占百分比为49.25%~61.08%,为最主要的构象;β-转角结构比例相对较低,集中在2.79%~4.18%;无规卷曲的百分比为23.62%~33.77%;延伸链的含量为9.10%~14.74%。整体结构组成表明不同NbNHX蛋白之间的二级结构差异相对较小,均呈现出以α-螺旋结构为主、其他构象共同存在的特征。这种结构特征可能与NHX蛋白跨膜运输功能相关,为其在膜结构中的稳定嵌入和功能执行提供支持。
表 2 NbNHXs蛋白质的二级结构百分比预测Table 2 percentage prediction of secondary structure of NbNHX proteins蛋白质 基因序号 α-螺旋/% β-转角/% 无规卷曲/% 延伸链/% NbNHX1 Nbe02g02180 50.73 3.30 32.23 13.74 NbNHX2 Nbe01g12080 49.25 3.17 33.77 13.81 NbNHX3 Nbe02g11040 54.79 4.18 26.29 14.74 NbNHX4 Nbe10g08310 53.35 2.79 30.11 13.75 NbNHX5 Nbe17g15530 52.97 2.97 29.74 14.31 NbNHX6 Nbe03g02870 54.70 3.01 28.20 14.10 NbNHX7 Nbe04g23840 53.20 3.20 29.14 14.47 NbNHX8 Nbe11g15010 60.23 3.03 27.64 9.10 NbNHX9 Nbe12g19730 58.32 2.86 28.94 9.88 NbNHX10 Nbe08g21990 61.08 3.54 23.62 11.76 NbNHX家族成员的三维结构如图 4所示。10种成员均富含α-螺旋结构,与二级结构预测符合且NbNHX家族成员均为跨膜蛋白。从整体结构可见,所有NbNHX蛋白均以α-螺旋为主要构象,并在蛋白空间结构中形成多个紧密排列的跨膜螺旋区,呈现出典型的膜蛋白拓扑特征。
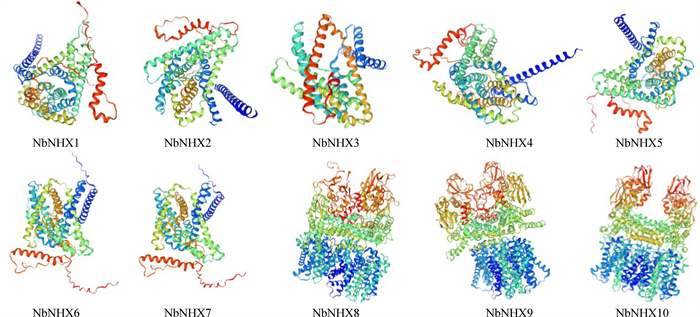 图 4 本氏烟草NHX基因家族蛋白质三维结构Fig. 4 predicted three-dimensional structures of NHX family proteins in Nicotiana benthamiana下载:
全尺寸图片
NbNHX蛋白保守基序预测结果如图 5所示。每个蛋白中均识别到9~15个保守基序(motif),说明NbNHX家族整体具有丰富而复杂的结构组成,不同蛋白间motif的类型、数量及分布存在差异。Vac亚家族成员(NbNHX1~NbNHX5)包含的motif数量、种类相对一致,分布较为集中,motif排列顺序高度保守;Endo亚家族成员(NbNHX6和NbNHX7)与Vac亚家族成员motif类型具有差异;PM亚家族成员(NbNHX8~NbNHX10)则表现出明显不同的motif模式,间距较大,整体分布较为分散。由此可见,同一亚家族内的NbNHX成员在motif的种类与数量上具有较高的一致性,但在不同亚家族之间,motif的组成与排列模式则存在一定程度的差异。
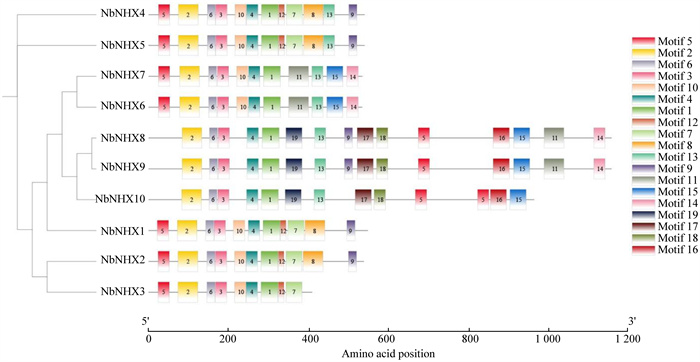 图 5 NbNHX蛋白的保守基序Fig. 5 conserved motif analysis of NbNHX proteins下载:
全尺寸图片
NbNHX蛋白信号肽预测结果显示,10个NbNHX家族成员均不含N端信号肽,提示该家族蛋白可能通过非经典分泌途径进入膜系统。10种蛋白的跨膜结构预测显示(图 6),所有蛋白均表现出明显的跨膜结构特征,具有多个穿膜螺旋,支持其作为跨膜蛋白的功能特征。
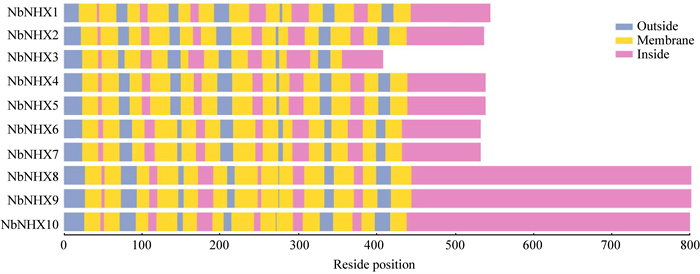 图 6 10种NbNHX蛋白的跨膜结构示意Fig. 6 predicted transmembrane structure schematics of ten NbNHX proteins下载:
全尺寸图片
NbNHX家族成员的亚细胞定位预测结果列于表 3。从预测得分来看,所有NbNHX蛋白的质膜得分均较高,范围为5~13,其中:NbNHX6与NbNHX7的质膜预测得分最高,均为13;NbNHX8~NbNHX10的质膜得分次之,均为12;NbNHX1~NbNHX5的质膜得分为5~9。除质膜外,大部分基因在其他膜性细胞器中也显示出较低得分。NbNHX家族成员主要定位于质膜,其次为液泡和内质网等膜性细胞器。整体来看,NbNHX蛋白在亚细胞层面上具有多样化定位,可能与细胞内的功能分工密切相关。
表 3 NbNHX蛋白的亚细胞定位预测得分Table 3 predicted subcellular localization scores of NbNHX proteins基因名称 细胞核 高尔基体 线粒体 细胞质 质膜 液泡 内质网 NbNHX1 — 1 — — 7 5 1 NbNHX2 — 1 1 1 6 4 1 NbNHX3 — 2 1 — 5 4 2 NbNHX4 — — 1 — 9 3 1 NbNHX5 — — 1 — 9 3 1 NbNHX6 — — — 1 13 — — NbNHX7 — — — 1 13 — — NbNHX8 1 — — — 12 1 — NbNHX9 1 — — — 12 1 — NbNHX10 — — — — 12 1 1 注:—为无数据。 选取NbNHX8基因验证预测结果的可靠性如图 7所示。实验组NbNHX8-YFP的荧光信号沿细胞边缘分布,形成清晰的“勾边”状结构,与叶绿体红色自发荧光信号无明显重叠,显示NbNHX8蛋白主要定位于质膜或液泡膜等膜性结构。相比之下,对照空载载体在细胞质与细胞核中分布较为均匀,无边界荧光信号,说明NbNHX8-YFP的膜定位为特异性信号而非YFP自身性质所致。结合亚细胞定位预测结果,NbNHX8在质膜的预测得分较高,与实验观察结果一致。表明NbNHX8为膜定位蛋白,可能在质膜上发挥离子交换与应答调控等功能。
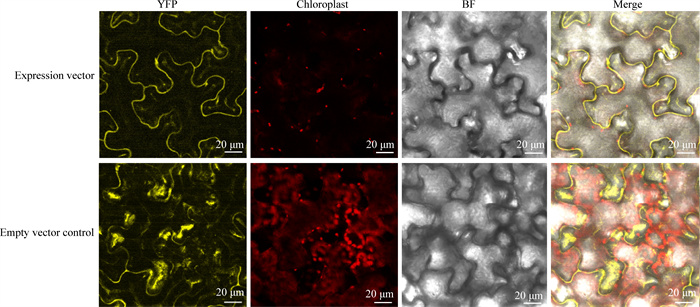 图 7 NbNHX8蛋白在本氏烟草表皮细胞中的亚细胞定位注:YFP为黄色荧光;Chloroplast为叶绿体自发荧光;BF为明场像;Merge为荧光与明场合并图像。Fig. 7 subcellular localization of NbNHX8 in Nicotiana benthamiana epidermal cells下载:
全尺寸图片
2.3 NbNHXs的染色体定位、基因结构与启动子区域的顺式作用元件分析
NbNHX家族基因的染色体位置定位分析结果如图 8所示。共鉴定的10个NbNHX基因分布于9条不同染色体上,每条染色体上分布1~2个基因,整体呈现出较为分散的分布特征,染色体编号以Chr与数字组合。其中:Chr02上定位了2个基因,为NbNHX1、NbNHX3;Chr01、Chr03、Chr04、Chr08、Chr10、Chr11、Chr12和Chr17上各定位了1个基因,分别为NbNHX2、NbNHX6、NbNHX7、NbNHX10、NbNHX4、NbNHX8、NbNHX9和NbNHX5。
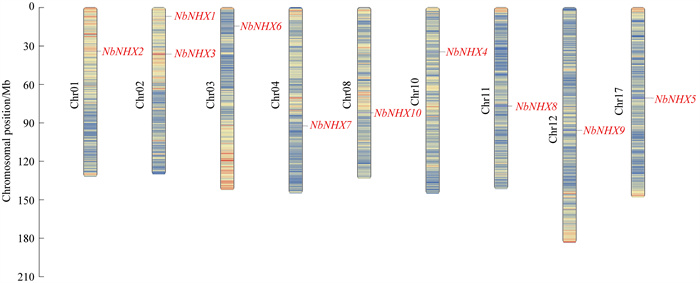 图 8 NbNHXs基因在染色体上的位置注:Chr01~Chr17为本研究中依据参考基因组注释文件设定的染色体编号。Fig. 8 distribution of NbNHX genes on chromosomes下载:
全尺寸图片
NbNHX家族基因的编码区(coding sequence,CDS)与非翻译区(untranslated region,UTR)组成及长度分布如图 9所示。10个NbNHX基因的编码区结构存在差异。其中:NbNHX8和NbNHX9基因CDS区域分布较长;而NbNHX1、NbNHX3和NbNHX4等基因的CDS区域较短,结构相对紧凑;大部分基因在5′与3′端均具有较完整的UTR区段。
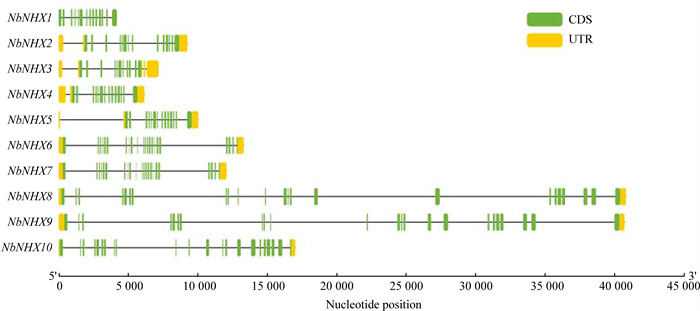 图 9 NbNHXs基因的编码区注:CDS为编码区;UTR为非翻译区。Fig. 9 Gene structure of NbNHX genes下载:
全尺寸图片
6类典型的顺式作用元件分析结果如图 10所示。主要包括生长素响应元件、防御与胁迫响应元件、脱落酸响应元件、禽髓母细胞瘤病毒癌基因同源物(v-myb avian myeloblastosis viral oncogene homolog,MYB)结合位点(参与干旱诱导和光响应)及水杨酸响应元件。NbNHX家族中的基因均含有多种顺式作用元件,其中,脱落酸响应元件、防御与胁迫响应元件等在多个NbNHX启动子区中高频出现,表明其可能参与对干旱、盐胁迫和病原攻击等多种非生物及生物胁迫的调控。尤其是NbNHX1、NbNHX2和NbNHX3等基因富含多个胁迫相关元件,推测其在胁迫响应中的功能可能较为突出。
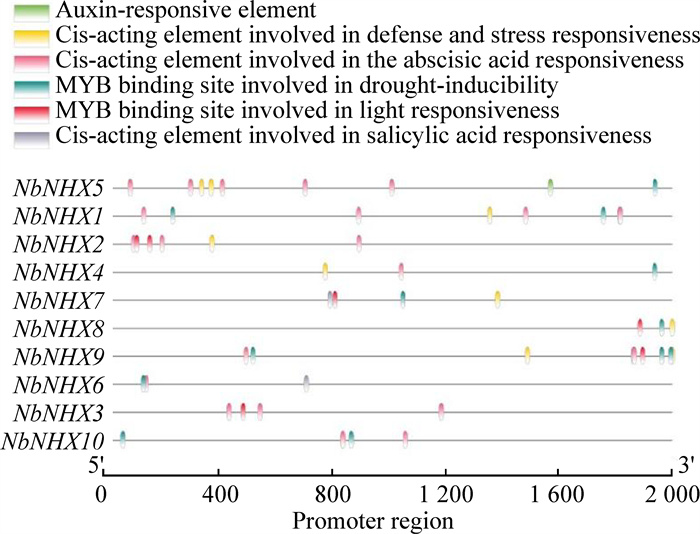 图 10 NbNHXs启动子区域的顺式作用元件Fig. 10 analysis of cis-acting elements in the promoter regions of NbNHX genes下载:
全尺寸图片
2.4 NbNHXs的共线性分析与比率计算
多个NHX基因家族成员的共线性分析结果如图 11所示,颜色深度表示该区域基因分布密集度。部分家族成员之间存在明显的同源共线性关系,其中NbNHX1与NbNHX2、NbNHX4与NbNHX5、NbNHX6与NbNHX7、NbNHX8与NbNHX9分别形成共线性连接,每条连线连接的基因对通常拥有较高的序列相似度,这表示相关家族成员的基因间存在明显的同源性。
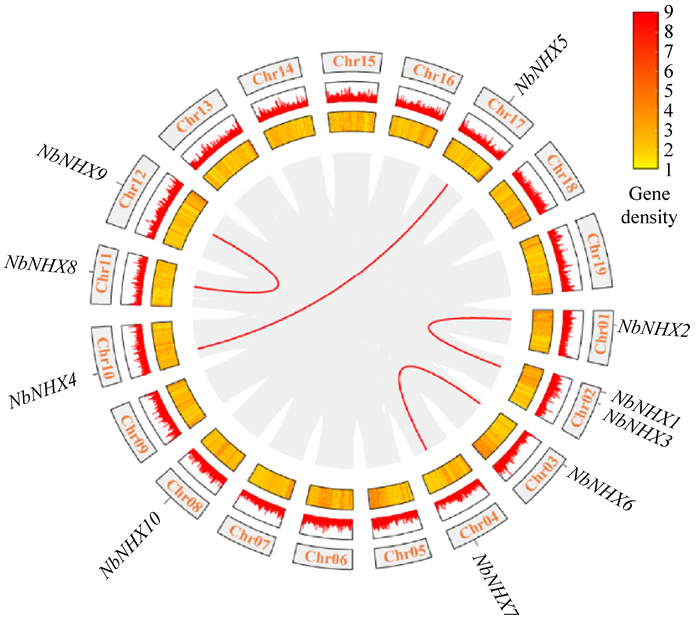 图 11 NbNHXs的共线性分析Fig. 11 synteny analysis of NbNHX genes下载:
全尺寸图片
计算图 11中所连线的基因对之间的Ka和Ks值,相关结果列于表 4。NbNHX2和NbNHX3、NbNHX6和NbNHX7的Ka/Ks比值较低,分别为0.126 14、0.103 23,比值均 < 1,暗示其可能在进化过程中经历了负向选择。然而,NbNHX4和NbNHX5、NbNHX8和NbNHX9基因对之间无法计算Ka/Ks值,这可能是由于二者间缺少有效的同义突变数据或基因序列的缺失,导致无法有效分析。
表 4 NbNHXs间突变率比较Table 4 comparison of mutation rates among NbNHX genes基因1 基因2 Ka Ks Ka/Ks NbNHX2 NbNHX3 0.015 54 0.123 23 0.126 14 NbNHX4 NbNHX5 0.872 10 — — NbNHX6 NbNHX7 0.007 26 0.070 36 0.103 23 NbNHX8 NbNHX9 1.336 50 — — 注:Ka为非同义突变率;Ks为同义突变率。 本氏烟草与拟南芥之间NHX家族的共线性分析如图 12所示。本氏烟草染色体与拟南芥染色体之间存在多条共线性连线,尽管本氏烟草和拟南芥在系统发育上存在一定距离,但NHX基因家族成员之间具有一定同源性,表明该家族在植物进化过程中具有一定程度的保守性。
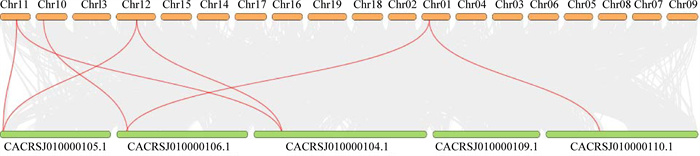 图 12 AtNHXs与NbNHXs的共线性分析注:CACRSJ010000105.1、CACRSJ010000106.1等序列编号为该基因组装版本中尚未锚定至染色体的scaffold/contig序列。Fig. 12 comparative synteny analysis between AtNHX and NbNHX gene families下载:
全尺寸图片
2.5 NbNHXs蛋白互作网络预测
本氏烟草NHX家族成员的同源蛋白比对分析结果表明,多个NbNHX基因与拟南芥的相同NHX成员高度同源。NbNHX2与经典的液泡定位AtNHX1对应,提示其在维持Na+/H+平衡方面可能为关键成员;NbNHX1、NbNHX3、NbNHX4和NbNHX5对应到AtNHX2,可能在胚胎发育和根尖生长的过程中发挥重要作用;NbNHX6和NbNHX7则与AtNHX6同源,可能参与内质网运输或膜系统调控环节;NbNHX8、NbNHX9和NbNHX10均映射到AtNHX7,其为质膜Na+外排通道的核心蛋白,因此这些成员在盐胁迫响应中或具有特化功能。
对拟南芥NHX家族中NHX1、NHX2、NHX6与NHX7共4个成员构建的高度互作网络如图 13所示。4个成员之间均存在多条连接关系,表明彼此之间均存在多类型的互作证据,包括文本挖掘、同源性等。这些蛋白可能在植物离子稳态调节、胞内pH维持及逆境响应等过程中具有较强的功能协同与调控关系。结合同源性分析推测,本氏烟草中对应的NbNHX成员亦可能存在类似互作网络。
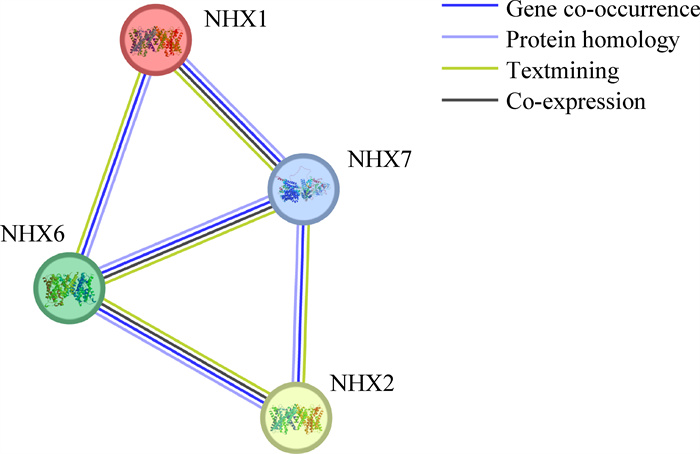 图 13 NbNHXs对应的AtNHXs家族蛋白互作图Fig. 13 predicted protein-protein interaction network between NbNHX proteins and their corresponding AtNHX family proteins下载:
全尺寸图片
2.6 NbNHXs基因的表达分析
经携带TMV p50区段不同基因片段的农杆菌处理后,NbNHX基因家族的表达情况如图 14所示。不同处理条件下,p50-U1组可被植物体内的抗病基因识别并激活免疫反应,而p50-Ob组则不会引发类似反应。NbNHX4和NbNHX5在能激发免疫反应的条件下显著上调,表达水平达到近70单位。因此,这2个基因可能在免疫反应启动过程中发挥积极作用。整体来看,该家族部分成员对外源信号刺激具有较强的表达响应,可能在抗性相关信号传导或细胞防御机制中发挥关键功能。
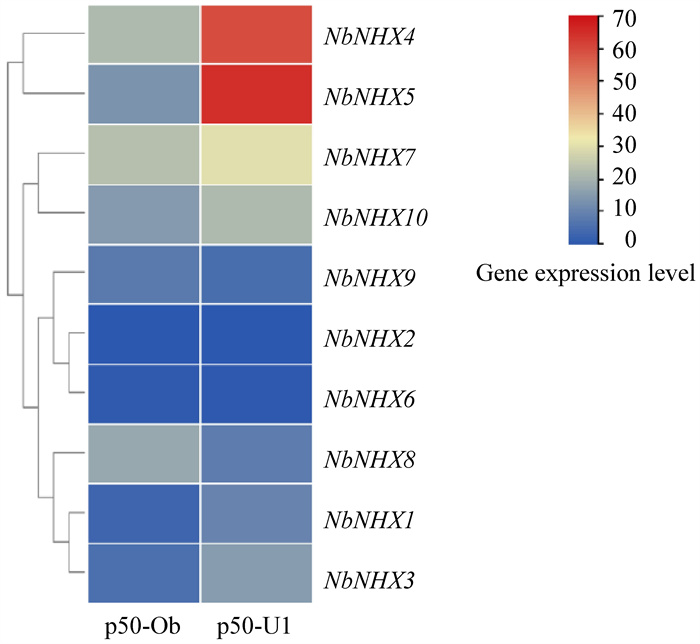 图 14 NbNHXs的表达分析注:p50-Ob为TMV普通株P50蛋白处理组;p50-U1为TMV U1株系P50蛋白免疫诱导组。Fig. 14 expression profiles of NbNHX genes下载:
全尺寸图片
3. 讨论
通过对本氏烟草NHX基因家族的系统鉴定与功能预测,初步揭示了该家族成员的进化关系、结构特征及其潜在功能。共鉴定出10个包含典型PF00999的家族成员,并据系统发育关系将其归类为Vac、Endo与PM共3类亚家族,该划分与拟南芥、番茄等模式植物中NHX家族的分类结果一致[15]。系统发育结果表明NbNHX蛋白在与拟南芥、番茄和杨树的比对中,也呈现出明显的保守性与分支归类,反映出NHX家族在高等植物中具有较为稳定的进化趋势。蛋白质的理化性质和结构预测结果显示所有NbNHX蛋白均具有跨膜结构特征[25],并以α-螺旋为主要构象,说明其可能广泛参与膜相关离子转运过程。尤其是NbNHX8、NbNHX9和NbNHX10具有较长的C端区域,可能赋予其独特的调控功能,这与在番茄或拟南芥中观测到的PM亚家族NHX蛋白功能多样性相吻合。保守基序分析表明不同亚家族之间在结构域组成和motif分布上的差异[26],暗示其可能承担着不同的功能。如: Vac亚家族成员多定位于液泡,可能参与盐离子在液泡中的隔离与调节;而PM亚家族则更可能与质膜Na+/H+交换直接相关,参与胞外离子浓度调控;Endo与Vac亚家族成员在motif特征上较为接近,进一步支持其共同进化起源的假设[15]。染色体定位及共线性分析则揭示了NbNHX家族存在一定的基因重复事件,且部分基因与拟南芥的NHX成员存在共线关系,说明该家族可能在远古多倍化事件中得以保留,并在不同物种中演化出类似功能。值得注意的是,启动子分析显示多个NbNHX成员富含与脱落酸、水杨酸、胁迫响应等相关的顺式作用元件[32],提示其表达可能受多种激素与信号通路调控。
本氏烟草是植物-病毒互作研究中的重要模式寄主[7]。尽管已有研究初步揭示了NHX基因在调控离子稳态与细胞pH方面的基础功能,但其在本氏烟草这一重要模式植物,特别是其作为病毒寄主的独特生物学背景下的生理角色,仍有待深入挖掘。本氏烟草对多种病毒,如烟草花叶病毒和马铃薯X病毒,表现出独特的敏感性[37],是研究植物-病毒互作的理想体系。这种独特的特性使其成为研究病毒致病机制及植物免疫反应的理想实验体系。表达谱数据显示,在使用病毒片段处理后,NbNHX4和NbNHX5在可激发免疫反应的处理条件下表达水平显著升高[36],提示其在植物免疫激活过程中可能发挥核心作用。因此,NHX蛋白除参与离子稳态外,或还在病原触发的信号传导网络中发挥积极作用。结合本氏烟草对病毒的高敏感性以及NbNHX蛋白的亚细胞定位推测,NbNHX可能通过调控膜系统离子通量、囊泡运输及膜电位变化,进而影响细胞内防御信号(如Ca2+及活性氧)动态,参与抗病毒免疫反应的调控过程。
结合蛋白互作网络预测显示多数NbNHX成员与拟南芥NHX家族中已知功能明确的蛋白具有高度同源性[35],并在网络中显示出紧密互作关系。这表明本氏烟草中的NbNHX蛋白可能通过协同作用参与胞内pH调控、Na+外排及膜系统功能维持等过程,为其在非生物胁迫和免疫调节中的作用提供了分子基础。
4. 结束语
本研究围绕本氏烟草NHX基因家族开展了较为系统的生物信息学分析与功能预测,揭示了其在结构组成、进化关系与潜在功能方面的系统特征。然而,本研究仍存在一定局限性。文章中的分析主要基于计算预测,缺乏针对具体生理作用的实验验证。未来的研究可结合分子生物学与细胞学方法,通过基因功能验证,如过表达、RNA干扰或clustered regularly interspaced short palindromic repeats/CRISPR-associated protein9(CRISPR/Cas9)敲除,以及离子通量检测等手段,深入解析NbNHX成员在离子稳态维持与逆境信号传导中的功能特性。此外,可进一步拓展研究至不同非生物与生物胁迫条件下的表达调控网络,探讨其在盐、干旱及病原胁迫等复杂环境中的具体作用机制,未来的深入研究将为揭示植物离子稳态调控机制及抗逆性分子育种提供重要的基因资源与理论支撑。
© The editorial department of Journal of Capital Normal University (Natural Science Edition) 2025.This is an open access article under the CC BY-NC-ND 4.0 license (https://creativecommons.org/licenses/by-nc-nd/4.0/). -
图 1 NbNHX蛋白的系统发育树与相关结构域
注:NbNHX为本氏烟草Na+/H+转运蛋白(NHX)家族成员;数字为蛋白编号。
Fig. 1 phylogenetic tree and associated domains of NbNHX proteins
下载:
全尺寸图片
图 2 不同物种的NHX基因家族进化树
注:Vac为液泡膜型;PM为质膜型;Endo为内膜系统型。
Fig. 2 phylogenetic tree of NHX gene families from different species
下载:
全尺寸图片
图 3 本氏烟草NHX基因家族氨基酸序列多重比对结果
注:不同颜色显示不同的同源性,黑色=100%、粉色≥75.00%、蓝色≥50.00%。
Fig. 3 multiple sequence alignment of NHX gene family amino acid sequences in Nicotiana benthamiana
下载:
全尺寸图片
图 4 本氏烟草NHX基因家族蛋白质三维结构
Fig. 4 predicted three-dimensional structures of NHX family proteins in Nicotiana benthamiana
下载:
全尺寸图片
图 5 NbNHX蛋白的保守基序
Fig. 5 conserved motif analysis of NbNHX proteins
下载:
全尺寸图片
图 6 10种NbNHX蛋白的跨膜结构示意
Fig. 6 predicted transmembrane structure schematics of ten NbNHX proteins
下载:
全尺寸图片
图 7 NbNHX8蛋白在本氏烟草表皮细胞中的亚细胞定位
注:YFP为黄色荧光;Chloroplast为叶绿体自发荧光;BF为明场像;Merge为荧光与明场合并图像。
Fig. 7 subcellular localization of NbNHX8 in Nicotiana benthamiana epidermal cells
下载:
全尺寸图片
图 8 NbNHXs基因在染色体上的位置
注:Chr01~Chr17为本研究中依据参考基因组注释文件设定的染色体编号。
Fig. 8 distribution of NbNHX genes on chromosomes
下载:
全尺寸图片
图 9 NbNHXs基因的编码区
注:CDS为编码区;UTR为非翻译区。
Fig. 9 Gene structure of NbNHX genes
下载:
全尺寸图片
图 10 NbNHXs启动子区域的顺式作用元件
Fig. 10 analysis of cis-acting elements in the promoter regions of NbNHX genes
下载:
全尺寸图片
图 11 NbNHXs的共线性分析
Fig. 11 synteny analysis of NbNHX genes
下载:
全尺寸图片
图 12 AtNHXs与NbNHXs的共线性分析
注:CACRSJ010000105.1、CACRSJ010000106.1等序列编号为该基因组装版本中尚未锚定至染色体的scaffold/contig序列。
Fig. 12 comparative synteny analysis between AtNHX and NbNHX gene families
下载:
全尺寸图片
图 13 NbNHXs对应的AtNHXs家族蛋白互作图
Fig. 13 predicted protein-protein interaction network between NbNHX proteins and their corresponding AtNHX family proteins
下载:
全尺寸图片
图 14 NbNHXs的表达分析
注:p50-Ob为TMV普通株P50蛋白处理组;p50-U1为TMV U1株系P50蛋白免疫诱导组。
Fig. 14 expression profiles of NbNHX genes
下载:
全尺寸图片
表 1 NbNHX家族的蛋白质信息及理化性质
Table 1 protein information and physicochemical properties of the NbNHX family
蛋白质 氨基酸数量 分子质量/Da 等电点 不稳定指数 脂肪族指数 亲水性平均系数 NbNHX1 546 60 025.24 6.89 30.10 114.40 0.518 NbNHX2 536 58 783.99 6.67 36.89 115.32 0.589 NbNHX3 407 44 868.06 6.36 32.04 125.53 0.848 NbNHX4 538 59 252.61 8.67 37.79 112.68 0.570 NbNHX5 538 59 316.65 8.67 38.55 111.77 0.563 NbNHX6 532 58 472.45 5.66 42.43 98.61 0.420 NbNHX7 532 58 442.43 5.66 42.43 98.80 0.424 NbNHX8 1 154 128 173.15 5.95 38.45 101.77 0.053 NbNHX9 1 154 128 028.01 6.13 39.24 101.34 0.041 NbNHX10 961 105 970.13 5.47 35.88 106.85 0.275 表 2 NbNHXs蛋白质的二级结构百分比预测
Table 2 percentage prediction of secondary structure of NbNHX proteins
蛋白质 基因序号 α-螺旋/% β-转角/% 无规卷曲/% 延伸链/% NbNHX1 Nbe02g02180 50.73 3.30 32.23 13.74 NbNHX2 Nbe01g12080 49.25 3.17 33.77 13.81 NbNHX3 Nbe02g11040 54.79 4.18 26.29 14.74 NbNHX4 Nbe10g08310 53.35 2.79 30.11 13.75 NbNHX5 Nbe17g15530 52.97 2.97 29.74 14.31 NbNHX6 Nbe03g02870 54.70 3.01 28.20 14.10 NbNHX7 Nbe04g23840 53.20 3.20 29.14 14.47 NbNHX8 Nbe11g15010 60.23 3.03 27.64 9.10 NbNHX9 Nbe12g19730 58.32 2.86 28.94 9.88 NbNHX10 Nbe08g21990 61.08 3.54 23.62 11.76 表 3 NbNHX蛋白的亚细胞定位预测得分
Table 3 predicted subcellular localization scores of NbNHX proteins
基因名称 细胞核 高尔基体 线粒体 细胞质 质膜 液泡 内质网 NbNHX1 — 1 — — 7 5 1 NbNHX2 — 1 1 1 6 4 1 NbNHX3 — 2 1 — 5 4 2 NbNHX4 — — 1 — 9 3 1 NbNHX5 — — 1 — 9 3 1 NbNHX6 — — — 1 13 — — NbNHX7 — — — 1 13 — — NbNHX8 1 — — — 12 1 — NbNHX9 1 — — — 12 1 — NbNHX10 — — — — 12 1 1 注:—为无数据。 表 4 NbNHXs间突变率比较
Table 4 comparison of mutation rates among NbNHX genes
基因1 基因2 Ka Ks Ka/Ks NbNHX2 NbNHX3 0.015 54 0.123 23 0.126 14 NbNHX4 NbNHX5 0.872 10 — — NbNHX6 NbNHX7 0.007 26 0.070 36 0.103 23 NbNHX8 NbNHX9 1.336 50 — — 注:Ka为非同义突变率;Ks为同义突变率。 -
[1] Bassil E, Tajima H, Liang Y C, et al. The Arabidopsis Na+/H+ antiporters NHX1 and NHX2 control vacuolar pH and K+ homeostasis to regulate growth, flower development, and reproduction[J]. The Plant Cell, 2011, 23(9): 3482-3497. DOI: 10.1105/tpc.111.089581. [2] Bassil E, Coku A, Blumwald E. Cellular ion homeostasis: emerging roles of intracellular NHX Na+/H+ antiporters in plant growth and development[J]. Journal of Experimental Botany, 2012, 63(16): 5727-5740. DOI: 10.1093/jxb/ers250. [3] 刘佳, 崔继哲, 付畅. 植物Na+/H+逆向转运蛋白NHX及其生物学功能[J]. 科技通报, 2008, 24(6): 785-791. DOI: 10.13774/j.cnki. kjtb.2008.06.004. Liu Jia, Cui Jizhe, Fu Chang. NHX Na+/H+ antiporters in plants and their functions[J]. Bulletin of Science and Technology, 2008, 24(6): 785-791. doi: 10.13774/j.cnki.kjtb.2008.06.004 [4] Wang L G. Progress in endosomal Na+, K+/H+ antiporter in Arabidopsis thaliana[J]. Chinese Journal of Biotechnology, 2019, 35(8): 1424-1432. DOI: 10.13345/j.cjb.180537. [5] Fukuda A, Nakamura A, Hara N, et al. Molecular and functional analyses of rice NHX-type Na+/H+ antiporter genes[J]. Planta, 2011, 233(1): 175-188. DOI: 10.1007/s00425-010-1289-4. [6] Apse M P, Sottosanto J B, Blumwald E. Vacuolar cation/H+ exchange, ion homeostasis, and leaf development are altered in a T-DNA insertional mutant of AtNHX1, the Arabidopsis vacuolar Na+/H+ antiporter[J]. The Plant Journal, 2003, 36(2): 229-239. DOI: 10.1046/j.1365-313X. 2003.01871.x. [7] Goodin M M, Zaitlin D, Naidu R A, et al. Nicotiana benthamiana: its history and future as a model for plant-pathogen interactions[J]. Molecular Plant-Microbe Interactions, 2008, 21(8): 1015-1026. DOI: 10.1094/MPMI-21-8-1015. [8] Ko S R, Lee S, Koo H, et al. High-quality chromosome-level genome assembly of Nicotiana benthamiana[J]. Scientific Data, 2024, 11: 386. DOI: 10.1038/s41597-024-03232-0. [9] 徐亚, 滕梦鑫, 何岳东, 等. 香蕉NHX基因家族的鉴定及表达分析[J]. 植物生理学报, 2021, 57(3): 681-691. DOI: 10.13592/j.cnki. ppj.2020.0442. Xu Ya, Teng Mengxin, He Yuedong, et al. Identification and expression analysis of NHX genes family in banana[J]. Plant Physiology Journal, 2021, 57(3): 681-691. doi: 10.13592/j.cnki.ppj.2020.0442 [10] Pehlivan N, Sun L, Jarrett P, et al. Co-overexpressing a plasma membrane and a vacuolar membrane sodium/proton antiporter significantly improves salt tolerance in transgenic Arabidopsis plants[J]. Plant & Cell Physiology, 2016, 57(5): 1069-1084. DOI: 10.1093/pcp/pcw055. [11] Cao B N, Xia Z Q, Liu C Y, et al. New insights into the structure-function relationship of the endosomal-type Na+, K+/H+ antiporter NHX6 from mulberry(Morus notabilis)[J]. International Journal of Molecular Sciences, 2020, 21(2): 428. DOI: 10.3390/ijms21020428. [12] Munns R. Comparative physiology of salt and water stress[J]. Plant, Cell & Environment, 2002, 25(2): 239-250. DOI: 10.1046/j.0016-8025.2001.00808.x. [13] Zörb C, Noll A, Karl S, et al. Molecular characterization of Na+/H+ antiporters(ZmNHX) of maize(Zea mays L. ) and their expression under salt stress[J]. Journal of Plant Physiology, 2005, 162(1): 55-66. DOI: 10.1016/j.jplph.2004.03.010. [14] Sze H, Chanroj S. Plant endomembrane dynamics: studies of K+/H+ antiporters provide insights on the effects of pH and ion homeostasis[J]. Plant Physiology, 2018, 177(3): 875-895. DOI: 10.1104/pp.18.00142. [15] Apse M P, Aharon G S, Snedden W A, et al. Salt tolerance conferred by overexpression of a vacuolar Na+/H+ antiport in Arabidopsis[J]. Science, 1999, 285(5431): 1256-1258. DOI: 10.1126/science.285.5431.1256. [16] Padmanaban S, Chanroj S, Kwak J M, et al. Participation of endomembrane cation/H+ exchanger AtCHX20 in osmoregulation of guard cells[J]. Plant Physiology, 2007, 144(1): 82-93. DOI: 10.1104/pp.106.092155. [17] Chanroj S, Lu Y X, Padmanaban S, et al. Plant-specific cation/H+ exchanger 17 and its homologs are endomembrane K+ transporters with roles in protein sorting[J]. The Journal of Biological Chemistry, 2011, 286(39): 33931-33941. DOI: 10.1074/jbc. M111.252650. [18] Wang J B, Zhang Q L, Tung J, et al. High-quality assembled and annotated genomes of Nicotiana tabacum and Nicotiana benthamiana reveal chromosome evolution and changes in defense arsenals[J]. Molecular Plant, 2024, 17(3): 423-437. DOI: 10.1016/j.molp.2024.01.008. [19] Chen C J, Wu Y, Li J W, et al. TBtools-Ⅱ: a "one for all, all for one" bioinformatics platform for biological big-data mining[J]. Molecular Plant, 2023, 16(11): 1733-1742. DOI: 10.1016/j.molp.2023.09.010. [20] Finn R D, Clements J, Eddy S R. HMMER web server: interactive sequence similarity searching[J]. Nucleic Acids Research, 2011, 39(S2): W29-W37. DOI: 10.1093/nar/gkr367. [21] Edgar R C. Muscle: multiple sequence alignment with high accuracy and high throughput[J]. Nucleic Acids Research, 2004, 32(5): 1792-1797. DOI: 10.1093/nar/gkh340. [22] Capella-Gutiérrez S, Silla-Martínez J M, Gabaldón T. TrimAl: a tool for automated alignment trimming in large-scale phylogenetic analyses[J]. Bioinformatics, 2009, 25(15): 1972-1973. DOI: 10.1093/bioinformatics/btp348. [23] Minh B Q, Schmidt H A, Chernomor O, et al. IQ-TREE 2: new models and efficient methods for phylogenetic inference in the genomic era[J]. Molecular Biology and Evolution, 2020, 37(5): 1530-1534. DOI: 10.1093/molbev/msaa015. [24] Letunic I, Bork P. Interactive tree of life (iTOL) v5: an online tool for phylogenetic tree display and annotation[J]. Nucleic Acids Research, 2021, 49(W1): W293-W296. DOI: 10.1093/nar/gkab301. [25] Link A J. 2-D proteome analysis protocols [M]//Wilkins M R, Gasteiger E, Bairoch A, et al. Protein identification and analysis tools in the ExPASy server. New Jersey: Humana Press, 2003: 531-552. [26] Bailey T L, Boden M, Buske F A, et al. Meme Suite: tools for motif discovery and searching[J]. Nucleic Acids Research, 2009, 37: W202-W208. DOI: 10.1093/nar/gkp335. [27] Horton P, Park K J, Obayashi T, et al. WoLF PSORT: protein localization predictor[J]. Nucleic Acids Research, 2007, 35: W585-W587. DOI: 10.1093/nar/gkm259. [28] Teufel F, Almagro Armenteros J J, Johansen A R, et al. SignalP 6.0 predicts all five types of signal peptides using protein language models[J]. Nature Biotechnology, 2022, 40(7): 1023-1025. DOI: 10.1038/s41587-021-01156-3. [29] Hallgren J, Tsirigos K D, Pedersen M D, et al. DeepTMHMM predicts alpha and beta transmembrane proteins using deep neural networks[PP/OL]. bioRxiv (2022-04-10). https://doi.org/10.1101/2022.04.08.487609. [30] Gasteiger E, Hoogland C, Gattiker A, et al. Protein identification and analysis tools on the ExPASy server[M]. Totowa: Humana Press, 2005. [31] Waterhouse A, Bertoni M, Bienert S, et al. Swiss-model: homology modelling of protein structures and complexes[J]. Nucleic Acids Research, 2018, 46(W1): W296-W303. DOI: 10.1093/nar/gky427. [32] Lescot M, Déhais P, Thijs G, et al. Plant care, a database of plant cis-acting regulatory elements and a portal to tools for in silico analysis of promoter sequences[J]. Nucleic Acids Research, 2002, 30(1): 325-327. DOI: 10.1093/nar/30.1. 325. [33] Wang Y P, Tang H B, DeBarry J D, et al. MCScanX: a toolkit for detection and evolutionary analysis of gene synteny and collinearity[J]. Nucleic Acids Research, 2012, 40(7): e49. DOI: 10.1093/nar/gkr1293. [34] Hurst L D. The Ka/Ks ratio: diagnosing the form of sequence evolution[J]. Trends in Genetics, 2002, 18(9): 486. DOI: 10.1016/s0168-9525(02)02722-1. [35] Szklarczyk D, Gable A L, Nastou K C, et al. Correction to 'the string database in 2021: customizable protein-protein networks, and functional characterization of user-uploaded gene/measurement sets'[J]. Nucleic Acids Research, 2021, 49(18): 10800. DOI: 10.1093/nar/gkab835. [36] Zhang Q L, Wang J B, Zhang X, et al. A conserved, serine-rich protein plays opposite roles in N-mediated immunity against TMV and N-triggered cell death[J]. Viruses, 2022, 15(1): 26. DOI: 10.3390/v15010026. [37] Bally J, Jung H, Mortimer C, et al. The rise and rise of Nicotiana benthamiana: a plant for all reasons[J]. Annual Review of Phytopathology, 2018, 56: 405-426. DOI: 10.1146/annurev-phyto-080417-050141.
