
New materials of Burmobittacus jarzembowskii (Insecta: Macroptera) from the mid-Cretaceous
-
摘要: 蚊蝎蛉科(Bittacidae)最早的化石记录发现于三叠纪,在侏罗纪的多样性较高,而白垩纪则相对较低。本文基于白垩纪中期缅甸北部克钦琥珀中的4件保存完好的蚊蝎蛉科新标本,修订了缅甸蚊蝎蛉属(Burmobittacus Zhao,Bashkuev,Chen & Wang,2017)的属征,补充描述了贾氏缅甸蚊蝎蛉(Burmobittacus jarzembowskii Zhao,Bashkuev,Chen & Wang,2017)的头、翅基部和生殖器的特征,表明第2、3径脉融合脉(R2+3)与径分脉(RS)长度的比例在种内存在明显差异。另外,编制了蚊蝎蛉科化石属级检索表,比较了中生代蚊蝎蛉科化石类群翅的差异。Abstract: The earliest fossil records of Bittacidae can date back to the Triassic, with a higher diversity during the Jurassic, and lower diversity in the Cretaceous. This paper based on four well-preserved new specimens of Bittacidae from the mid-Cretaceous Kachin amber in Northern Myanmar (Hukawng Valley), revised the diagnosis of Burmobittacus Zhao, Bashkuev, Chen & Wang, 2017, supplemented the features of head, the basal part of the wing, and genitalia of Burmobittacus jarzembowskii Zhao, Bashkuev, Chen & Wang, 2017, indicated a significant difference in the intraspecific length ratio between radial sector(RS) and R2+3. This paper also compiled a fossil genus-level key for the Bittacidae and compared the wing differences among fossil groups of Bittacidae from Mesozoic.
-
Keywords:
- ancient insects /
- Bittacidae /
- Cretaceous /
- amber /
- Myanmar /
- intraspecific variation
-
0. 引言
蚊蝎蛉科(Bittacidae)是现生长翅目(Mecoptera)中的第2大科,共18个现生属,270余种[1],分布范围很广,通常生活在温暖湿润的环境中[2]。蚊蝎蛉具有3对细长且极为特化的捕捉足,足的第5跗分节能折叠至第4跗分节之上,前跗节特化为尖锐的单爪。前足可抓握的跗节通常悬挂在植物叶片或枝条上,中足和后足张开,等待捕捉猎物[3],所以通称为“hangingfly”挂蛉。蚊蝎蛉翅基部均细长狭窄,顶部加宽,翅痣一般很发达[4]。前后翅臀脉(2A)单支,第1肘脉(Cu1)与中脉(M)在翅基部短距离融合。
蚊蝎蛉科最早的化石记录来自晚三叠世,仅发现1属1种[5]。侏罗纪,蚊蝎蛉科的化石多样性达到顶峰,共报道了23属50余种[6-19],分布在中国、蒙古国、哈萨克斯坦、吉尔吉斯斯坦、俄罗斯、英国和德国等。我国东北地区发现侏罗纪蚊蝎蛉科化石10属14种[10-17],首件是由任东教授于1993年发现并命名的长角辽蚊蝎蛉(Liaobittacus longantennatus)[10]。目前已发表的白垩纪蚊蝎蛉科化石多样性低于侏罗纪,共报道8属13种[20-24],分布在缅甸、中国、俄罗斯和英国。其中,我国东北地区发现白垩纪蚊蝎蛉科化石2属4种,缅甸琥珀中仅发现2属2种[21-22]。缅甸蚊蝎蛉属目前仅发表 1种,贾氏缅甸蚊蝎蛉(Burmobittacus jarzembowskii),该种的建立基于1件标本,仅描述了翅和足的特征,本文新发现的4件标本补充描述了该种的另外重要身体特征,并探讨该种的种内变异。
1. 材料与方法
本研究的所有琥珀标本均保存于首都师范大学生命科学学院昆虫演化与环境变迁重点实验室。琥珀标本材料来自缅甸北部克钦邦胡康河谷(Hukawng Valley)附近,时代为白垩纪中期,地层为赛诺曼阶(98.79±0.62)Ma[25]。标本放置在Nikon SMZ 25显微镜(日本尼康株式会社)下进行观察,并在附带Nikon DS-Ri2数码相机(日本尼康株式会社)系统下进行拍照。
本文涉及的翅脉命名术语沿用Byers[26]的命名系统,横脉及其他身体特征的命名沿用Tan和Hua[27]、普通昆虫学[28]、Bechly和Schweigert[29]中的术语。具体术语缩写中英文释义为前缘脉(costa,C),亚前缘脉(subcosta,Sc),径脉(rdiaus,R),中脉(media,M),肘脉(cubitus,Cu),臀脉(anal,A),径分脉(radial sector,RS),痣下横脉(pterostigmal crossvein,pcv),径分脉的起源点(origin of radial sector,ORS),径分脉的第一分叉点(first fork of radial sector,FRS),中脉的第一分叉点(first fork of media,FM),第2、3径脉融合脉(R2+3),第4、5径脉融合脉(R4+5),第1、2中脉融合脉(M1+2),第3、4中脉融合脉(M3+4),蚊蝎蛉十字(R4+5与M1+2的横脉和M1+2与M3的横脉的总称)(Bittacid cross),肩横脉(humeral crossvein,h),肋下横脉(subcostal crossvein,scv),中横脉(medial crossvein,m),肘横脉(cubital crossvein,cuv),中肘横脉(redio-cubital crossvein,m-cu1),臀横脉(anal crossvein,a),明斑(thyridium,Thyridium),下颚须(maxillary palpus,MP),上唇(labrum,L),唇基(clypeus,Cly),触角(antenna,Ant),复眼(compound eye,CE),上颚(mandible,Man),下唇须(labial palp,LP),第十背板(tergum Ⅹ,T10),尾须(cercus,Ce),肛下板(subanal plate,SaP),爪(claw),基跗节(basitarsus),胫节端距(tibial spur)和胫节(tibia)。
2. 分类鉴定与描述
长翅目Mecoptera Packard,1886
拉普蝎蛉次目Raptipedia Willmann,1987蚊蝎蛉科Bittacidae Handlirsch,1906
缅甸蚊蝎蛉属Burmobittacus Zhao,Bashkuev,Chen & Wang,2017
模式种:贾氏缅甸蚊蝎蛉Burmobittacus jarzembowskii Zhao,Bashkuev,Chen & Wang,2017
2.1 属征修订
修订属征:丝状触角;后足基跗节长于其他跗节;翅具柄,细长且狭窄;脉序平滑,纵脉排列整齐;Sc与C相交于翅中部,未超过R4+5分叉点或水平于分叉点;R1前段几乎为一条直线,端部呈勺形;pcv短,仅1条;RS的起源点和RS的分叉点均在翅基的前1/4处;RS起源点到分叉点的距离很短;RS的分叉点到R2+3分叉点距离长,约为整个翅长的3/5,大于或等于RS起源点到RS分叉点距离的8倍;M前翅分成5支,后翅分成4支;M分叉点在翅中部之前,远超过RS的分叉点,具有明斑;Bittacid cross靠近不对齐或对齐;Cu1与M融合较短距离后在翅基部与Cu2形成X形;1A与后翅缘交于RS起源点前(均为前翅特征描述)。
(1)增加属征:Sc与C相交未超过R4+5分叉点或水平于分叉点(新材料中同时存在Sc与C相交点未超过R4+5分叉点和水平于分叉点);Cu1与M融合后与Cu2形成X形,1A与后翅缘交于RS起源点前(X形在保存翅基部的新标本前翅中被观察到,后翅未观察到);丝状触角,后足基跗节长于其他跗节(新标本中保存部分丝状触角和完整的后足,测量得到基跗节明显长于其他跗节)。(2)删除属征:Sc与C间横脉;R2的延伸角度;m-cu1与M4所交的角度(均判断为种内变异)。(3)更改属征:R2+3的长度约等于RS长度的8倍改为R2+3的长度大于等于RS长度的8倍(新标本中R2+3长度约为RS起源点到RS分叉点距离的9~14倍);Bittacid cross对齐改为靠近不对齐或对齐(新标本中发现Bittacid cross之间存在微弱距离,并未对齐)。
2.2 新材料描述
贾氏缅甸蚊蝎蛉Burmobittacus jarzembowskii Zhao,Bashkuev,Chen & Wang,2017
新材料:No. CNU-MEC-MA2016022(图 1、2);No. CNU-MEC-MA2016023(图 3、4);No. CNU-MEC-MA2016024(图 5);No.CNU-MEC-MA2016025(图 6)。注:文中为方便描述将左翅图像水平翻转。
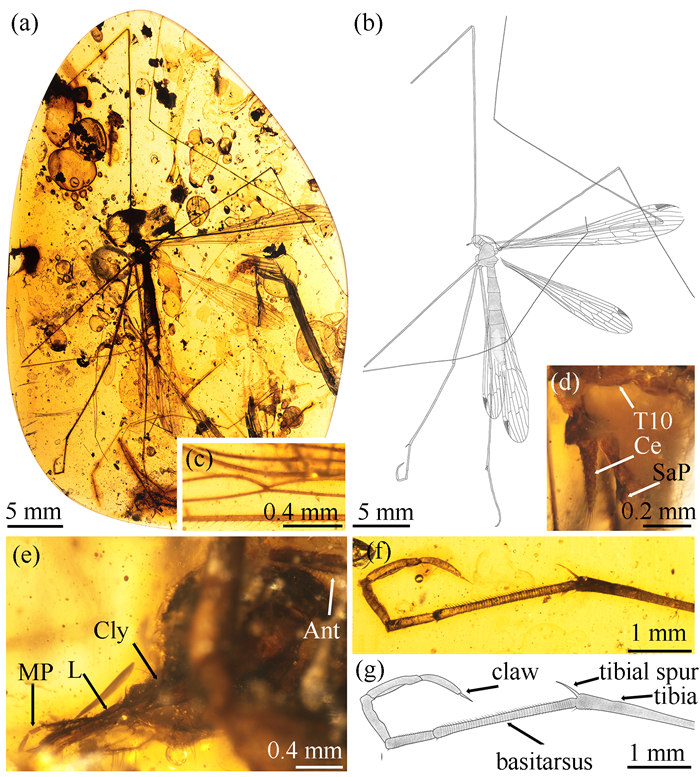 图 1 No. CNU-MEC-MA2016022雌性贾氏缅甸蚊蝎蛉(Burmobittacus jarzembowskii)新材料的虫体特征(a)虫体;(b)虫体线条图;(c)翅基部(Cu1与M融合后与Cu2形成X形);(d)尾须;(e)头部;(f)足部;(g)足部线条图
 下载:
全尺寸图片
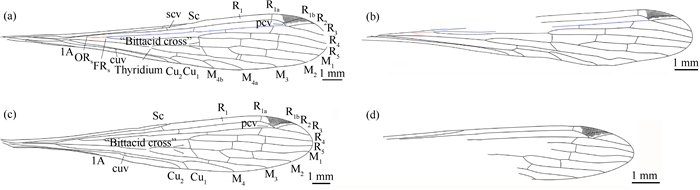 图 2 No. CNU-MEC-MA2016022雌性贾氏缅甸蚊蝎蛉新材料翅的线条图注: 为方便观察将左翅图像水平翻转。
(a)右前翅; (b)左前翅; (c)右后翅; (d)左后翅下载:
全尺寸图片
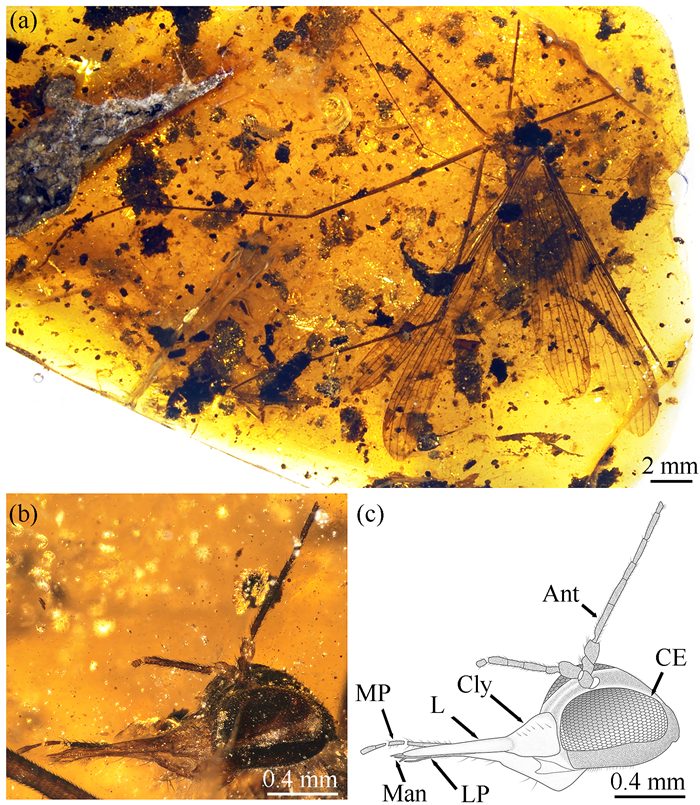 图 3 No. CNU-MEC-MA2016023贾氏缅甸蚊蝎蛉新材料的虫体特征(a)虫体;(b)头部;(c)头部线条图下载:
全尺寸图片
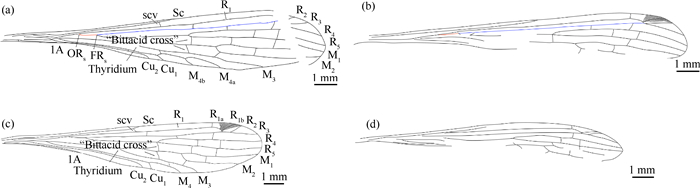 图 4 No. CNU-MEC-MA2016023贾氏缅甸蚊蝎蛉新材料翅的线条图(a)右前翅;(b)左前翅;(c)右后翅;(d)左后翅下载:
全尺寸图片
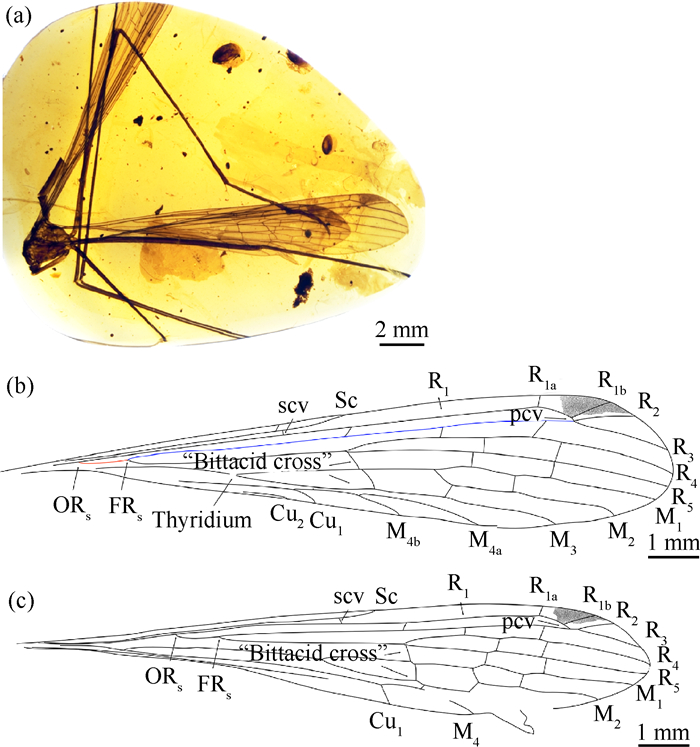 图 5 No. CNU-MEC-MA2016024贾氏缅甸蚊蝎蛉新材料翅的特征(a)虫体;(b)右前翅线条图;(c)右后翅线条图下载:
全尺寸图片
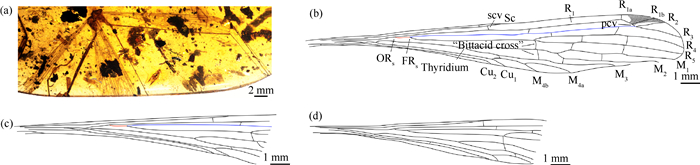 图 6 No. CNU-MEC-MA2016025贾氏缅甸蚊蝎蛉新材料翅的特征(a)虫体;(b)右前翅线条图;(c)左前翅线条图;(d)左后翅线条图下载:
全尺寸图片
产地及时代:产自缅甸北部克钦邦胡康河谷,时代为白垩纪中期。
补充描述:No. CNU-MEC-MA2016022为雌性。虫体较大,约11.80 mm(不包括触角和尾须)。头部保存部分口器和触角,腹部保存不完整,仅可见一侧尾须。3对足,1对后足保存完整。右侧的前翅和后翅较完整,左侧前后翅重叠(图 1(a、b))。
头部较为清晰,上唇延长,下颚须末节和第4节可见(图 1(e))。触角丝状保存不完整,可见触角约12节,末端鞭节比基部鞭节长且鞭节上有细毛。
前胸小而窄,前缘具有黑色刚毛,中胸和后胸保存较完好,明显发达于前胸。腹部保存9节,生殖器不完整,可见一侧尾须,尾须稍短于肛下板可见部分,锥状具有长刚毛(图 1(d))。3对足均细长,后足完整保存,后足捕捉足相较前足和中足更为粗壮,但长度较短。后足的基节短粗,转节短小,腿节长而粗壮,胫节短于腿节,胫节距长度为0.40 mm。跗节分5节,基跗节最长为2.30 mm,2~5跗节总长度约为3.00 mm,长于基跗节。1~3跗节具有刚毛,在分节处刚毛更粗、更长,第4跗分节腹面中部有一排齿,约23颗。前跗节具1个爪(图 1(f、g))。
翅狭长,右侧前翅约16.10 mm,宽2.71 mm,可见部分边缘规则排列着短刚毛,无翅斑。Sc单支,与C有1条h,左侧无法观察(图 2(a、b)),结束点超过Cu1结束点,未超过R4+5分叉点。横脉scv短小,远离Sc与C交点(后翅更接近Sc与C交点),与Cu2在后翅缘交点大致在一条垂直线上,且在OM的远端,scv不与cuv垂直。R1平直贯穿整个翅,端部为向下的勺形。具较短的pcv,交于R2+3的分叉前。R1a横向,R1b与pcv呈锐角,穿过翅痣区域与翅缘相交,R1b比较微弱。翅痣区短,大致呈三角形,边缘陡峭不平滑,未超R1a。pcv前R1与R2+3有1条横脉,横脉位置在R4+5分支点前。ORS至FRS距离短(图 2,橙色表示),FRS到R2+3分叉点长度(图 2,蓝色表示)约是ORS至FRS长度的9倍(左侧前翅R2+3长度约是ORS至FRS长度的9倍);FRS到R2+3分叉点距离长,大约是整个翅长的3/5;R2+3分叉点在pcv之后,R2和R3与R2+3的延长线呈锐角向上延伸。FRS到R4+5分叉点长度约为FRS到R2+3分叉点长度的1/2,R4与R5几乎等长。R2+3与R4间2条横脉,R4与R5间2条横脉,R5与M1间2条横脉。FM在远超FRS的位置,RS分成4支,因为M4分成M4a和M4b共2支,所以M分成5支。FM处有明斑。OM到FM的长度与FM到M1+2分叉点长度相近。Bittacid cross轮廓分明,靠近但不对齐,开始于R4+5分叉点处,结束远远超过M3+4分叉。M2与M3间有2条m。m-cu1与M4间以钝角相交。Cu1和Cu2相靠近且平行一段距离,约结束在翅中部,Cu1结束在Sc与C相交处之前。1条短cuv,靠近翅基部在FM前。Cu1与M融合较短距离后,在翅基部与Cu2形成X形(图 1(c))。1A很短,贴近后翅缘,结束点在ORS前,在翅基部有1条a。
后翅与前翅形状相似,整体翅长短于前翅,后翅长13.60 mm,宽2.40 mm,可见部分边缘规则地排列着短刚毛,无翅斑。FM处有明斑,Sc结束在Cu1结束点前。Bittacid cross轮廓分明,首尾有很微弱的距离,几乎呈一条直线,结束于M3+4分叉前。M2与M3间有1条m,M分成4支。有1条短cuv,位于FM前,靠近翅基部。1A存在,与后翅缘交于FRS前。m-cu1与Cu1间的角度为钝角,m-cu1长,与M3平行一段距离(图 2(c、d))。
No. CNU-MEC-MA2016023头部保存较完整,复眼大,口器可见一侧的下颚须,上颚和下唇须。上颚呈刀片状,上唇延长,向端部逐渐变窄,末端稍圆。丝状触角断裂,柄节和梗节比较粗大,鞭节有细毛(图 3(b、c))。右侧前翅Sc单支,与C间有1条h,左侧因保存原因无法观察到h是否存在;R2+3长度(图 4,蓝色表示)约是ORS至FRS长度(图 4,橙色表示)的9倍;1条短pcv,交于R2+3的分叉前;前翅scv与cuv不在一条垂直线上;R2沿R2+3的延长线延伸;Cu1与M融合较短距离后,在翅基部与Cu2呈X形;m-cu1与M4以锐角相交。后翅pcv交于R2+3的分叉点前;Cu1与M融合较短距离后,在翅基部不与Cu2形成X形(图 4)。
No. CNU-MEC-MA2016024仅右侧翅较为清晰(图 5),前翅Sc单支与C间有1条h;R2+3长度(图 5,蓝色表示)约是ORS至FRS长度(图 5,橙色表示)的8倍;1条短pcv,交于R2+3的分叉点;R2与R2+3的延长线呈锐角向上延长;m-cu1与M4以锐角相交。后翅pcv交于R2+3的分叉点前;Cu1与M融合较短距离后,在翅基部不与Cu2呈X形。
No. CNU-MEC-MA2016025仅右侧前翅保存较完整,Sc单支,右侧Sc与C有1条h,左侧Sc与C间没有h;R2+3长度(图 6,蓝色表示)约是ORS至FRS长度(图 6,橙色表示)的14倍;1条短pcv,交于R2+3的分叉前;R2与R2+3的延长线呈锐角向上延长;Cu1与M融合较短距离后在翅基部与Cu2呈X形;m-cu1与M4以锐角相交。后翅Cu1与M融合较短距离后在翅基部不与Cu2呈X形(图 6)。
通过比较贾氏缅甸蚊蝎蛉的4件新标本,将以下特征判断为种内变异:(1)Sc与C间有无横脉(在No. CNU-MEC-MA2016025的前翅右侧有横脉,左侧没有横脉);(2)pcv与R2+3分叉点相交位置(No. CNU-MEC-MA2016022、No. CNU-MEC-MA2016023和No. CNU-MEC-MA2016025交于R2+3分叉点前,No. CNU-MEC-MA2016024交于分叉点处);(3)R2的延伸方向(No.CNU-MEC-MA2016022、No.CNU-MEC-MA2016024和No. CNU-MEC-MA2016025以R2+3的延长线呈锐角向上延长,No. CNU-MEC-MA2016023以R2+3的延长线为直线延长);(4)m-cu1与M4相交的角度(No.CNU-MEC-MA2016022以钝角相交,No. CNU-MEC-MA2016023、No. CNU-MEC-MA2016024、No. CNU-MEC-MA2016025以锐角相交)。这些特征都不具稳定性,不能作为判定新种的依据。
2.3 蚊蝎蛉科化石属级检索表
蚊蝎蛉科属级划分的依据主要集中在翅的特征上,因此根据翅脉及翅斑等特征进行编制检索表,包含中生代和新生代已经发表的蚊蝎蛉共35属,相关示意如图 7所示。
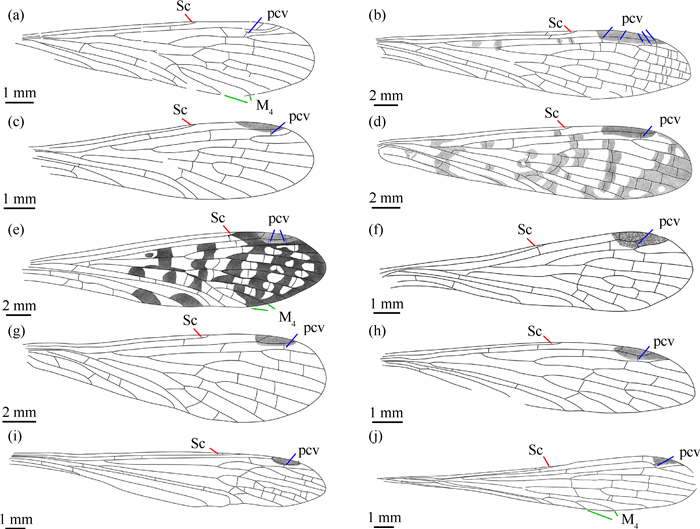 图 7 蚊蝎蛉科化石属级检索表示意下载:
全尺寸图片
3. 讨论
中生代(三叠纪、侏罗纪和白垩纪)是蚊蝎蛉演化的重要时期,中生代已发表的所有化石属级名录如表 1所示。本文对中生代蚊蝎蛉科代表种的翅脉进行了重新绘制,部分代表种的翅脉重绘图如图 8所示,包括:三叠纪的纤细始蚊蝎蛉(Archebittacus exiliss)[5],侏罗纪的双斑复合蚊蝎蛉(Composibittacus bipunctatus)[16]、斜脉小蚊蝎蛉(Exilibittacus plagioneurus)[15]、多斑美丽蚊蝎蛉(Formosibittacus macularis)[14]、长翼卡拉蚊蝎蛉(Karattacus longialatus)[4]、无斑侏森蚊蝎蛉(Jurahylobittacus astictus)[14]和强壮派纳蚊蝎蛉(Preanabittacus validus)[13],白垩纪的蛇羽巴索蚊蝎蛉(Baissobittacus anguistipennatus)[19]、修长大蚊蝎蛉(Megabittacus spatiosus)[12]和贾氏缅甸蚊蝎蛉。将蚊蝎蛉科化石属的翅特征进行比较,有一定的规律可循:三叠纪的蚊蝎蛉Sc结束位置未超过R4+5分叉点;scv存在,pcv为1条;M分成5支;1A与Cu2在翅基部愈合;除翅痣外,没有翅斑;翅长约17.70 mm。侏罗纪的蚊蝎蛉有7属Sc结束位置超过R4+5分叉点,且这7属在亚洲均有分布;scv存在,pcv为0~5条不等,部分属在中区和径区横脉多(> 20条);M通常4分支,少数属分为5、6或更多分支;在我国发现的5个属除翅痣外,在翅横脉、R分叉点、RS分叉点、M分叉点处出现深褐色的翅斑;翅长为7.50~29.00 mm。白垩纪的蚊蝎蛉Sc结束位置未超过R4+5分叉点或与R4+5分叉点水平;scv存在,pcv稳定在1~2条,除大蚊蝎蛉属外径区中区横脉数量少;仅缅甸蚊蝎蛉属前翅M4分成2支,造成M分成5支;除翅痣外,没有观察到有翅斑的存在(可能与化石保存情况有关);翅长为9.10~17.30 mm,大蚊蝎蛉属翅长为38.00~40.00 mm(图 7,红色箭头所指为Sc,蓝色箭头所指为pcv,绿色箭头所指为M分支情况)。
表 1 中生代蚊蝎蛉科化石属级名录属名(拉丁名) 时代 分布 古老蚊蝎蛉属(Antiquanabittacus Petrulevičius & Jarzembowski,2004) 早白垩世 英国、俄罗斯 始蚊蝎蛉属(Archebittacus Riek,1955) 晚三叠世 澳大利亚 亚洲蚊蝎蛉属(Asiobittacus Novokshonov,1993) 早侏罗世 吉尔吉斯斯坦 巴索蚊蝎蛉属(Baissobittacus Novokshonov,1997) 早白垩世 俄罗斯 缅甸蚊蝎蛉属(Burmobittacus Zhaos,Bashkuev,Chen & Wang,2017) 白垩纪中期 缅甸 蚊蝎蛉属(Bittacus Latrelle,1805) 白垩纪中期 英国、俄罗斯、波罗的海 白垩蚊蝎蛉属(Cretobittacus Novokshonov,1993) 早白垩世 俄罗斯 复合蚊蝎蛉属(Composibittacus Liu,Shih,Bashkuev & Ren,2016) 中侏罗世 中国 华美蚊蝎蛉属(Decoribittacus Li & Ren,2009) 中侏罗世 中国 小蚊蝎蛉属(Exilibittacus Yang,Shih & Ren,2012) 中侏罗世 中国 美丽蚊蝎蛉属(Formosibittacus Li,Ren & Shih,2008) 中侏罗世 中国 独蚊蝎蛉属(Haplobittacus Bode,1953) 早侏罗世 德国 侏森蚊蝎蛉属(Jurahylobittacus Li,Ren & Shih,2008) 中侏罗世 中国 卡拉蚊蝎蛉属(Karattacus Novokshonov,1997) 中侏罗世 中国、哈萨克斯坦 辽蚊蝎蛉属(Liaobittacus Ren,1993) 中侏罗世 中国 大蚊蝎蛉属(Megabittacus Ren,1997) 早白垩世 中国 微小蚊蝎蛉属(Microbittacus Novokshonov,1993) 早侏罗世 德国、俄罗斯 蒙古蚊蝎蛉属(Mongolbittacus Petrulevičius,Huang & Ren,2007) 中侏罗世 中国 新直脉蝎蛉属(Neorthophlebia Handlirsch,1906) 早侏罗世 中国、德国、俄罗斯 金蚊蝎蛉属(Orobittacus Villegas & Byers,1981) 中侏罗世、晚侏罗世 蒙古国、哈萨克斯坦 直脉蚊蝎蛉属(Orthobittacus Willmann,1989) 中侏罗世 吉尔吉斯斯坦、中国 旁蚊蝎蛉属(Parabittacus Handlirsch,1939) 早侏罗世 德国 满蚊蝎蛉属(Pleobittacus Bode,1953) 早侏罗世 德国 近蚊蝎蛉属(Plesiobittacus Novokshonov,1997) 早侏罗世、中侏罗世 吉尔吉斯斯坦 派纳蚊蝎蛉属(Preanabittacus Novokshonov,1993) 中侏罗世 哈萨克斯坦、中国 早蚊蝎蛉属(Probittacus Martynov,1927) 晚侏罗世 哈萨克斯坦 前森蚊蝎蛉属(Prohylobittacus Novokshonov,1993) 中侏罗世、晚侏罗世 哈萨克斯坦 原蚊蝎蛉属(Protobittacus Tillyard,1933) 早侏罗世 德国、澳大利亚 斯可若蚊蝎蛉属(Scharabittacus Novokshonov,1993) 中侏罗世、晚侏罗世 蒙古国 西伯利亚蚊蝎蛉属(Sibirobittacus Sukatcheva,1990) 晚侏罗世、早白垩世 哈萨克斯坦、中国 第特蚊蝎蛉属(Tytthobittacus Smithers,1973) 早白垩世 英国 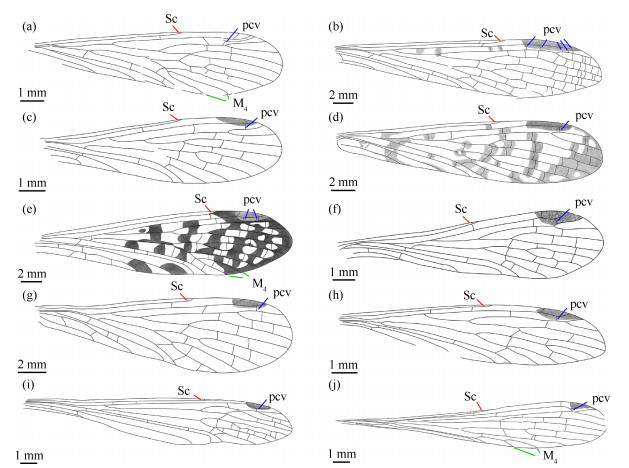 图 8 中生代蚊蝎蛉科代表种的翅脉重绘(a)纤细始蚊蝎蛉(Archebittacus exiliss)的前翅;(b)双斑复合蚊蝎蛉(Composibittacus bipunctatus)的左前翅;(c)斜脉小蚊蝎蛉(Exilibittacus plagioneurus)的右前翅;(d)多斑美丽蚊蝎蛉(Formosibittacus macularis)的左前翅;(e)长翼卡拉蚊蝎蛉(Karattacus longialatus)的左前翅;(f)无斑侏森蚊蝎蛉(Jurahylobittacus astictus)的左前翅;(g)强壮派纳蚊蝎蛉(Preanabittacus validus)的右前翅;(h)蛇羽巴索蚊蝎蛉(Baissobittacus anguistipennatus)的后翅;(i)修长大蚊蝎蛉(Megabittacus spatiosus)的左前翅;(j)贾氏缅甸蚊蝎蛉的右后翅下载:
全尺寸图片
综上所述,中生代蚊蝎蛉科翅的变化可能存在如下规律:翅脉趋于简单(除大蚊蝎蛉属外),Sc结束位置远超过R4+5分叉点的情况减少,scv稳定存在。pcv的数量减少,径区和中区横脉数量减少(除大蚊蝎蛉属外)。M分支数在白垩纪仅有1属为5支,对比的结果进一步验证了先前对于M的分支数量在演化过程中趋向于减少的推测[21]。
4. 结束语
本文根据4件贾氏缅甸蚊蝎蛉的新标本,完善并修订了已知属种的鉴别特征。对于蚊蝎蛉科化石,属种的建立仅依靠保存不完整的标本或者单一的翅脉特征,因此保存较完整新标本的发现能够补充其分类学特征,对于新属种的建立尤为重要,也为探索该科其他身体特征的演化提供证据。种内变异广泛存在于自然界的各种生物类群中,根据种内变异的特征来建立新种会造成同物异名,了解种内的变异和建立新属种同样重要,明确掌握属种间和种内的分类学特征是讨论其演化的重要先决条件。
-
图 1 No. CNU-MEC-MA2016022雌性贾氏缅甸蚊蝎蛉(Burmobittacus jarzembowskii)新材料的虫体特征
(a)虫体;(b)虫体线条图;(c)翅基部(Cu1与M融合后与Cu2形成X形);(d)尾须;(e)头部;(f)足部;(g)足部线条图
下载:
全尺寸图片
图 2 No. CNU-MEC-MA2016022雌性贾氏缅甸蚊蝎蛉新材料翅的线条图
注: 为方便观察将左翅图像水平翻转。
(a)右前翅; (b)左前翅; (c)右后翅; (d)左后翅下载:
全尺寸图片
图 3 No. CNU-MEC-MA2016023贾氏缅甸蚊蝎蛉新材料的虫体特征
(a)虫体;(b)头部;(c)头部线条图
下载:
全尺寸图片
图 4 No. CNU-MEC-MA2016023贾氏缅甸蚊蝎蛉新材料翅的线条图
(a)右前翅;(b)左前翅;(c)右后翅;(d)左后翅
下载:
全尺寸图片
图 5 No. CNU-MEC-MA2016024贾氏缅甸蚊蝎蛉新材料翅的特征
(a)虫体;(b)右前翅线条图;(c)右后翅线条图
下载:
全尺寸图片
图 6 No. CNU-MEC-MA2016025贾氏缅甸蚊蝎蛉新材料翅的特征
(a)虫体;(b)右前翅线条图;(c)左前翅线条图;(d)左后翅线条图
下载:
全尺寸图片
图 7 蚊蝎蛉科化石属级检索表示意
下载:
全尺寸图片
图 8 中生代蚊蝎蛉科代表种的翅脉重绘
(a)纤细始蚊蝎蛉(Archebittacus exiliss)的前翅;(b)双斑复合蚊蝎蛉(Composibittacus bipunctatus)的左前翅;(c)斜脉小蚊蝎蛉(Exilibittacus plagioneurus)的右前翅;(d)多斑美丽蚊蝎蛉(Formosibittacus macularis)的左前翅;(e)长翼卡拉蚊蝎蛉(Karattacus longialatus)的左前翅;(f)无斑侏森蚊蝎蛉(Jurahylobittacus astictus)的左前翅;(g)强壮派纳蚊蝎蛉(Preanabittacus validus)的右前翅;(h)蛇羽巴索蚊蝎蛉(Baissobittacus anguistipennatus)的后翅;(i)修长大蚊蝎蛉(Megabittacus spatiosus)的左前翅;(j)贾氏缅甸蚊蝎蛉的右后翅
下载:
全尺寸图片
表 1 中生代蚊蝎蛉科化石属级名录
属名(拉丁名) 时代 分布 古老蚊蝎蛉属(Antiquanabittacus Petrulevičius & Jarzembowski,2004) 早白垩世 英国、俄罗斯 始蚊蝎蛉属(Archebittacus Riek,1955) 晚三叠世 澳大利亚 亚洲蚊蝎蛉属(Asiobittacus Novokshonov,1993) 早侏罗世 吉尔吉斯斯坦 巴索蚊蝎蛉属(Baissobittacus Novokshonov,1997) 早白垩世 俄罗斯 缅甸蚊蝎蛉属(Burmobittacus Zhaos,Bashkuev,Chen & Wang,2017) 白垩纪中期 缅甸 蚊蝎蛉属(Bittacus Latrelle,1805) 白垩纪中期 英国、俄罗斯、波罗的海 白垩蚊蝎蛉属(Cretobittacus Novokshonov,1993) 早白垩世 俄罗斯 复合蚊蝎蛉属(Composibittacus Liu,Shih,Bashkuev & Ren,2016) 中侏罗世 中国 华美蚊蝎蛉属(Decoribittacus Li & Ren,2009) 中侏罗世 中国 小蚊蝎蛉属(Exilibittacus Yang,Shih & Ren,2012) 中侏罗世 中国 美丽蚊蝎蛉属(Formosibittacus Li,Ren & Shih,2008) 中侏罗世 中国 独蚊蝎蛉属(Haplobittacus Bode,1953) 早侏罗世 德国 侏森蚊蝎蛉属(Jurahylobittacus Li,Ren & Shih,2008) 中侏罗世 中国 卡拉蚊蝎蛉属(Karattacus Novokshonov,1997) 中侏罗世 中国、哈萨克斯坦 辽蚊蝎蛉属(Liaobittacus Ren,1993) 中侏罗世 中国 大蚊蝎蛉属(Megabittacus Ren,1997) 早白垩世 中国 微小蚊蝎蛉属(Microbittacus Novokshonov,1993) 早侏罗世 德国、俄罗斯 蒙古蚊蝎蛉属(Mongolbittacus Petrulevičius,Huang & Ren,2007) 中侏罗世 中国 新直脉蝎蛉属(Neorthophlebia Handlirsch,1906) 早侏罗世 中国、德国、俄罗斯 金蚊蝎蛉属(Orobittacus Villegas & Byers,1981) 中侏罗世、晚侏罗世 蒙古国、哈萨克斯坦 直脉蚊蝎蛉属(Orthobittacus Willmann,1989) 中侏罗世 吉尔吉斯斯坦、中国 旁蚊蝎蛉属(Parabittacus Handlirsch,1939) 早侏罗世 德国 满蚊蝎蛉属(Pleobittacus Bode,1953) 早侏罗世 德国 近蚊蝎蛉属(Plesiobittacus Novokshonov,1997) 早侏罗世、中侏罗世 吉尔吉斯斯坦 派纳蚊蝎蛉属(Preanabittacus Novokshonov,1993) 中侏罗世 哈萨克斯坦、中国 早蚊蝎蛉属(Probittacus Martynov,1927) 晚侏罗世 哈萨克斯坦 前森蚊蝎蛉属(Prohylobittacus Novokshonov,1993) 中侏罗世、晚侏罗世 哈萨克斯坦 原蚊蝎蛉属(Protobittacus Tillyard,1933) 早侏罗世 德国、澳大利亚 斯可若蚊蝎蛉属(Scharabittacus Novokshonov,1993) 中侏罗世、晚侏罗世 蒙古国 西伯利亚蚊蝎蛉属(Sibirobittacus Sukatcheva,1990) 晚侏罗世、早白垩世 哈萨克斯坦、中国 第特蚊蝎蛉属(Tytthobittacus Smithers,1973) 早白垩世 英国 -
[1] WANG J S, HUA B Z. A color atlas of the Chinese Mecoptera[M]. Zhenzhou: Henan Science and Technology Press, 2022: 14-17. [2] KRZEMIŃSKI W. A revision of Eocene Bittacidae (Mecoptera)from Baltic amber with the description of a new species[J]. African Invertebrates, 2007, 48: 153-162. [3] TAN J L, HUA B Z. Structure of raptorial legs in Bittacus(Mecoptera: Bittacidae)[J]. Acta Entomologica Sinica, 2008, 51: 745-752. [4] LI Y L, REN D. Middle Jurassic Bittacidae (Insecta: Mecoptera)from Daohugou, Inner Mongolia, China[J]. Acta Zootaxonomica Sinica, 2009, 34(3): 560-567. [5] LAMBKIN J. Archebittacus exilis Riek-the oldest hangingfly(Insecta: Mecoptera: Bittacidae)[J]. Zootaxa, 2017, 4292(2): 385-389. [6] HANDLIRSCH A. Die fossilen Insekten und die Phylogenie der rezenten Formen[M]. Leipzig: Ein Handbuch für Paläontologen und Zoologen, 1906: 1-36. [7] ANSORGE J. Parabittacus analis Handlirsch 1939 und Parabittacus lingula (Bode 1953), Neorthophlebiiden(Insecta: Mecoptera) aus dem Oberen Lias von Deutschland[J]. Paläontologische Zeitschrift, 1993, 67(3/4): 293-297. [8] NOVOKSHONOV V G. Die interessante Bittacidenreste (Mecoptera Insecta) aus dem Jura von Eurasien[J]. Russian Entomological Journal, 1993, 2(1): 57-62. [9] NOVOKSHONOV V G. Mückenhafte (Mecoptera Bittacidae) aus dem Jura, Kreide und Paläogen von Eurasien und ihre phylogenetischen Beziehungen[J]. Russian Entomological Journal, 1993, 2(3/4): 75-86. [10] REN D. First discovery of fossil bittacids from China[J]. Acta Geologica Sinica, 1993, 67: 376-381. [11] REN D. Studies on Late Jurassic scorpionflies from Northeast China[J]. Acta Zootaxonomica Sinica, 1997, 22(1): 75-85. [12] YANG X G, REN D, SHIH C K. New fossil hangingflies (Mecoptera, Raptipeda, Bittacidae) from the Middle Jurassic to early Cretaceous of Northeastern China[J]. Geodiversitas, 2012, 34: 785-799. [13] YANG X G, SHIH C K, REN D, et al. New Middle Jurassic hangingflies (Insecta: Mecoptera) from Inner Mongolia, China[J]. Alcheringa, 2012, 36(2): 195-201. [14] LI Y L, REN D, SHIH C K. Two Middle Jurassic hangingflies (Insecta: Mecoptera: Bittacidae) from Northeast China[J]. Zootaxa, 2008, 1929: 38-46. [15] LIU S L, SHIH C, REN D. Four new species of hangingflies (Insecta: Mecoptera, Bittacidae) from the Middle Jurassic of Northeastern China[J]. Zookeys, 2014, 466: 77-94. [16] LIU S L, SHIH C K, BASHKUEV A, et al. New Jurassic hangingflies (Insecta: Mecoptera: Bittacidae) from Inner Mongolia, China[J]. Zootaxa, 2016, 4067(1): 65-78. [17] PETRULEVIČIUS J F, HUANG D Y, REN D. A new hangingfly (Insecta: Mecoptera: Bittacidae) from the Middle Jurassic of Inner Mongolia, China[J]. African Invertebrates, 2007, 48: 145-152. [18] NOVOKSHONOV V G. Early evolution of scorpionflies (Insecta: Panorpida)[M]. Moscow: Nauka, 1997: 140. [19] NOVOKSHONOV V G. Some mesozoic scorpionflies (Insecta: Panorpida=Mecoptera) of the families Mesopsychidae, Pseudopolycentrodidae, Bittacidae, and Permochoristidae[J]. Paleontologicheskij Zhurnal, 1997, 1: 65-71. [20] KOPEĆ K, SOSZYŃSKA-MAJ A, KRZEMIŃSKI W, et al. A new hangingfly(Insecta, Mecoptera, Bittacidae) from the Purbeck Limestone Group(Lower Cretaceous) of southern England and a review of Cretaceous Bittacidae[J]. Cretaceous Research, 2016, 57: 122-130. [21] ZHAO X D, ALEXEI B, CHEN L, et al. The first hangingfly from mid-Cretaceous Burmese amber (Mecoptera: Bittacidae)[J]. Cretaceous Research, 2017, 70: 147-151. [22] LI S, ZHANG W, SHIH C K, et al. A new species of hangingfly (Insecta: Mecoptera: Bittacidae) from the mid-Cretaceous Myanmar amber[J]. Cretaceous Research, 2018, 89: 92-97. [23] BASHKUEV A S. Morphology and relationships of the Bittacid genus Antiquanabittacus Petrulevičius et Jarzembowski, 2004(Mecoptera), with description of three new species from the Lower Cretaceous of SouthEast Siberia[J]. Cretaceous Research, 2023, 148: 105-549. [24] PETRULEVIČIUS J F, JARZEMBOWSKI E A. The first hangingfly(Insecta: Mecoptera: Bittacus)from the Cretaceous of Europe[J]. Journal of Paleontology, 2004, 78: 1198-1201. [25] SHI G H, GRIMALDI D A, HARLOW G E, et al. Age constraint on Burmese amber based on U-Pb dating of zircons[J]. Cretaceous Research, 2012, 37: 155-163. [26] BYERS G W. Hylobittacus, a new genus of North American Bittacidae (Mecoptera)[J]. Journal of the Kansas Entomological Society, 1979, 52: 402-404. [27] TAN J L, HUA B Z. Terrobittacus, a new genus of the Chinese Bittacidae (Mecoptera) with descriptions of two new species[J]. Journal of Natural History, 2009, 43 (45/46/47/48): 2937-2954. [28] 雷朝亮, 荣秀兰. 普通昆虫学[M]. 北京: 中国农业出版社, 2003: 70-73. [29] BECHLY G, SCHWEIGERT G. The first fossil hangingflies(Insecta: Mecoptera: Raptipedia: Cimbrophlebiidae and Bittacidae) from the limestones of Solnhofen and Nusplingen(Upper Jurassic, Germany)[J]. Stuttgarter Beiträge zur Naturkunde(B), 2000, 287: 1-18.
