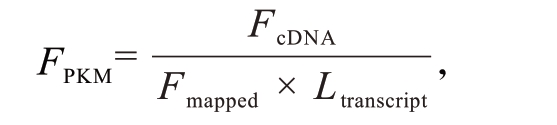
Influence of graphene on different pathways of Castanopsis hystrix roots based on transcriptome analysis*
研究转录组学是为了解释基因组中的功能元件和揭示细胞及组织的分子成分[1]。转录组学是基于脱氧核糖核酸(deoxyribonucleic acid,DNA)微阵列技术对信使核糖核酸(messenger ribonucleic acid,mRNA)表达水平的全基因组测量,主要涉及转录组学的量化、细胞中完整的转录本以及在特定发育阶段和生理条件下的转录本丰度[2]。转录组学的研究对生命科学的所有方面都有重大影响,其提供了从定量和定性分析多种mRNA 基因表达差异的能力。转录组学的主要目标是对所有转录本进行分类,并确定基因的转录状态,量化不同应激条件下基因表达水平的变化[3]。
石墨烯是一种二维单层原子晶体碳纳米材料,具有较大的比表面积,其基底和边缘含有多种含氧官能团。近年来,石墨烯对植物根系生长发育影响的研究引起了科学家的极大兴趣。现有研究表明,石墨烯可以促进多种植物根系的发育。如:姚建忠等[4]研究证实3 mg/L 的石墨烯溶液对欧洲山杨(Populus tremula L.)组培苗植株的不定根伸长、主根形成及不定根数量增加的促进作用最佳;曹慧芬等[5]研究证明0~100 mg/L 的氧化石墨烯溶液对银白杨(Populus alba L.)扦插苗的根系质量和根系指标有显著提升。通过浇灌方式施加石墨烯于植物根系周围土壤,与植物其他部位相比,根系作为与石墨烯直接接触的营养器官,对石墨烯的响应程度相对较大,所以研究植物根系中转录组学数据对石墨烯的特异性响应十分必要。
Chen 等[6]最早揭示了50 mg/L 石墨烯溶液处理对玉米(Zea mays L.)幼苗根系基因表达的影响,石墨烯处理后,玉米根系中的多种转录因子、植物激素信号转导、氮钾代谢转运子等基因均表现出显著上调表达,进而促进了玉米根系的生长;Zhang 等[7]利用石墨烯处理油松(Pinus tabuliformis Carr.)根系后进行转录组学分析,表明石墨烯可诱导根系产生类似于盐胁迫的非生物胁迫反应,大量的代谢过程和激素信号转导途径发生改变,石墨烯的促根系生长作用可能是通过促进脯氨酸的生物合成来实现;Chen 等[8]又利用石墨烯培育了48 种植物根系,并对32 种石墨烯处理过的植物根系样品进行了转录组测序,共鉴定出90 259 个差异表达基因(differen‐tialiy expressed gene,DEGs),其中55 537 个被石墨烯诱导,34 722 个被抑制,这些DEGs 在43 个京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)通路中富集,显著富集的途径包括淀粉和蔗糖代谢、糖酵解/糖异生、丙酮酸代谢、柠檬酸循环、苯丙烷生物合成、谷胱甘肽代谢、内吞作用和过氧化物酶体等。石墨烯通过提高植物根系抗氧化酶的活性,诱导呼吸代谢途径的基因上调表达,导致线粒体呼吸功能升高,进而促进植物根系长度生长。这些研究结果揭示了石墨烯在分子水平上对植物根系生长的影响,为石墨烯在农林业中的应用奠定了重要理论基础数据,有助于石墨烯在农林业中的应用。上述这些研究都可能与石墨烯的反应机制有关,但是石墨烯对重要珍贵林木的研究目前仍是空白。红锥(Castanopsis hystrix Miq.)是在我国南方种植的一种乔木,是家具、造船和建材领域的优质木材之一。基于此,本研究以红锥幼苗为实验材料,利用不同质量浓度的石墨烯溶液(0、25、33 和50 mg/L)处理红锥幼苗,蒸馏水为参照,测定石墨烯处理后的红锥根系数据和转录组分子响应变化,以期继续通过转录组深入挖掘分析揭示红锥幼苗根系响应石墨烯的重要候选基因。
石墨烯由山西大同大学炭材料研究所制备;红锥幼苗由福建省三明市永安市大西坑永林种苗中心提供;寡聚T磁珠(货号:BMDT1000-2 mL)、第1链合成反应缓冲液(5×)(货号:D7182M)、二价阳离子(货号:36301)、DNA 聚合酶I(货号:N224-500U)和RNase H(货号:EN0201,5 U/µL)、USER Enzyme(货号:SV1009)、Phusion High-Fidelity DNA 聚合酶(货号:F530L,2 U/µL)、通用聚合酶链式反应(polymerase chain reaction,PCR)引物、Index(X)和TruSeq PE 聚类试剂盒v4-cBot-HS(Illumina)均购买自北京百迈客生物科技有限公司;SYBR-Green PCR Master mix 试剂盒购自美国TaKaRa Bio 有限公司;莫洛尼氏鼠白血病病毒(moloney murine leukemia virus,M-MLV)逆转录酶(货号:M917872)购自上海麦克林生化科技有限公司;液氮购自大同康健医疗设备有限公司;铝箔纸购自京东商城优奥京东自营旗舰店。实验所用水均为蒸馏水。
使用瑞士Mettler Toledo 公司生产的ME104 分析天平称样品的质量;使用中国上海右一仪器有限公司生产的DHG-9140A 电热鼓风干燥箱烘干石墨烯溶液;使用日本Epson 公司生产的Epson Perfec‐tion V850 Pro 根系扫描仪扫描根系形态等指标;使用美国Beckman Coulter 公司的AMPure XP 系统纯化文库片段;使用美国安捷伦科技有限公司生产的Agilent2100 生物分析仪评估文库品质;利用Illumi‐na NovaSeq 平台测序制备的文库;使用德国Eppen‐dorf 有限公司生产的型号为Mastercycler ep realplex的实时荧光定量聚合酶链式反应(quantitative realtime polymerase chain reaction,qRT-PCR)仪定量分析基因表达量;采用Primer5 软件设计基因特异性正向和反向引物。转录组测试服务委托于北京百迈客生物科技有限公司完成。
石墨烯原液质量浓度的计算方法为:将50 mL 石墨烯溶液于80 ℃烘干,称量石墨烯固体质量,平行测量3组取平均值,再用蒸馏水稀释到所需质量浓度。
将大小一致的红锥幼苗分成4 组,每组30 株,种植于育苗袋中并在幼苗上挂标记牌。用0、25、33和50 mg/L 质量浓度的石墨烯溶液浇灌育苗袋,其中0 指以蒸馏水培育,每次500 mL,每周4 次,分别标记为空白组、实验1 组、实验2 组和实验3 组。种植60 d 后取样待测。每组平行培育3 组。
从育苗袋中取出红锥幼苗,用自来水将根系表面的泥土洗干净。利用根系扫描仪分析红锥幼苗的根系形态,并采用WinRHIZO 4.0b 根系分析软件分析根系的总根长、总表面积、根体积、总投影面积、根尖数和根平均直径等。每组每次分析根系30 根,重复3 次。
从育苗袋中取出红锥幼苗,用自来水将根系表面的泥土洗干净后,再用蒸馏水冲洗,吸水纸擦干水分,剪下侧根用铝箔纸包装并标记,置于液氮中冷冻,−80 °C 保存直至提取RNA。
使用植物RNA 试剂盒提取幼苗根系的总RNA。(1)利用寡聚T磁珠从总RNA 中纯化mRNA。首先,用生物素标记寡聚核苷酸(oligonucleotide,OligoT),亲和素标记磁珠;其次,将生物素标记的OligoT 与mRNA 的多聚polyA 高效杂交形成复合体,此复合体与标有亲和素的磁珠结合;最后,用无RNA 水解酶(RNase)的去离子水将mRNA 从复合物中洗脱下来,得到纯化的mRNA。(2)在NEBNext第1 链合成反应缓冲液(5×)中,使用二价阳离子进行高温裂解。(3)通过随机六聚体引物和M-MuLV 逆转录酶合成互补DNA(complementary DNA,cDNA)第1 链。(4)使用DNA 聚合酶I和RNase H 得到第2 链cDNA。(5)末端使用核酸外切酶/聚合酶处理为钝端,将腺苷化3'端DNA 片段后杂交具有发夹环结构的NEBNext Adaptor,使用AMPure XP 系统对文库片段纯化,得到长度约为300 bp 的cDNA。(6)取3 μL USER Enzyme 与cDNA 孵育,37 °C 孵育15 min、95 °C 孵育5 min,再加入Phusion High-Fideli‐ty DNA 聚合酶、通用PCR 引物和Index(X)引物进行PCR 扩增。(7)纯化PCR 产物,并评估文库品质。
根据厂家的说明书,使用cBot 聚类系统和TruSeq PE 聚类试剂盒v4-cBot-HS(Illumina)对指标编码的样本进行聚类。聚类生成后,利用Illumina NovaSeq 平台进行测序,生成150 bp 的配对末端序列。每组均重复3 次。
转录组测试数据已经上传到国家基因组科学数据中心组学原始数据(Genome Sequence Archive,GSA)数据库(https://bigd.big.ac.cn/),获取号为CRA004180。
使用FASTX-Toolkit(http://hannonlab.cshl.edu/fastx_toolkit/)删除原始数据中低质量的reads(包括poly-N)。由于红锥植物缺乏参考基因组序列,使用Trinity3 软件对转录组数据进行从头组装[9]。只有完全匹配或一个碱基错配的reads 被进一步分析计算基因表达值。
为了解石墨烯如何促进红锥植物根系生长,本文对石墨烯溶液处理后的红锥根系转录组数据进行深入挖掘分析[8]。基因的表达水平用FPKM(fragments per kilobase of exon model per million mapped fragments)值表示,即每千个碱基的转录每百万映射读取的碎片数。计算公式为
式中:FPKM 指FPKM 值;FcDNA 指cDNA 的碎片数;Fmapped指映射的碎片数;Ltranscript指转录长度。
使用软件DESeq2[10]进行组间差异表达分析,结果的P 值使用Benjamini 和Hochberg 的方法来控制错误发现率(false discovery rate,FDR)。P 值调整后<0.01 且表达量变化为2 倍(上调或者下调)的基因被定义为DEGs。用TBtools 软件(v1.09876)[11]显示FPKM 值代表的基因表达水平。
为探讨确定红锥基因对石墨烯溶液处理后不同反应的生物学功能,对根系生长变化最明显的根系DEGs 进行富集性分析。DEGs 通过KEGG 通路分析,明确其功能分类。根据以下数据库进行功能注释:Nr 代表美国国家生物技术信息中心(National Center of Biotechnology Information,NCBI)非冗余蛋白库,http://ftp.ncbi.nih.gov/blast/db/;Nt 代表NCBI 非冗余核酸序列数据库,http://ftp.ncbi.nih.gov/blast/db/;Pfam 代表同源蛋白家族数据库,http://pfam.xfam.org/;COG 代表蛋白相邻类的聚簇,http://www.ncbi.nlm.nih.gov/COG/;Swiss-Prot 代表UniProt 蛋白质数据库,http://www.uniprot.org/;KO 代表KEGG Ortholog database,http://www.ge‐nome.jp/kegg/。使用KOBAS 软件[12]检测KEGG 通路中DEGs 的统计富集性情况。
生长素(auxin,IAA)、细胞分裂素(cytokinin,CK)、赤霉素(gibberellin,GA)、脱落酸(abscisic ac‐id,ABA)、乙烯(ethylene)、油菜素类固醇(brassino‐steroid,BR)、茉莉酸(jasmonic acid,JA)、水杨酸(salicylic acid,SA)和独角金内酯(soligolactone,SL)共9 种激素在植物生长发育和适应外界变化环境的过程中发挥着重要作用。根据KEGG 数据中注释信息并结合文献整理植物激素信号转导和合成通路,并利用在线绘图工具(https://www.draw.io/)绘制激素信号通路图,DEGs 数据在通路中的可视化通过热图(heatmap)完成。
提取空白组和实验1 组的根系总RNA,用DNA酶I(DNase I)处理得到的RNA,用OligoT 引物和M-MLV 逆转录酶合成cDNA,稀释5 倍后定量分析qRT-PCR。qRT-PCR 方法设计的特异性引物列于表1。注:基因名称由一长串数字+英文组合指转录组数据重头组装。
表1 用于qRT-PCR 分析的正向和反向引物
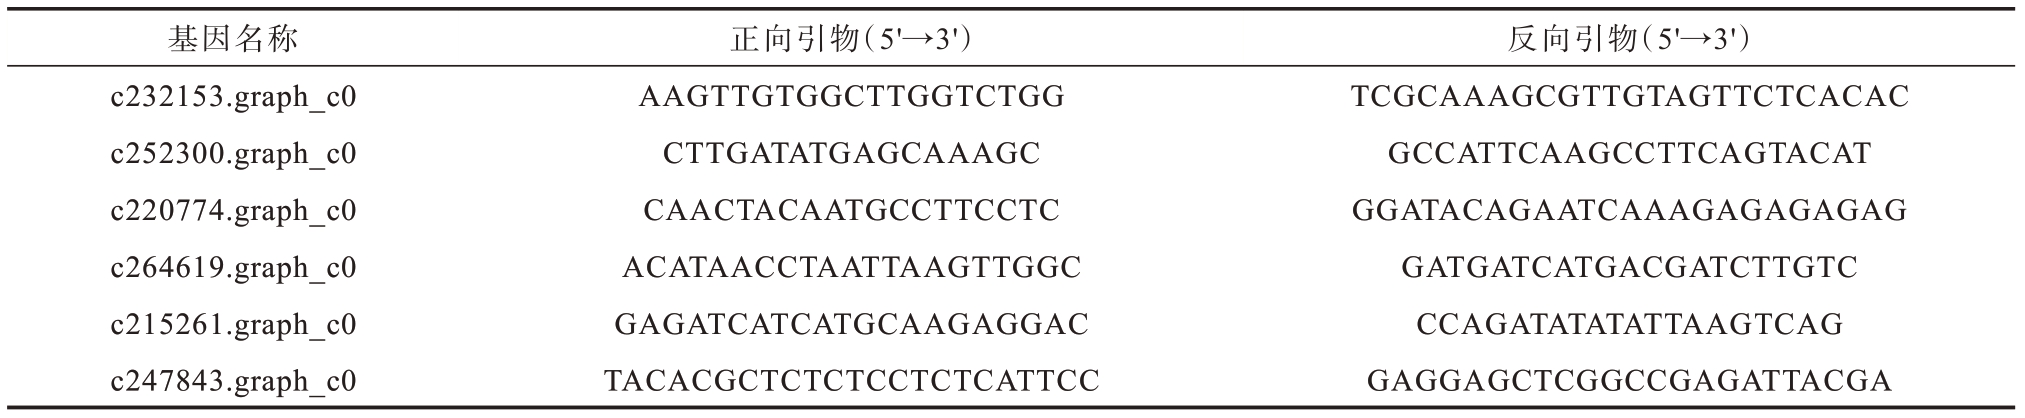
基因名称c232153.graph_c0 c252300.graph_c0 c220774.graph_c0 c264619.graph_c0 c215261.graph_c0 c247843.graph_c0正向引物(5'→3')AAGTTGTGGCTTGGTCTGG CTTGATATGAGCAAAGC CAACTACAATGCCTTCCTC ACATAACCTAATTAAGTTGGC GAGATCATCATGCAAGAGGAC TACACGCTCTCTCCTCTCATTCC反向引物(5'→3')TCGCAAAGCGTTGTAGTTCTCACAC GCCATTCAAGCCTTCAGTACAT GGATACAGAATCAAAGAGAGAGAG GATGATCATGACGATCTTGTC CCAGATATATATTAAGTCAG GAGGAGCTCGGCCGAGATTACGA
数据以 ±S 表示。采用SPSS 19.0 软件进行数据的统计学处理和相关性分析,组间数据比较采用t检验。P<0.05 为差异有统计学意义。
不同质量浓度的石墨烯溶液处理后的红锥幼苗根系形态如图1所示。与空白组相比,3 个实验组均促进了红锥幼苗的根系生长发育,特别是实验1 组,即在石墨烯质量浓度为25 mg/L 时,促进效果最佳(图1(b)),实验2 和3 组效果次之。其中,25 mg/L 石墨烯处理后,红锥幼苗的总根长、根体积和根尖数量均有所增加。
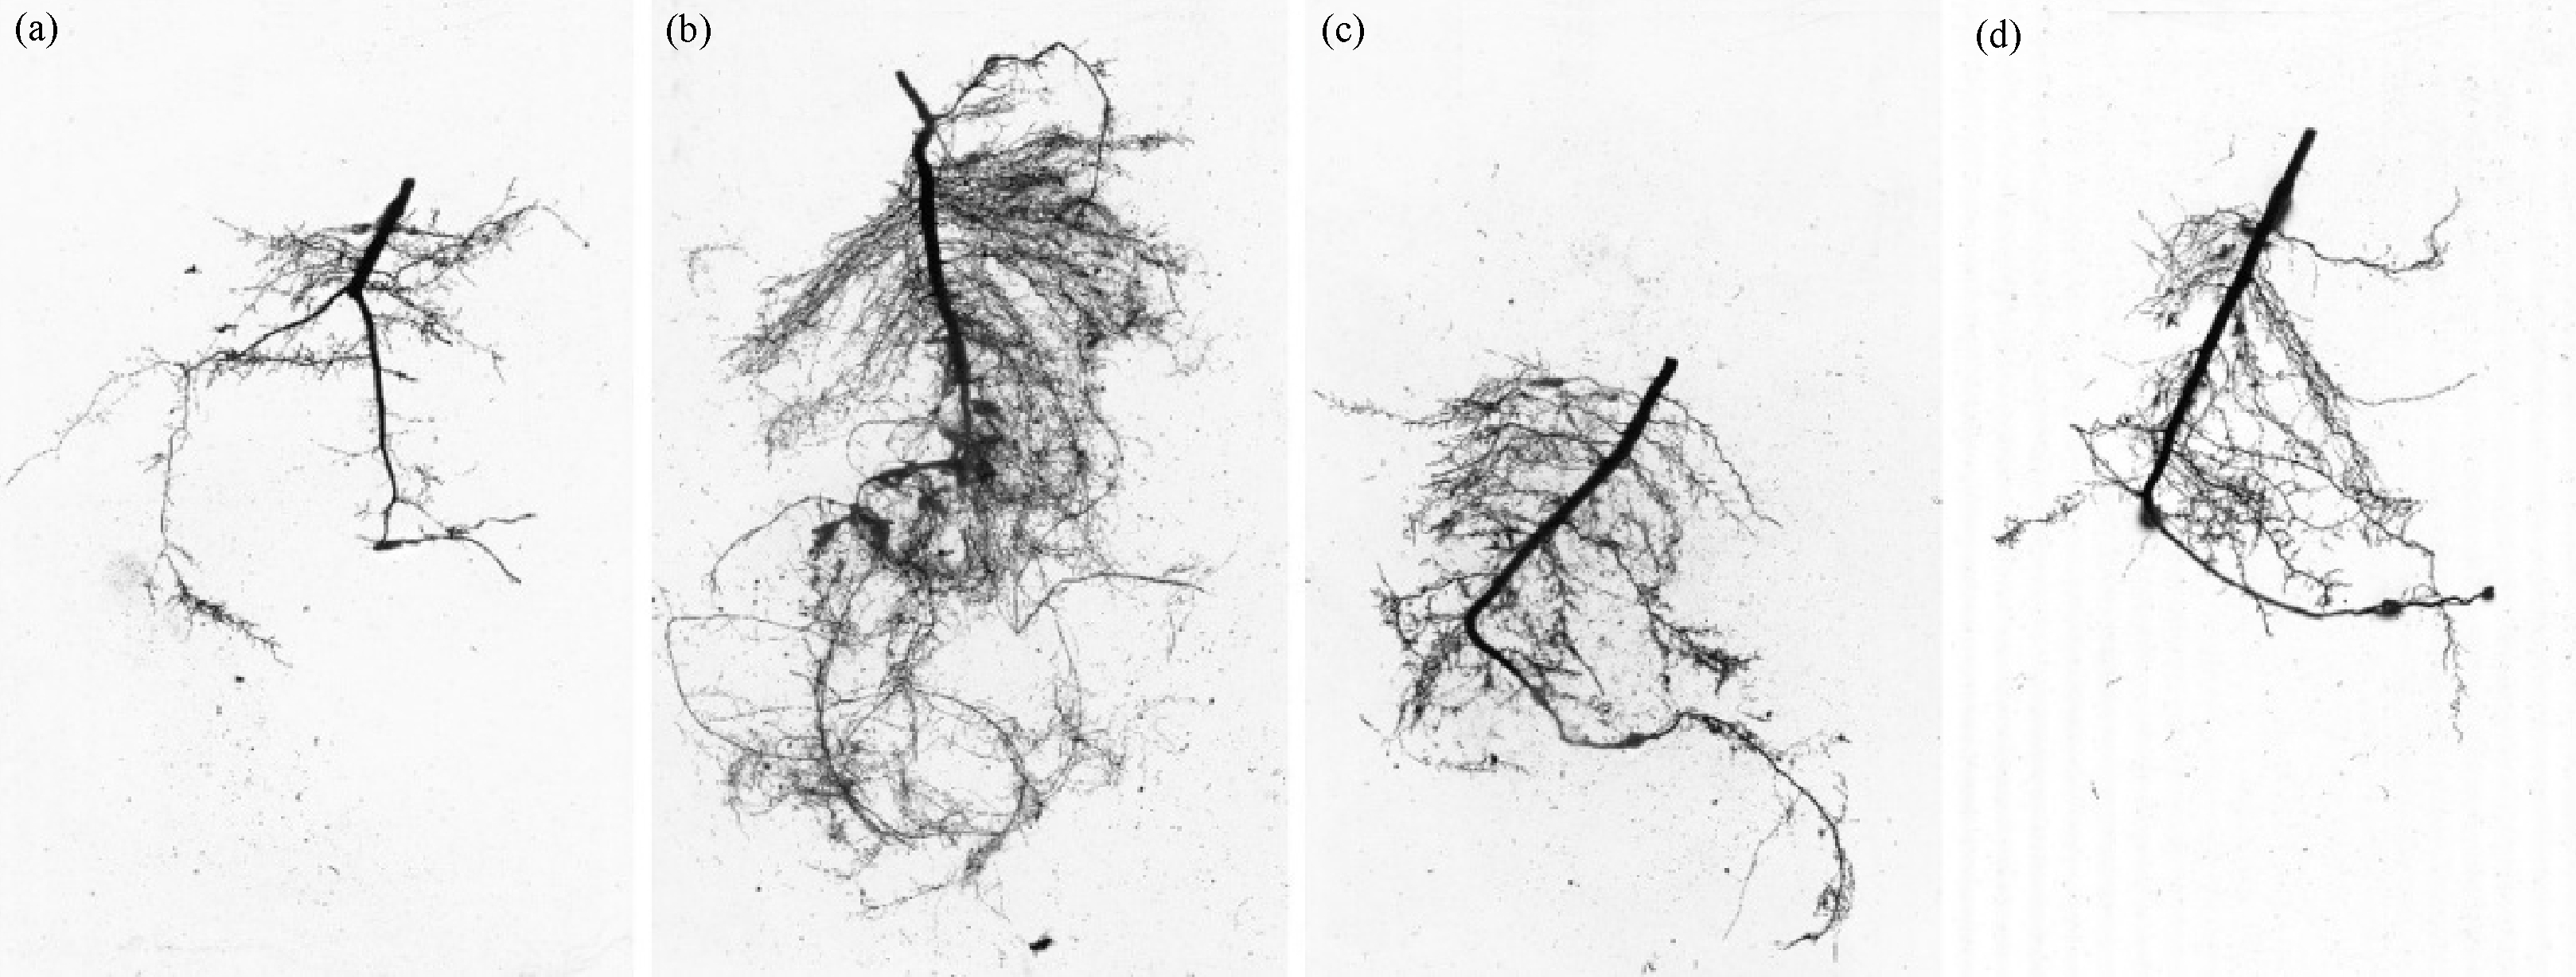
图1 不同组石墨烯溶液处理后红锥幼苗根系形态(a)空白组;(b)实验1 组;(c)实验2 组;(d)实验3 组
不同质量浓度的石墨烯溶液处理后的红锥幼苗根系的总根长、总表面积、根体积、总投影面积、根尖数和根平均直径结果列于表2。空白组和实验1~3 组红锥幼苗根系的总长度分别为(84.25±14.74)和(107.59±3.43~218.78±38.47)cm。与空白组相比,实验1、2 和3 组根系总长度均显著增加(t=5.66、3.10和2.96,P<0.05),增加幅度为1.3~2.6 倍。空白组和实验1~3 组红锥幼苗根系的总表面积分别为(11.78±0.87)和(13.54±1.34~19.91±3.08)cm2。与空白组相比,实验1 和2 组根系总表面积显著增加(t=4.40 和5.63,P<0.05),增加幅度为1.4 和1.7 倍。空白组和实验1~3 组红锥幼苗根系的总体积分别为(0.25±0.06)和(0.28±0.01~0.74±0.09)cm3。与空白组相比,实验1 和2 组根系总体积显著增加(t=7.80 和4.49,P<0.05),增加幅度为1.7 和3.0 倍;实验3 组根系总体积变化差异无统计学意义(P>0.05)。空白组和实验1~3 组红锥幼苗根系的总投影面积分别为(11.20±1.87)和(11.99±0.41~14.38±0.46)cm2。与空白组相比,实验1 组根系总投影面积显著增加(t=2.86,P<0.05),增加幅度为1.3 倍;实验2 和3 组根系总投影面积变化差异无统计学意义(P>0.05)。空白组和实验1~3 组红锥幼苗根系的总根尖数分别为(3 042±1 019)和(2 637±808~19 495±4 750)根。与空白组相比,实验1 和2 组根系的总根尖数显著增加(t=5.87 和6.14,P<0.05),增加幅度为3.8 和6.4 倍。空白组和实验1~3 组红锥幼苗根系的平均直径分别为(0.33±0.06)和(0.27±0.03~0.33±0.14)mm。与空白组相比,实验1~3 组根系的平均直径增加或降低均不显著(P>0.05)。
表2 不同质量浓度石墨烯溶液处理后红锥幼苗根系发育情况
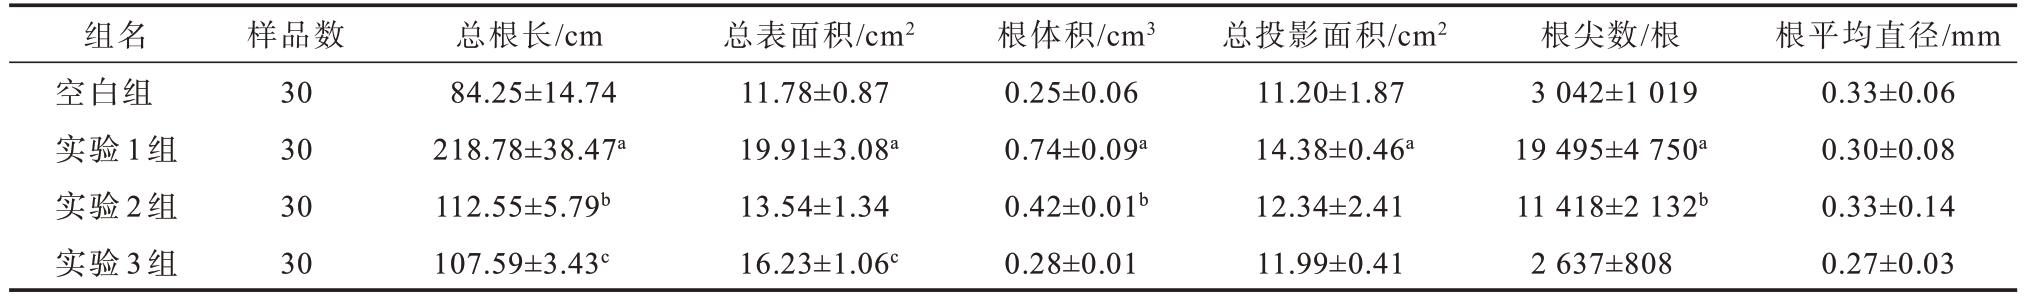
注:与空白组相比,at=5.66、4.40、7.80、2.86 和5.87,bt=3.10、4.49 和6.14,ct=2.96 和5.63,P<0.05。
组名空白组实验1 组实验2 组实验3 组根平均直径/mm 0.33±0.06 0.30±0.08 0.33±0.14 0.27±0.03样品数30 30 30 30总根长/cm 84.25±14.74 218.78±38.47a 112.55±5.79b 107.59±3.43c总表面积/cm2 11.78±0.87 19.91±3.08a 13.54±1.34 16.23±1.06c根体积/cm3 0.25±0.06 0.74±0.09a 0.42±0.01b 0.28±0.01总投影面积/cm2 11.20±1.87 14.38±0.46a 12.34±2.41 11.99±0.41根尖数/根3 042±1 019 19 495±4 750a 11 418±2 132b 2 637±808
上述结果表明25、33 和50 mg/L 石墨烯溶液处理后会促进红锥幼苗根系发育,综合可知25 mg/L时根系指标最佳。因此,对实验1 组,即石墨烯质量浓度为25 mg/L 处理的红锥幼苗根系进行进一步分析。
转录组数据表明,25 mg/L 石墨烯溶液处理后的红锥根系基因表达量整体上升,共鉴定了12 845 个DEGs,其中石墨烯诱导和抑制的DEGs 分别是10 899 和1 946 个。
DEGs 富集性前20 条KEGG 通路的分析结果如图2所示。上调的DEGs 注释到126 个KEGG 通路,包括内吞作用、RNA 转运、过氧物酶体、玉米素生物合成和脂肪酸代谢等;下调的DEGs 在99 个KEGG通路中显著富集,包括核糖体、苯丙烷类生物合成、光合生物固碳、光合作用、淀粉和蔗糖代谢途径以及植物激素信号转导等。结果表明,石墨烯溶液可以影响红锥根系基因的表达,且这些基因的功能分布于多种代谢路径中。
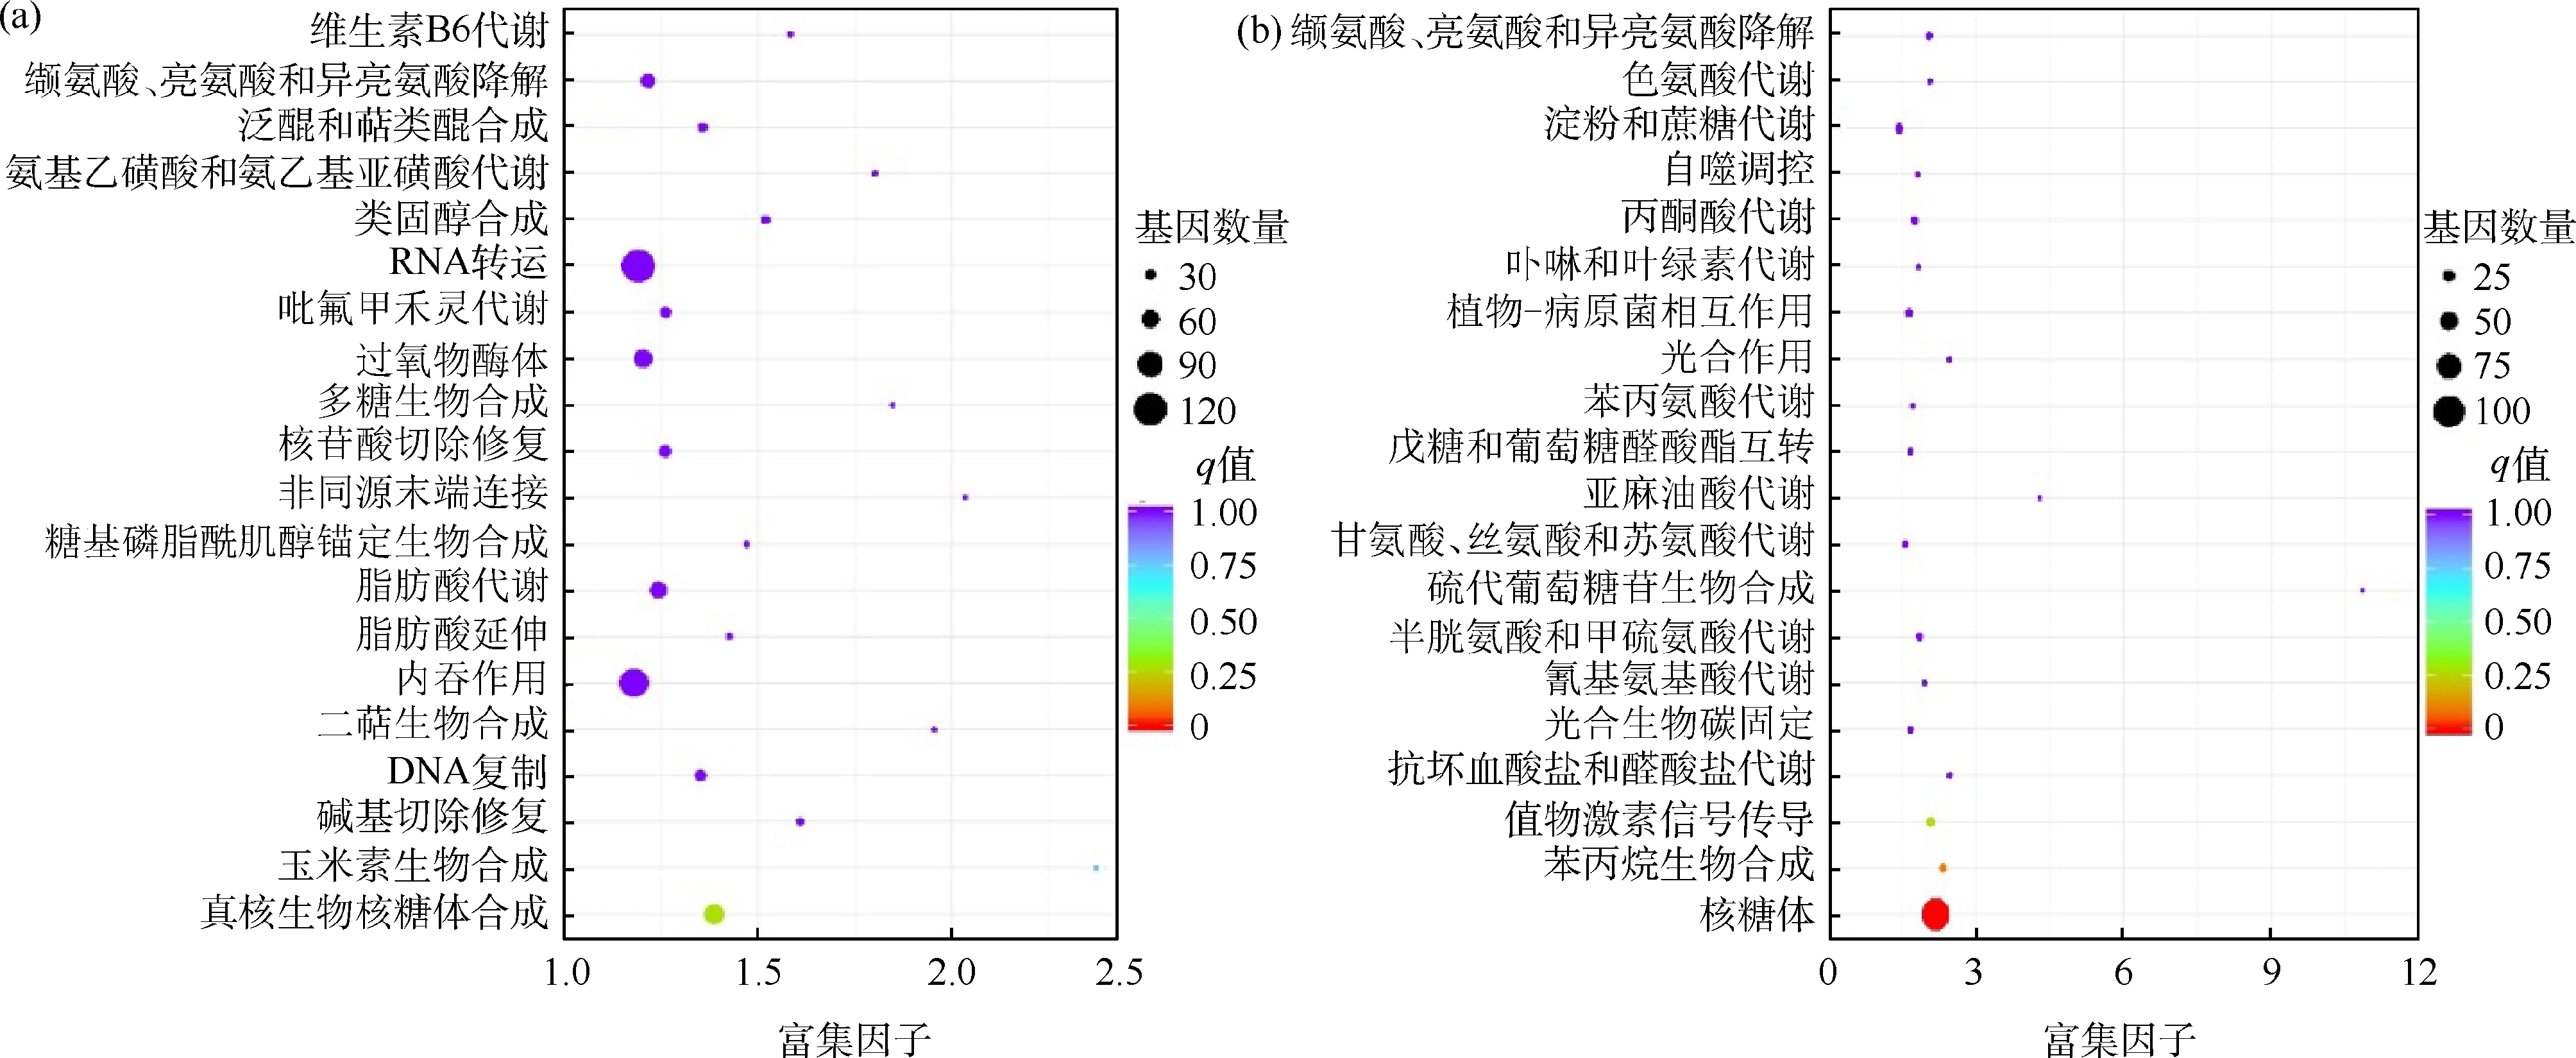
图2 差异表达基因(DEGs)京都基因与基因组百科全书(KEGG)通路富集性分析(a)显著上调的20 条通路;(b)显著下调的20 条通路
石墨烯溶液处理后,基因同源性分析表明“转录因子活性,蛋白结合”在红锥根中显著富集。许多转录因子在石墨烯处理后的红锥根系中,呈现差异表达;共有110 个转录因子基因,分为33 个不同家族,其表达量存在差异,包括乙烯应答因子(ethylene responsive factor,ERF)、WRKY、含有基本的螺旋环螺旋结构域的因子(basic helix-loop-helix,bHLH)、含有MYB 结构域的因子(v-myb avian myeloblasto‐sis viral oncogene homolog,MYB)、NAC、三螺旋类因子(helix-loop-helix-loop-helix,Trihelix)、TCP4、bZIP 以及MADS-box 等。其中转录因子基因上调68 个,下调42 个。红锥根中激活的转录因子基因主要属于ERF、WRKY、MYB、NAC、bHLH、TCP4 和Trihelix 家族,表明这些转录因子基因可能在红锥根中特异性响应石墨烯。空白组和实验1 组的转录因子基因的差异表达结果如图3所示。石墨烯溶液处理红锥根系后,ERF、WRKY、MYB、NAC、bHLH、TCP4 和Trihelix TF 转录因子基因表达量存在差异数分别为26、19、14、2、6、2 和2 个。结合上文数据可推测,改良的根表型可能受到这些差异表达的转录因子基因的影响。因此,这些转录因子基因可能是响应石墨烯的候选基因,同时可能是促进红锥根系发育的原因。
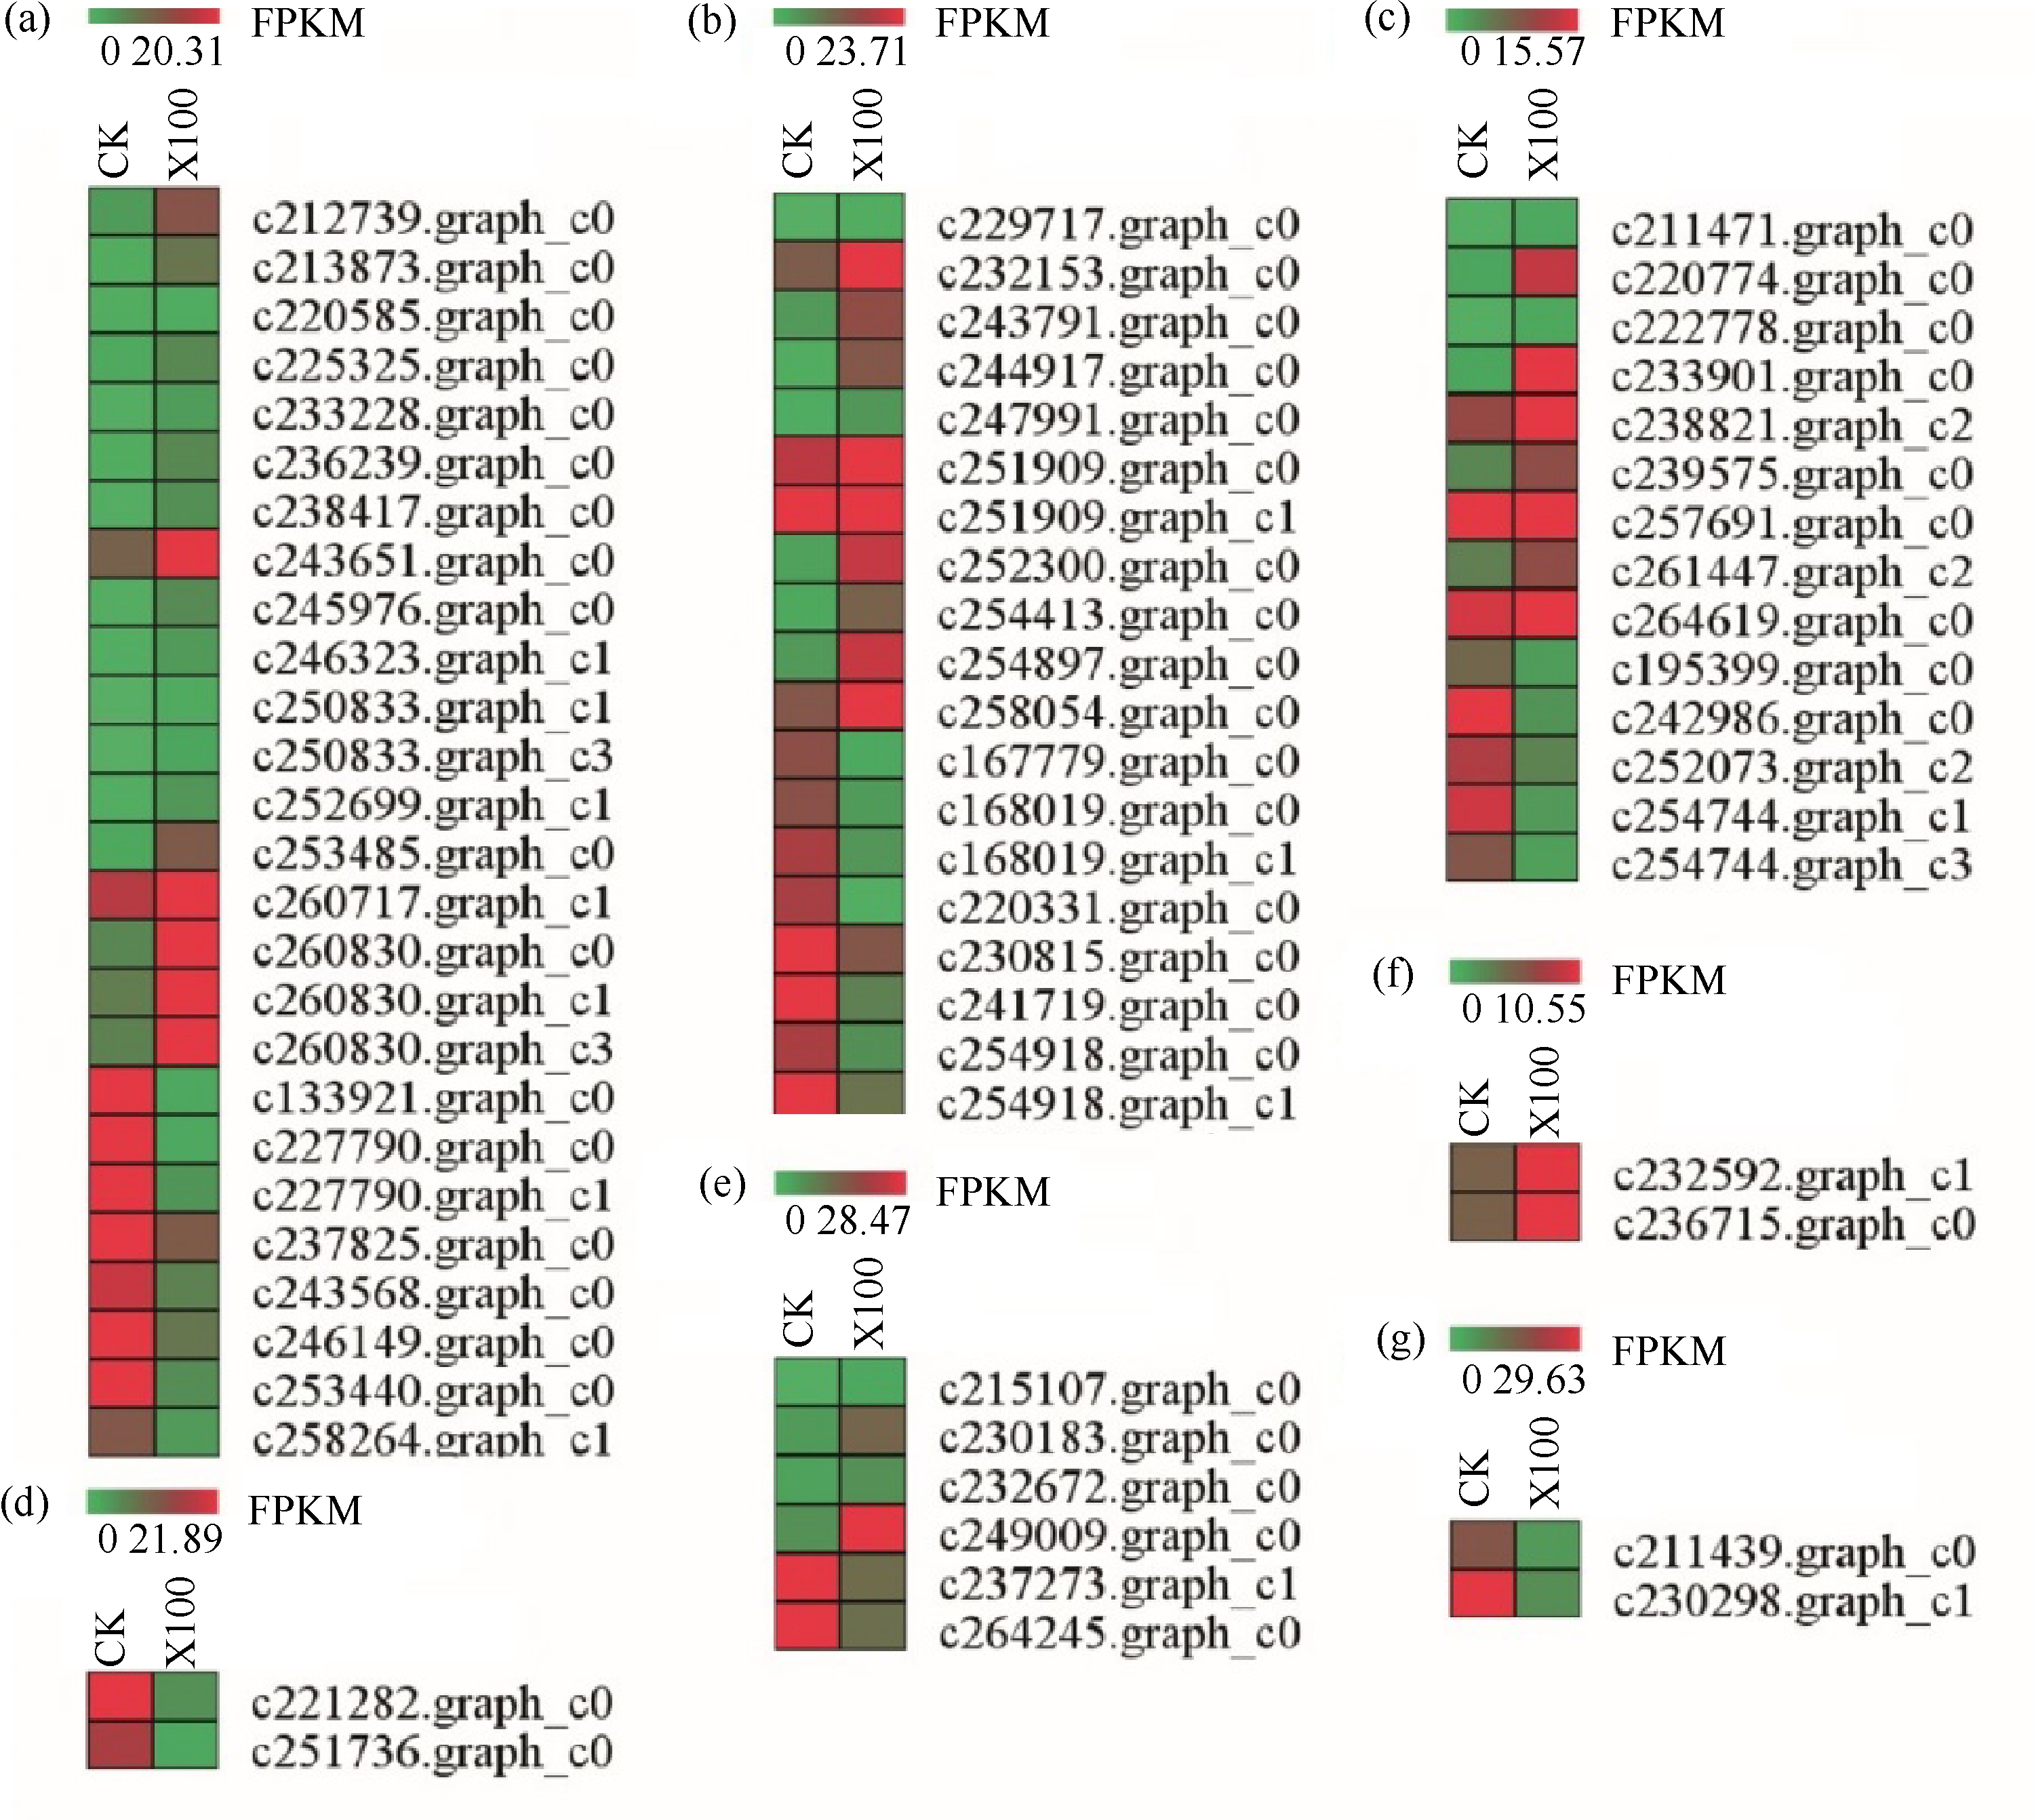
图3 空白组和实验1 组的红锥根系转录因子基因的表达量差异(a)ERF;(b)WRKY;(c)MYB;(d)NAC;(e)bHLH;(f)TCP4;(g)Trihelix
注:彩色条表示DEGs 的每千个碱基的转录每百万映射读取的碎片(FPKM)值;CK 指空白组;X100 指实验1 组;ERF 指乙烯响应因子;WRKY 指WRKY 转录因子;MYB 指MYB 转录因子;NAC 指NAC 转录因子;bHLH 指螺旋环螺旋结构域的因子;TCP4指TCP 转录因子中的一个成员;Trihelix 指三螺旋类因子;每个子图中右侧一长串数字+英文组合指转录组数据重头组装的基因名称。
石墨烯溶液处理后红锥根基因与9 种激素信号转导通路相关的差异表达模式概述如图4所示。17种生长素应答基因在石墨烯条件下在红锥根系中发生差异表达,如:基因c133750.graph_c0(生长素外排载体成分6)、c219691.graph_c1(auxin-responsive protein IAA4)、c241882.graph_c3(auxin-responsive protein IAA14)、c240837.graph_c0(auxin-responsive protein IAA17)和c215261.graph_c0(auxin induced protein 6b like)表达量上调,而c246417.graph_c0(protein AUXIN SIGNALING F-BOX 3 like)、c247843.graph_c0(auxin-responsive protein SAUR72-like)和c261286.graph_c3(auxin-responsive protein SAUR36-like)表达量下调,这些结果表明石墨烯和生长素信号之间存在相互作用;生长素通过改变与根系生长调节有关的基因表达来调节植物对石墨烯的反应。玉米素是CK 家族的一员,CK 是一类植物激素,参与植物生长发育的各种过程。石墨烯处理下,与玉米素生物合成途径相关的9 个基因表达量显著上调,表明细胞分裂素含量升高。与GA 通路相关的5 个基因也表达上调,包括c196778.graph_c0(GA3 氧化酶1)、c214517.graph_c0(GA20氧化酶1)、c234540.graph_c0(GA20 氧化酶2 样)、c165277.graph_c0(GA3-beta-双加氧酶1 样)和c240342.graph_c0(GA 调控蛋白14)。然而,基因c238654.graph_c0(gibberellin receptor GID1C-like)被抑制。其他基因参与乙烯、SA、BR 和SL 代谢基因,包括c246680.graph_c1(ETHYLENE INSENSI‐TIVE 3-like 1 protein)、c230981.graph_c0(ETR7 乙烯受体)、c246900.graph_c0(SA 结合蛋白2 样)、c249311.graph_c2(BR 不敏感 1)和 c211356.graph_c0(SL 酶D14)基因表达量存在差异。综上结果表明,石墨烯可能影响植物体内的内源性激素含量,激素可能通过形成一个复杂的调节网络与石墨烯发生相互作用。
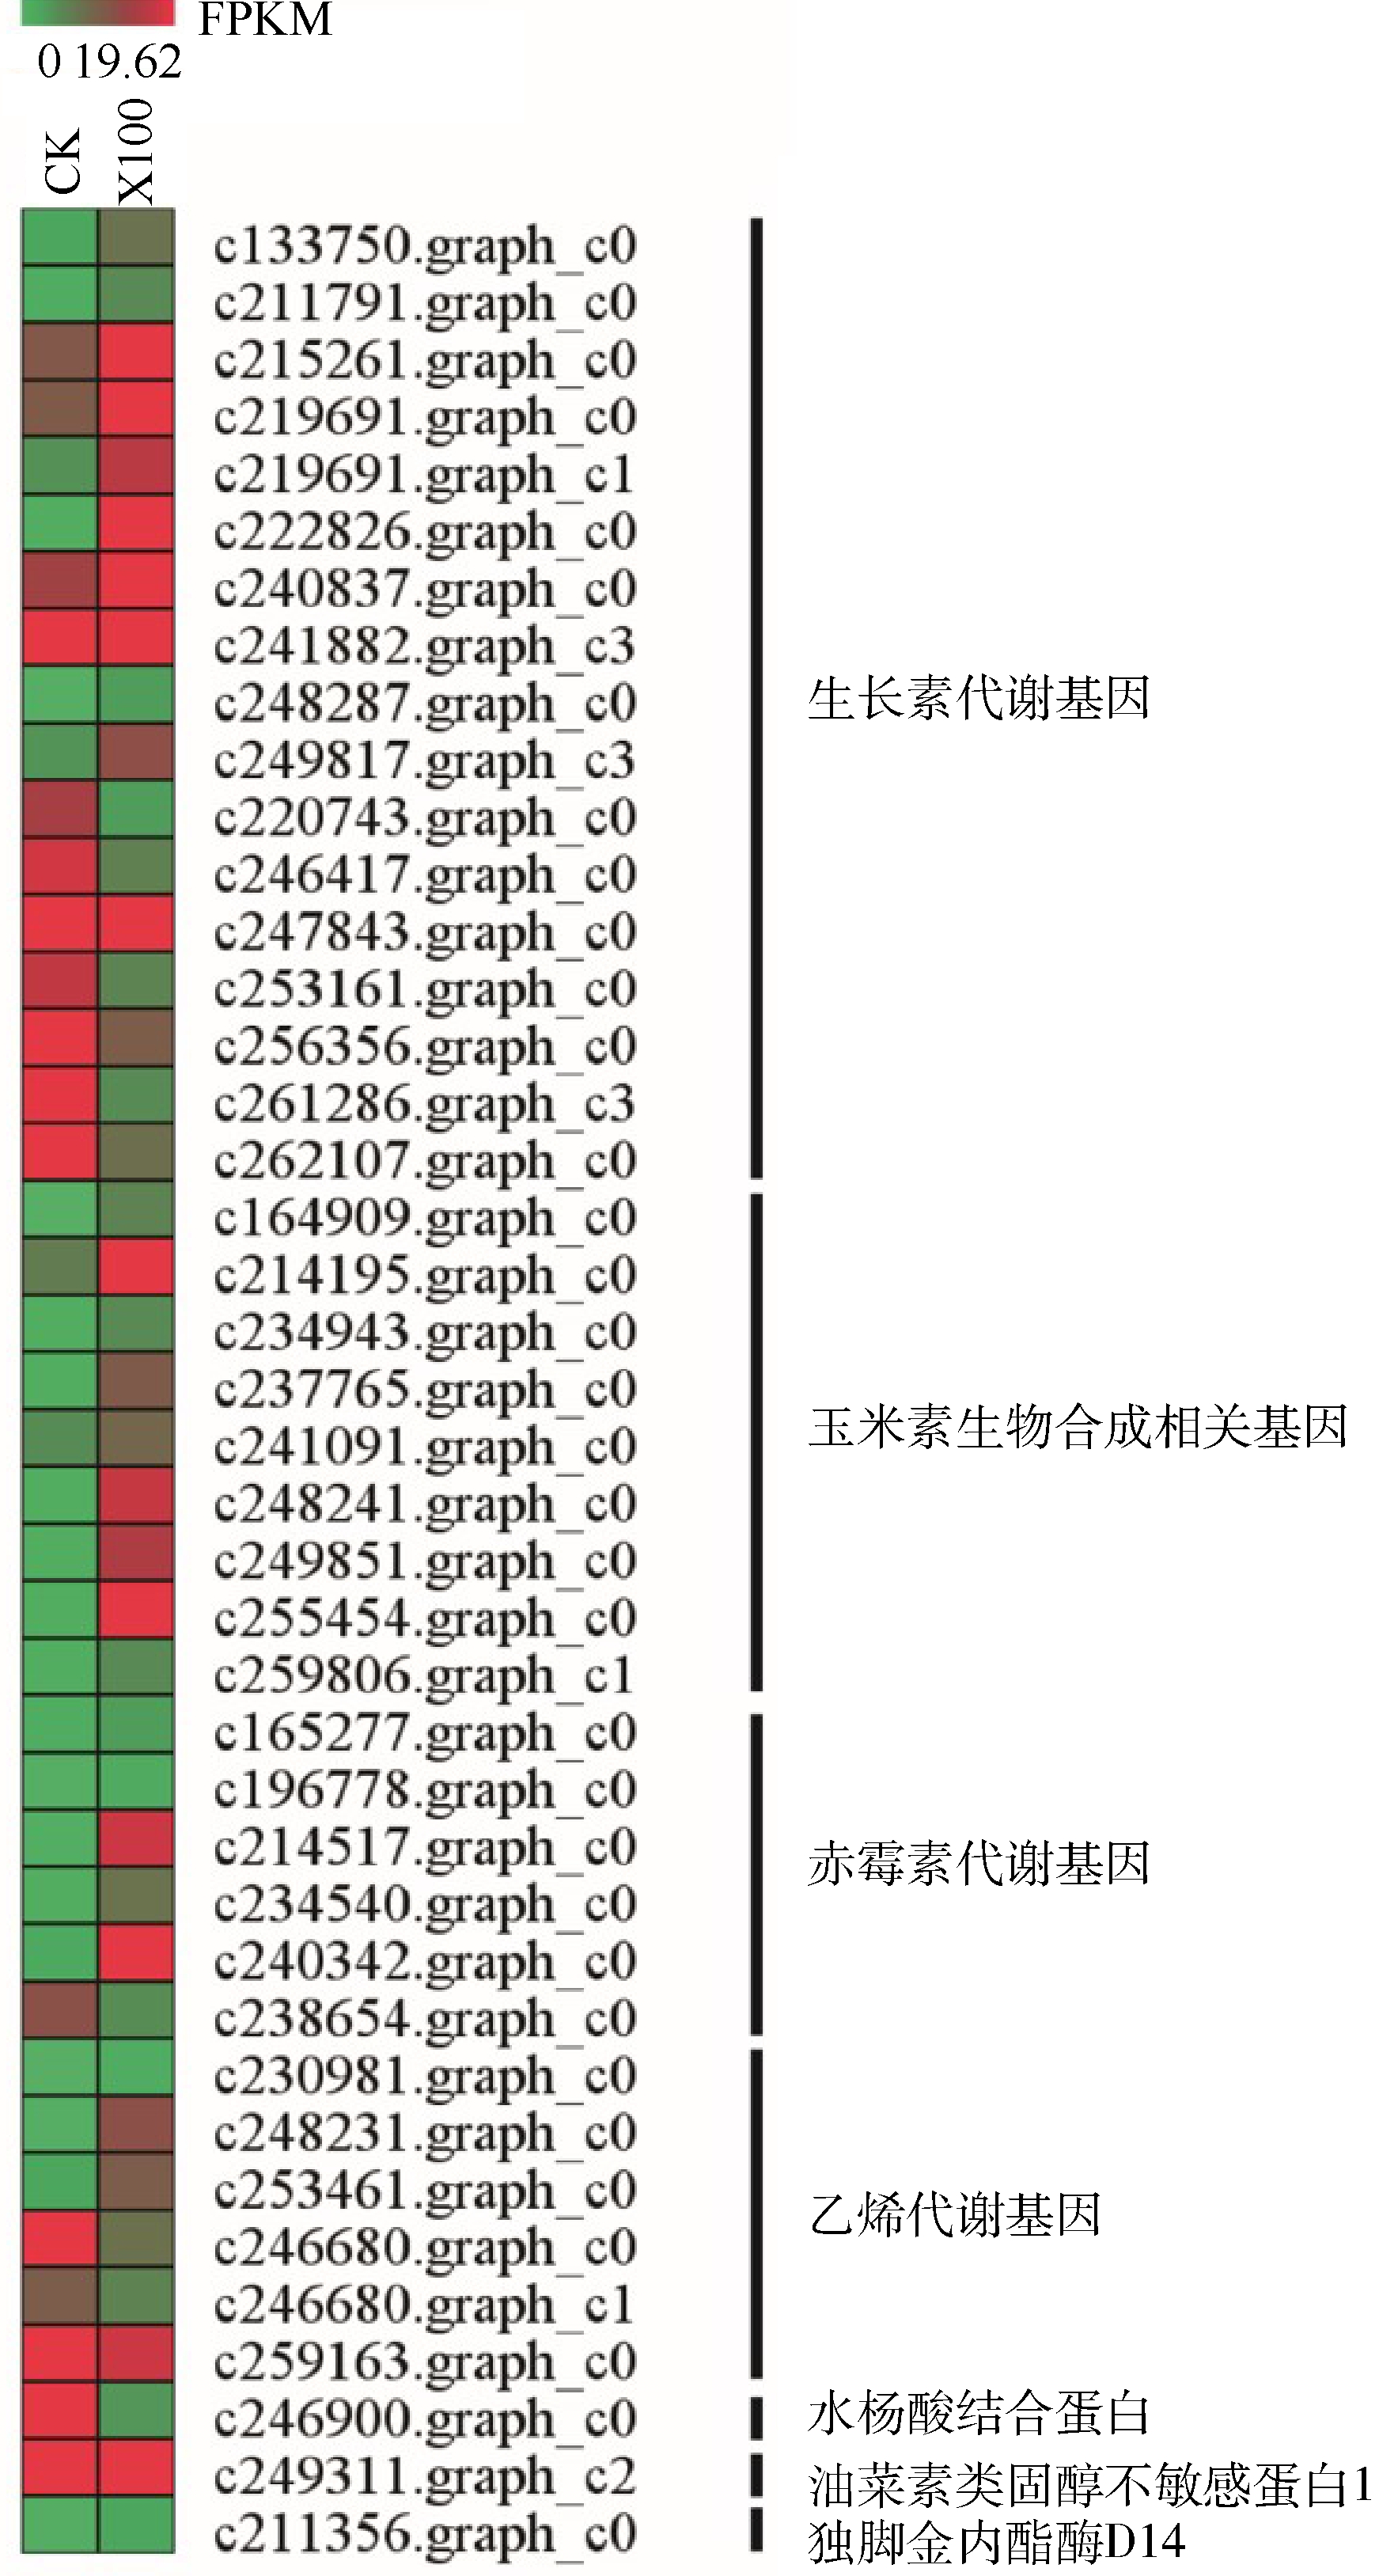
图4 参与激素信号通路的DEGs
为了验证转录组数据获得的DEGs 准确性,研究通过筛选6 个DEGs,包括4 个转录因子基因和2 个生长素代谢基因。qRT-PCR 验证转录组数据获得的DEGs 结果列于表3。结果表明6 个DEGs在转录组数据中的表达量倍数变化范围为0.3~7.7 倍,而qRT-PCR 数据的倍数变化范围为0.4~6.3 倍,这些转录本在qRT-PCR 和转录组实验中表现出相似的表达(上调或下调)模式,且2 组数据之间的相关系数为0.95,证实了本研究转录组数据的可靠性。
表3 转录组和qRT-PCR 获得的DEGs
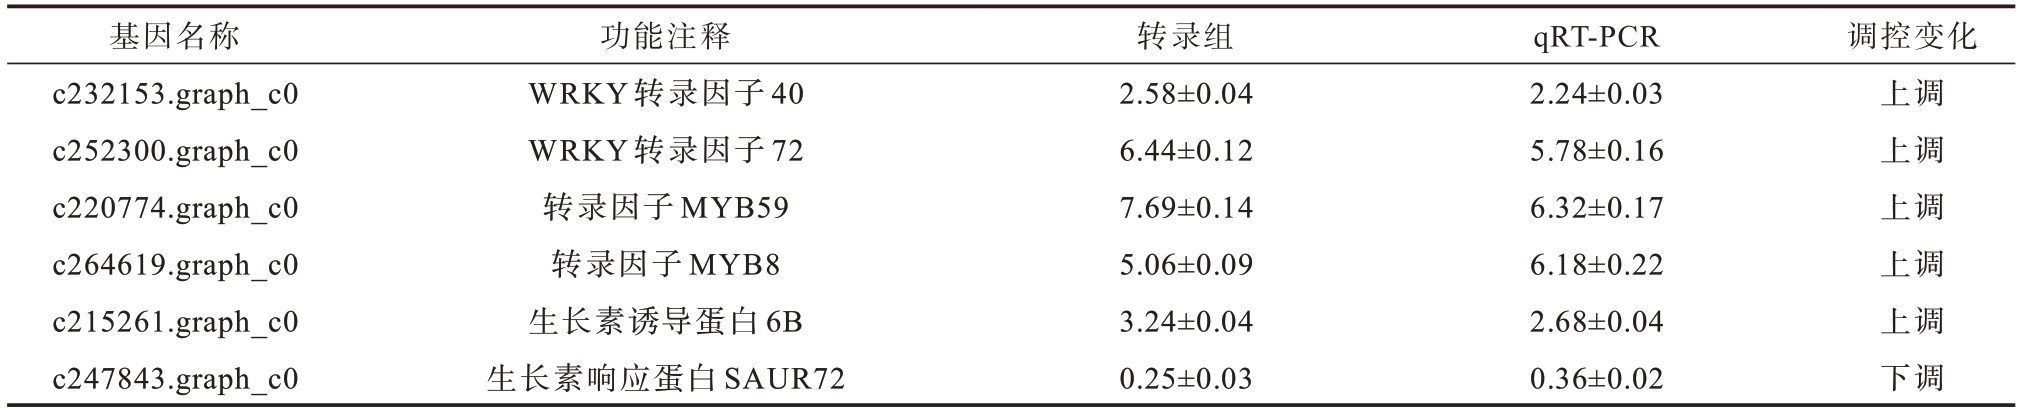
注:qRT-PCR 为实时荧光定量聚合酶链式反应。
基因名称c232153.graph_c0 c252300.graph_c0 c220774.graph_c0 c264619.graph_c0 c215261.graph_c0 c247843.graph_c0功能注释WRKY 转录因子40 WRKY 转录因子72转录因子MYB59转录因子MYB8生长素诱导蛋白6B生长素响应蛋白SAUR72转录组2.58±0.04 6.44±0.12 7.69±0.14 5.06±0.09 3.24±0.04 0.25±0.03 qRT-PCR 2.24±0.03 5.78±0.16 6.32±0.17 6.18±0.22 2.68±0.04 0.36±0.02调控变化上调上调上调上调上调下调
在林木领域中,新型碳纳米材料石墨烯应用越来越广泛。红锥作为重要的速生乔木,其木料材质优良,经济价值高,所以研究石墨烯对红锥生长的影响很有必要。本研究选取的3 个石墨烯质量浓度都对红锥根系发育有促进作用,其中25 mg/L 的石墨烯浓度的效果最佳。Guo 等[13]研究表明氧化石墨烯在特定浓度范围内,促进番茄(Solanum lycopersi‐cum L.)幼苗和成熟植株根系发育,增加生物量积累;Jiao 等[14]研究认为石墨烯对烟草(Nicotiana tabacum L.)幼苗根系生长有抑制作用;刘泽慧等[15]表明25 mg/L 石墨烯溶液可以提高蚕豆(Vicia faba L.)幼苗的植株高度,增强蚕豆幼苗的光合作用。综合来说,石墨烯对植物根系生长的作用有促进有抑制,对植物根系的作用和石墨烯的浓度相关。
通过对红锥根系转录组进行DEGs 的富集分析,表明石墨烯作用下下调的DEGs 可以注释到光合生物固碳、光合作用、淀粉和蔗糖代谢途径等KEGG 通路,与Chen 等[16]的研究结果相反,猜测原因是由于其研究的是在石墨烯作用下紫花苜蓿(Medicago sativa L.)叶片的转录组,而本文则是在石墨烯作用下红锥根系的转录组,这是测序组织部位不同导致的。石墨烯作用下上调表达量的DEGs与内吞作用、玉米素生物合成有关,猜测石墨烯可以增强根系细胞膜对外界物质的吸收,促进细胞分裂素的合成,加速根系细胞生长,促进根系发育。
转录因子通过结合目的基因从而保证目的基因定时定量的表达,对植物生长具有重要作用[17]。许多研究证明,植物根和毛状体的发育可被ERF[18]、WRKY[19]、bHLH[20]、MYB[21]、NAC[22]、Trihelix[23]、TCP4[24]以及MADS-box[25]等转录因子基因调控。比如,大豆植株中WRKY 基因家族中GmWRKY46 基因可以促进大豆植株毛状根的增殖与伸长[26],在拟南芥(Arabidopsis thaliana)中WRKY 家族中基因MfWRKY70 可以促进根系伸长[27],此外,MYB、碱性bHLH 因子和WD40 Repeat(WDR)蛋白在毛状体发育中起着关键作用。这3 组转录因子形成三聚体激活物复合物MYB-bHLHWDR(MBW),正向调控下游靶点的表达,进而诱导毛状体的形成[21]。也有研究表明bHLH 转录因子基因参与水稻、大麦根毛和分生组织的发育[20],NAC转录因子基因调控马铃薯侧根发育,增强小麦的根长[22]。拟南芥中芝麻基因SiMYB75 通过异位表达调控脱落酸的量和减少细胞内活性氧,从而促进了根系的生长[28]。Xu 等[29]研究表明NAC 基因家族中NAC056 基因可以在根系和下胚轴中被硝酸盐激活表达,促进拟南芥根系生长。bHLH 基因家族中基因SbbHLH85 可以调节高粱(Sorghum bicolor L.)根毛的生长,有2 种转录因子(PFA、PFS)可以周期性调节拟南芥侧根生长[30-31]。本研究对石墨烯处理有反应的差异表达转录因子基因有WRKY、MYB、MYB-like、bHLH 和NAC 等,这表明石墨烯可能通过上调转录因子基因的表达来促进红锥根系生长。
生长素是根系发育的重要激素,本研究通过转录组测序富集到了生长素响应基因,表明石墨烯溶液处理红锥根后,有17 个生长素应答基因表达量发生改变,暗示石墨烯可能激活了生长素信号,表明石墨烯和生长素信号之间存在相互作用;早期的研究也证实石墨烯可以在分子水平上影响生长素生物合成而促进番茄根系生长发育,其中,番茄的生长素应答基因SlIAA3 在石墨烯处理过的植物根系中显著下调,但生长素含量显著升高,进而增加了番茄花、果实的数量,加速番茄果实的成熟[13]。植物根系伸长对生长素水平的变化很敏感,IAA 是最常见的天然生长素,可以调节根系结构和生长发育。其他研究表明石墨烯处理后增加的根表面积可以用生长素诱导的休眠中柱鞘细胞的激活和细胞分裂的启动来解释[32];石墨烯增加了生长素应答基因(ARF2、ARF8、IAA2 和IAA3)的转录水平,进而影响甘蓝型油菜(Brassica napus L.)中IAA 的含量[33],以调控其根系生长。石墨烯影响IAA 合成的确切机制及其生物学效应仍有待进一步研究。
本文研究了不同质量浓度的石墨烯溶液对红锥根系发育的影响,以及转录组对石墨烯的响应。实验结果显示25 mg/L 石墨烯显著增加了红锥的总根长、总表面积、根体积、总投影面积和根尖数量。通过转录组分析,石墨烯可以影响红锥根系基因和转录因子的表达;KEGG 通路分析表明,上调的DEGs注释到126个KEGG通路,下调的DEGs在99个KEGG 通路中显著富集;33 个家族110 个转录因子存在基因表达差异,68 个上调、42 个下调,其中转录因子DEGs,如ERF、WRKY、MYB、NAC、bHLH、TCP4 和Trihelix 等7 个家族,可能与红锥根系发育有关;IAA、CK、GA、乙烯、SA、BR 和SL 等7 种激素相关基因存在表达差异,这些激素可能通过形成一个复杂的调节网络对红锥根系发育形成影响。未来可通过生化检测和分子生物学手段,对红锥幼苗整体(根、茎和叶)响应石墨烯的效应进行全面分析。
[1]WANG X F,ELLING A A,LI X Y,et al.Genome-wide andorgan-specificlandscapesofepigenetic modifications and their relationships to mRNA and small RNA transcriptomes in maize[J].Plant Cell,2009,21(4):1053-1069.
[2]NEJAT N,RAMALINGAM A,MANTRI N.Advances in transcriptomics of plants[J].Advances in Biochemical Engineering-Biotechnology,2018,164:161-185.
[3]IMADI S R,KAZI A G,AHANGER M A,et al.Plant transcriptomics and responses to environmental stress:an overview[J].Journal of Genetics,2015,94(3):525-537.
[4]姚建忠,张占才,薛斌龙,等.石墨烯对欧洲山杨组培苗不定根表观形态影响作用的研究[J].山西大同大学学报(自然科学版),2018,34(5):1-4.
[5]曹慧芬,张晓,赵建国,等.氧化石墨烯对银白杨扦插苗生长的影响[J].首都师范大学学报(自然科学版),2021,42(3):31-36.
[6]CHEN Z W,ZHAO J G,SONG J,et al.Influence of graphene on the multiple metabolic pathways of Zea mays roots based on transcriptome analysis[J].PLoS One,2021,16(1):e0244856.
[7]ZHANG X,CAO H F,WANG H Y,et al.Effects of grapheneonmorphology, microstructureand transcriptomic profiling of Pinus tabuliformis Carr.roots[J].PLoS One,2021,16(7):e0253812.
[8]CHEN Z W,ZHAO J G,QIAO J,et al.Graphenemediated antioxidant enzyme activity and respiration in plant roots[J].ACS Agricultural Science &Technology,2022,2(3):646-660.
[9]HAAS B J,PAPANICOLAOU A,YASSOUR M,et al.De novo transcript sequence reconstruction from RNAseq using the Trinity platform for reference generation and analysis[J].Nature Protocols,2013,8(8):1494-1512.
[10]LOVE M I,HUBER W,ANDERS S.Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2[J].Genome Biology,2014,15(12):550.
[11]CHEN C,CHEN H,ZHANG Y,et al.Tbtools:an integrative toolkit developed for interactive analyses of big biological data[J].Molecular Plant,2020,13(8):1194-1202.
[12]MAO X Z,CAI T,OLYARCHUK J G,et al.Automated genome annotation and pathway identification using the KEGG Orthology(KO)as a controlled vocabulary[J].Bioinformatics,2005,21(19):3787-3793.
[13]GUO X H,ZHAO J G,WANG R M,et al.Effects of graphene oxide on tomato growth in different stages[J].Plant Physiology and Biochemistry,2021,162:447-455.
[14]JIAO J,YUAN C,WANG J,et al.The role of graphene oxide on tobacco root growth and its preliminary mechanism[J].Journal of Nanoscience and Nanotechnology,2016,16(12):12449-12454.
[15]刘泽慧,陈志文,赵建国,等.石墨烯对蚕豆生长发育的效应研究[J].首都师范大学学报(自然科学版),2020,41(5):33-39.
[16]CHEN Z,NIU J,GUO Z,et al.Graphene enhances photosynthesis and the antioxidative defense system and alleviates salinity and alkalinity stresses in alfalfa(Medicago sativa L.)by regulating gene expression[J].Environmental Science(Nano),2021,8(9):2731-2748.
[17]JOANA B,CLAUDIA M,LISA R,et al.The transcription factor Ndt80 is a repressor of Candida parapsilosis virulence attributes[J].Virulence,2021,12(1):601-614.
[18]KITOMI Y,ITO H,HOBO T,et al.The auxin responsive AP2/ERF transcription factor CROWN ROOTLESS5 is involved in crown root initiation in rice through the induction of OsRR1,a type-A response regulator of cytokinin signaling[J].Plant Journal,2011,67(3):472-484.
[19]LI S,NAYAR S,JIA H,et al.The Arabidopsis hypoxia inducible AtR8 long non-coding RNA also contributes to plant defense and root elongation coordinating with WRKY genes under low levels of salicylic acid[J].Noncoding RNA,2020,6(1):8.
[20]MAKKENA S,LAMB R S.The bHLH transcription factor SPATULA regulates root growth by controlling the size of the root meristem[J].BMC Plant Biology,2013,13(1):1.
[21]WANG S,WANG J W,YU N,et al.Control of plant trichome development by a cotton fiber MYB gene[J].Plant Cell,2004,16(9):2323-2334.
[22]ZHANG L,YAO L,ZHANG N,et al.Lateral root development in potato is mediated by stu-mi164 regulation of NAC transcription factor[J].Frontiers in Plant Science,2018,9:383.
[23]SHIBATA M,FAVERO D S,TAKEBAYASHI R,et al.Trihelix transcription factors GTL1 and DF1 prevent aberrant root hair formation in an excess nutrient condition[J].New Phytologist,2022,235(4):1426-1441.
[24]CAO J F,ZHAO B,HUANG C C,et al.The miR319-targeted GhTCP4 promotes the transition from cell elongation to wall thickening in cotton fiber[J].Molecular Plant,2020,13(7):1063-1077.
[25]YU L H,MIAO Z Q,QI G F,et al.MADS-box transcription factor AGL21 regulates lateral root development and responds to multiple external and physiological signals[J].Molecular Plant,2014,7(11):1653-1669.
[26]LIU X Q,YANG Y M,WANG R Y,et al.GmWRKY46,a WRKY transcription factor,negatively regulates phosphorus tolerance primarily through modifying root morphology in soybean[J].PlantScience,2022,315:111148.
[27]XIANG X Y,CHEN J,XU W X,et al.Dehydrationinduced WRKY transcriptional factor MfWRKY70 of Myrothamnus flabellifolia enhanced drought and salinity tolerance in Arabidopsis[J].Biomolecules,2021,11(2):327.
[28]DOSSA K,MMADI M A,ZHOU R,et al.Ectopic expression of the sesame MYB transcription factor SiMYB305 promotes root growth and modulates ABAmediated tolerance to drought and salt stresses in Arabidopsis[J].AoB Plants,2020,12(1):plz081.
[29]XU P P,MA W,HU J B,et al.The nitrate-inducible NAC transcription factor NAC056 controls nitrate assimilation and promotes lateral root growth in Arabidopsis thaliana[J].PLoS Genetics,2022,18(3):e1010090.
[30]SONG Y S,LI S M,SUI Y,et al.SbbHLH85,a bHLH member,modulates resilience to salt stress by regulating root hair growth in sorghum[J].Theoretical and Applied Genetics,2021,135(1):201-216.
[31]YE Z,NOBUTAKA M,TAKESHI Y,et al.Two types of bHLH transcription factor determine the competence of the pericycle for lateral root initiation[J].Nature Plants,2021,7(5):633-643.
[32]IVANCHENKO M G,NAPSUCIALYMENDIVIL S,DUBROVSKY J G.Auxin-induced inhibition of lateral root initiation contributes to root system shaping in Arabidopsis thaliana[J].Plant Journal,2010,64(5):740-752.
[33]CHENG F,LIU Y F,LU G Y,et al.Graphene oxide modulates root growth of Brassica napus L.and regulates ABA and IAA concentration[J].Journal of Plant Physiology,2016,193:57-63.