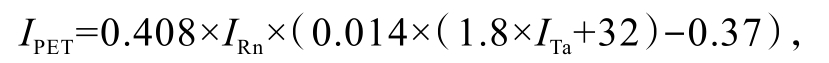
Improvement of water use efficiency stomatal conductance remote sensing model by coupling vegetation index*
水分利用效率(water use efficiency,WUE)常被定义为单位水分消耗下碳的增加量,是深入理解生态系统碳-水过程耦合关系的重要指标[1-3]。探讨区域尺度生态系统WUE的时空变异特征及其控制机制,对于评价和预测全球变化对生态系统碳水过程的影响具有重要的意义[4-5]。以变暖为主要特征的全球变化正在不断地改变着陆地生态系统物质能量循环以及碳水循环过程,构建广泛适用的WUE直接估算模型有助于充分认识碳水循环的相互关系在时间或空间上的变化趋势,为评估陆地水资源对生态系统碳汇的影响提供支撑。
在生态系统水平,WUE通常定义为总初级生产力(gross primary production,GPP)与蒸散发(evapotranspiration,ET)的比值,也称为WUE的间接计算方法。涡度相关技术(eddy covariance,EC)的普及使生态系统水平上直接观测不同时间尺度上的CO2和水汽通量成为可能,WUE也有了通过通量塔长期和连续观测的地面测量值[6]。然而,通量观测在空间上有限,无法对自然生态系统进行充分采样,区域尺度WUE的时空变异性难被量化。虽然生态系统过程模型可以通过较为精确的模拟GPP和ET实现WUE的间接估算,但大量的气象输入数据之间是高度相关且难以获取的。已有研究使用中分辨率成像光谱仪(moderate-resolution imaging spectroradiometer,MODIS)在年度时间尺度上分析了陆地生态系统全球WUE的分布和变化[7],但在较短时间尺度上与通量塔观测WUE存在着较大的不确定性[8]。因此,生态学上常用的WUE间接估算方法存在着较大的弊端和不确定性。
已有研究在WUE的直接估算方法上做了一些尝试,包括WUE的气孔导度模型以及基于遥感植被指数和气象变量的线性经验模型[9-11].Tang 等[12]尝试构建了WUE与遥感植被指数、气象变量和通量数据之间的线性关系,或考虑多个因素的多元线性回归,能在特定站点模拟WUE的季节变化,但经验回归模型的普适性较低并且缺少其他环境因子的优化作用。因此,有研究从气孔导度模型出发,将叶片尺度WUE的分析模型上推到生态系统水平,用于长时间尺度WUE的年际变化研究[10].WUE分析模型考虑了植被的主要生理参数、关键环境因素以及冠层结构的复合影响,提供了一个简单的WUE的理论框架,但模型在8 d尺度的整体表现还需验证和评估。
本文从现有MODIS数据产品间接估算和气孔导度模型直接估算WUE的不确定性出发,以最优气孔导度理论为理论基础,通过耦合遥感监测植被覆盖因子及冠层结构因子,改进温带落叶阔叶林WUE气孔导度模型在8 d尺度的估算精度和适用性,对于进一步理解生态系统碳水循环耦合对环境因子的响应,具有重要的科学意义和应用价值。
研究针对北半球典型的温带落叶阔叶林站点展开,所选站点位于北美东北部和欧洲西部典型的温带落叶阔叶林分布区。温带落叶阔叶林在世界森林中占有相当大的比例,已被确定为储存大气CO2和缓解气候变化的重要源头,也是生物圈中最复杂的生态系统之一。研究是在生态系统水平展开的,选用的基准观测手段为地面通量站点观测,站点所在像元的遥感数据作为模型的主要输入数据。对全球通量观测联盟(Fluxnet)网站(http://fluxnet.ornl.gov/)公开的通量观测站点进行筛选,选取时间跨度10年以上且包含所有变量的连续观测数据。选取的6个AmeriFlux和EuroFlux站点的气象和通量数据(表1[13-18]),用于改进模型参数校准及模型验证,这些站点覆盖了不同地理位置、小气候条件、林龄和物种组成的差异,对温带落叶阔叶林生态系统具有广泛的代表性。表1总结了包括站点名称、纬度、经度、最大叶面积指数(maximum leaf area index,LAImax)及所用数据年份在内的信息。在本研究中,每个站点的后3年为验证数据,用来验证模型的精度,其他为校准数据,用于分析及校准参数。
1.2.1 通量观测数据
研究使用Fluxnet站点3级日尺度气象及通量观测数据,主要包括气温(Ta)、净辐射(Rn)、降水(P)、气压(Pa)、大气中 CO2的物质的量分数(Ca)、大气饱和水汽压差(atmospheric vapor pressure deficit,VPD)以及碳水通量数据等。基于涡度相关技术通量塔可获取站点尺度上连续时间序列陆地生物圈与大气圈的碳水通量数据,计算得到初级生产力及蒸散发,进而可计算基于观测的WUE,用于模型校准及验证。
日尺度数据由半小时数据平均而来,为避免冠层截留蒸发影响及降水期间冠层上方相对湿度高时湍流稳定和传感器饱和对涡度相关测量引起的不确定性,研究对降水期间降水大于潜在蒸散发(potential evapotranspiration,PET)的日数据进行剔除,PET的计算采用净辐射和温度方法:
式中:IPET,IRn,ITa分别为 PET、Rn 和 Ta指数。同时,在通量观测中的能量平衡变化是比较难捕捉的,尤其是在潜热通量(latent heat flux,LE)很小和湍流稳定的时候,WUE计算的离群值也往往由LE观测的不确定性导致,研究对LE<5 W/m2的数据进行剔除。观测的WUE由Fluxnet2015的GPP和ET的涡度相关数据间接计算而来,其中GPP(g(c)(/m2·d-1))选取GPP_DT_CUT_MEAN数据,ET由观测的LE转换而来,LE 选取 LE_F_MDS 数据[7,19]。8 d数据由质量控制后的日尺度数据平均得到,同时对8 d尺度观测WUE数据进行数量控制,研究在不改变数据分布的情况下,采用四分位数法对WUE数据进行质量控制,对高于上四分位数+四分位距(Q3+IQR)的极端异常值进行剔除。
1.2.2 MODIS陆地标准产品
研究所使用的遥感数据由美国对地观测系统MODIS的Terra和Aqua卫星提供,从橡树岭国家实验室的分布式活动档案中心网站下载了通量塔所在的MODIS(Collection 6)像元的8 d陆地标准产品(http://daac.ornl.gov/MODIS/)。数据主要包括地表 反 射 率 、LAI、ET 和 GPP,分 别 从 MOD09A1、MOD15A2、MOD16A2和MOD17A2数据产品中提取,时间分辨率为8 d,空间分辨率为500 m。
MODIS地表反射率用于计算植被指数,通过将8 d时间尺度的MODIS GPP和ET相除,可以间接获得基于MODIS遥感数据产品的生态系统WUE,用于研究的对比验证。为避免卫星观测带来的系统误差,对于MODIS反射率和LAI产品采用取中心像元周围3×3个像元的平均值代表通量塔所在位置的遥感观测数据,这与通量塔覆盖的足迹1.5 km恰好是吻合的。研究同样对植被指数数据用四分位数法进行质量控制,对高于上四分位数+0.8倍的四分位距(Q3+0.8×IQR)和低于下四分位数-0.5倍的四分位距(Q1-0.5×IQR)的极端异常值进行剔除。
表1 Fluxnet站点信息
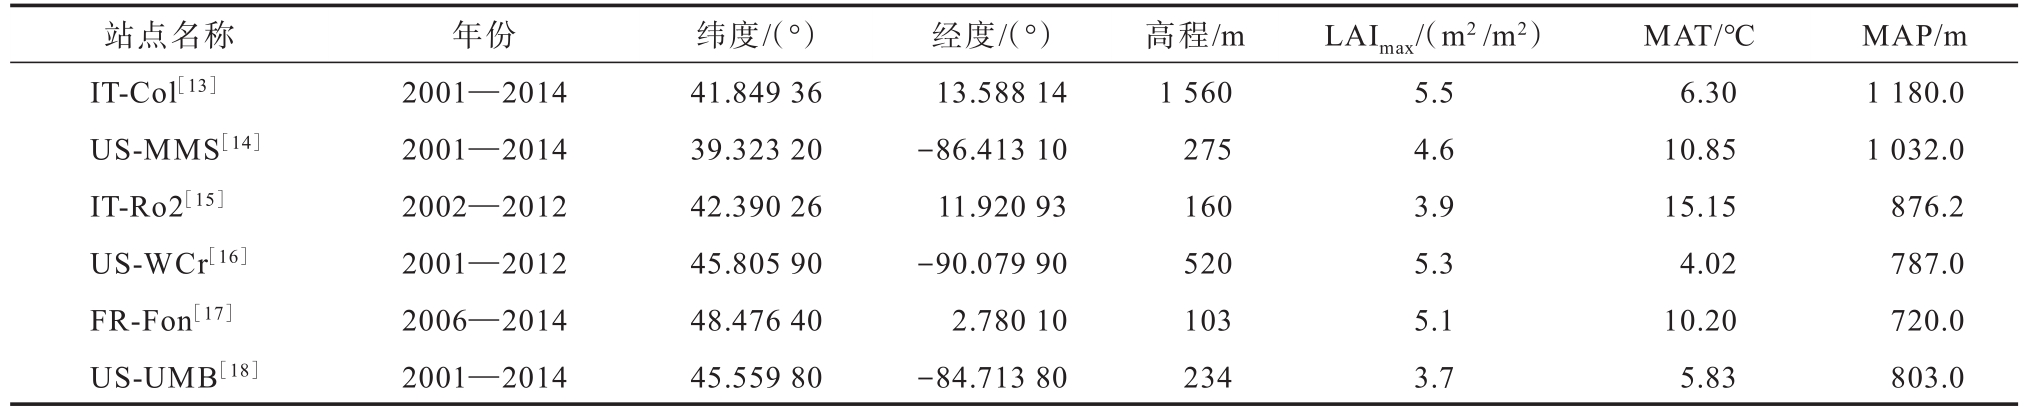
注:LAImax为研究时段最大叶面积指数;MAT为多年平均气温;MAP为多年平均降水。
站点名称 年份 纬度(/°) 经度(/°) 高程/mLAImax(/m2/m2)MAT/℃MAP/m IT-Col[13]2001—201441.849 3613.588 141 5605.56.301 180.0 US-MMS[14]2001—201439.323 20-86.413 102754.610.851 032.0 IT-Ro2[15]2002—201242.390 2611.920 931603.915.15876.2 US-WCr[16]2001—201245.805 90-90.079 905205.34.02787.0 FR-Fon[17]2006—201448.476 402.780 101035.110.20720.0 US-UMB[18]2001—201445.559 80-84.713 802343.75.83803.0
依据相关性及已有研究对植被指数模拟WUE的潜力研究[20],本研究选取表征植被变化最有效的由红色和近红外波段计算的归一化差异植被指数(normalized difference vegetation index,NDVI)[21-22]以及3个谱段(蓝色、红色和近红外波段)反射率计算的增强植被指数(enhanced vegetation index,EVI)[21].NDVI对绿色植物敏感且能线性反映植物分布密度;EVI加入了蓝色波段,矫正土壤背景和气溶胶散射的影响,对植被茂密区敏感,对气孔开闭合敏感,与WUE在生长旺盛期具有较好的一致性。2个植被指数定义为:
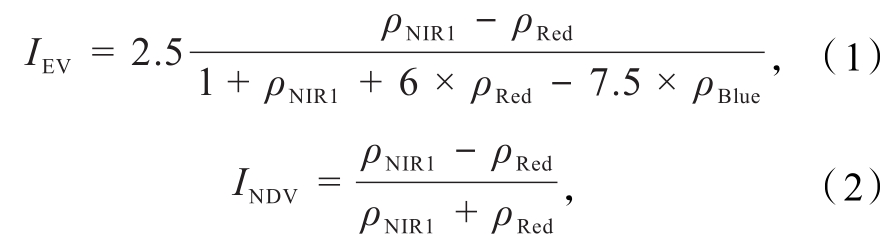
式中:IEV是增强植被指数,INDV为归一化植被指数,ρNIR1、ρRed和ρBlue分别是近红外波段、红色波段和蓝色波段MODIS波段2、1和3的光谱反射率。
有研究认为,WUE是独立于植被生长的,可以从叶片尺度上推到生态系统水平,植被生长季WUE的分析模型可以直接应用于生态系统水平[10,23-24]。WUE的分析模型假设在生长季蒸腾
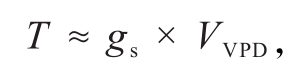
式中:gs为气孔导度,VVPD为VPD的值,进而运用最优气孔导度模型可推导WUE的分析模型。
在生态系统水平,最优气孔导度模型可以表示为[25]
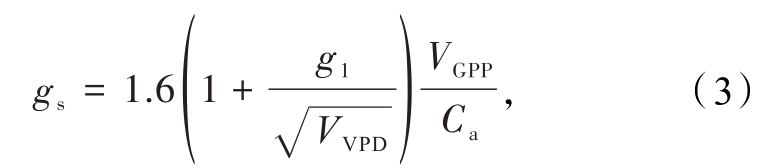
式中:VGPP为GPP的值,相当于叶片尺度的净光合作用固碳率;Ca为大气中CO2物质的量分数,单位为:mol/mol;g1为冠层导度斜率(kPa0.5)。
在叶片水平或生态系统水平生长旺盛期,基于气孔导度理论,WUE的分析模型可表示为
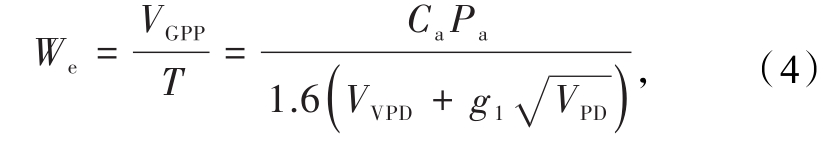
式中:Pa是大气压,单位为kPa;We为生态系统WUE,即C与H2O的质量比值,单位为g/kg;T为植被蒸腾。如果输入变量Ca的单位为µmol/mol,那么计算得到的WUE的单位为µmol/mo(lCO2与H2O的物质的量分数),转化为g/kg(C与H2O的质量比值),需乘以0.667×10-3,即1µmo(lCO2)/mo(lH2O)≈0.667×10-3g(C)/kg(H2O)。
在生态系统水平,WUE通常定义为GPP与ET的比值,ET通常包括T、土壤蒸发(E)以及冠层截留蒸发(interception evaporation,Ei)[25]。在实际情况下,即便是再理想的条件,在生长季ET和T也是很难相同的。在本研究中,排除了因降水导致的冠层截留的影响,ET只由T和E组成,那么根据经典定义,WUE可以表示为
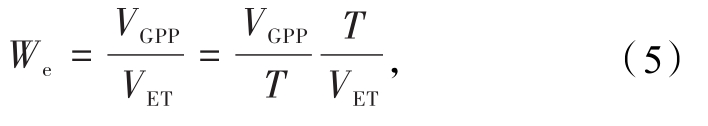
式中:VET为ET的值。结合式(4)和(5),生态系统WUE可以表示为
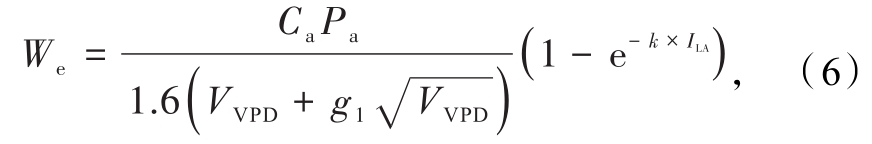
式中的2项与式(5)分别相对应,第二项是年际尺度应用Beer定律表示T与ET的比值,实际情况或者在更短的时间尺度(日或8 d)这个比值的表征比Beer定律要复杂的多,这在生态水文学或遥感上也是一个热点和挑战[2,10,26],ILA为 LAI的值,k为消光系数。
实验尝试通过NDVI和EVI的线性形式替换式(6)中的第二项,进一步提升模型捕捉WUE季节变化的能力。同时,实验表明,当NDVI在0.4~0.9时,对现有分析模型耦合拉伸的NDVI,能够很好地解决生长旺盛期过度抑制以及非生长季高估的问题。因此,研究通过耦合拉伸的NDVI,在不改变原模型其他形式及参数的情况下,改进了一种适用于8 d尺度的WUEan×ScaledNDVI模型:
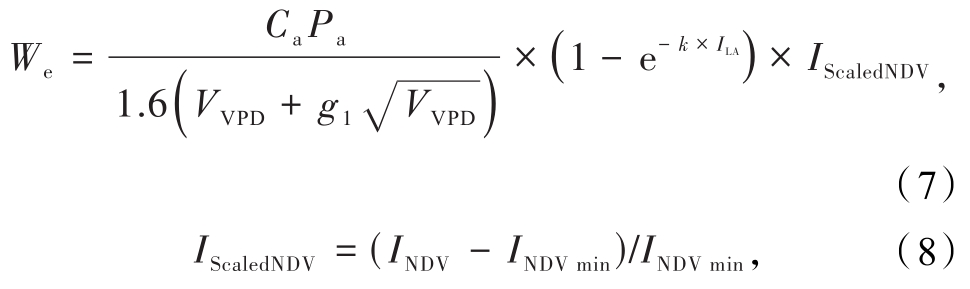
式中:IScaledNDV为拉伸的NDVI的值;模型的主要参数g1由气孔导度模型拟合计算得出,在温带落叶阔叶林站点取4.64[25]。模型另一个参数k对温带落叶阔叶林站点选为 0.7[9]。INDVmin为 NDVI在研究时段内的最小值。
本文所用统计方法包括时间序列分析以及线性、非线性回归分析,采用决定系数(R2)和均方根误差(root mean squared error,RMSE)精度指标以及散点图对比方法,对模型性能进行验证评估。
气孔导度模型第一项能够较好地捕捉生长旺盛期WUE的变化,但在季节动态上在除峰值期以外的时间与通量观测的WUE呈相反的趋势,加上第二项能够使模型大致反映季节趋势,但效果依然不理想。同时,基于植被指数或LAI的WUE单因子模型在一定程度上也能模拟WUE的变化,与气孔导度模型耦合后,其模拟效果不升反降。研究选用通量塔站点的纬度跨度从南到北约为10°,当地气候特征直接影响与气体和能量交换有关的植物生长和生态系统功能[27-28]。因此,在考虑耦合植被指数和LAI对模型进行改进时,有必要探讨WUE对植被指数(植被覆盖因子)及LA(I冠层结构因子)的响应,改进模型的校准精度需高于单因子响应。
2.1.1 WUE对植被覆盖因子的线性响应
研究对WUE与植被指数的关系进行了分析(图1)。WUE与EVI和NDVI均存在显著的相关关系,6个站点WUE与NDVI和EVI线性回归分析的结果显示,WUE与NDVI线性回归的R2范围为0.39~0.75,与EVI线性回归的R2范围为0.35~0.72,总的R2均为0.50。这2个植被指数线性回归的斜率相差不多,但是NDVI的截距为0.47~5.07,明显大于EVI的截距(0.27~0.76)。除此之外,当植被指数达到最大值的时候,WUE与NDVI的散点出现了聚集的情况,WUE在NDVI达到峰值时变化很大,这是NDVI在生长季对叶绿素饱和造成的,EVI的情况明显好一些,是因为EVI加入了蓝光波段的影响,蓝光有利于刺激气孔开放,能更好地捕捉WUE在生长旺盛期的变异性[29]。同时,趋势相近时,EVI与WUE的偏差也更小一些。研究对WUE与植被指数的相关性进行了分析,依据植被指数对WUE季节变异性的捕捉能力,可进一步加入气象因子的优化,对线性模型的斜率及截距进行限制,进而提升植被指数估算WUE的潜力。
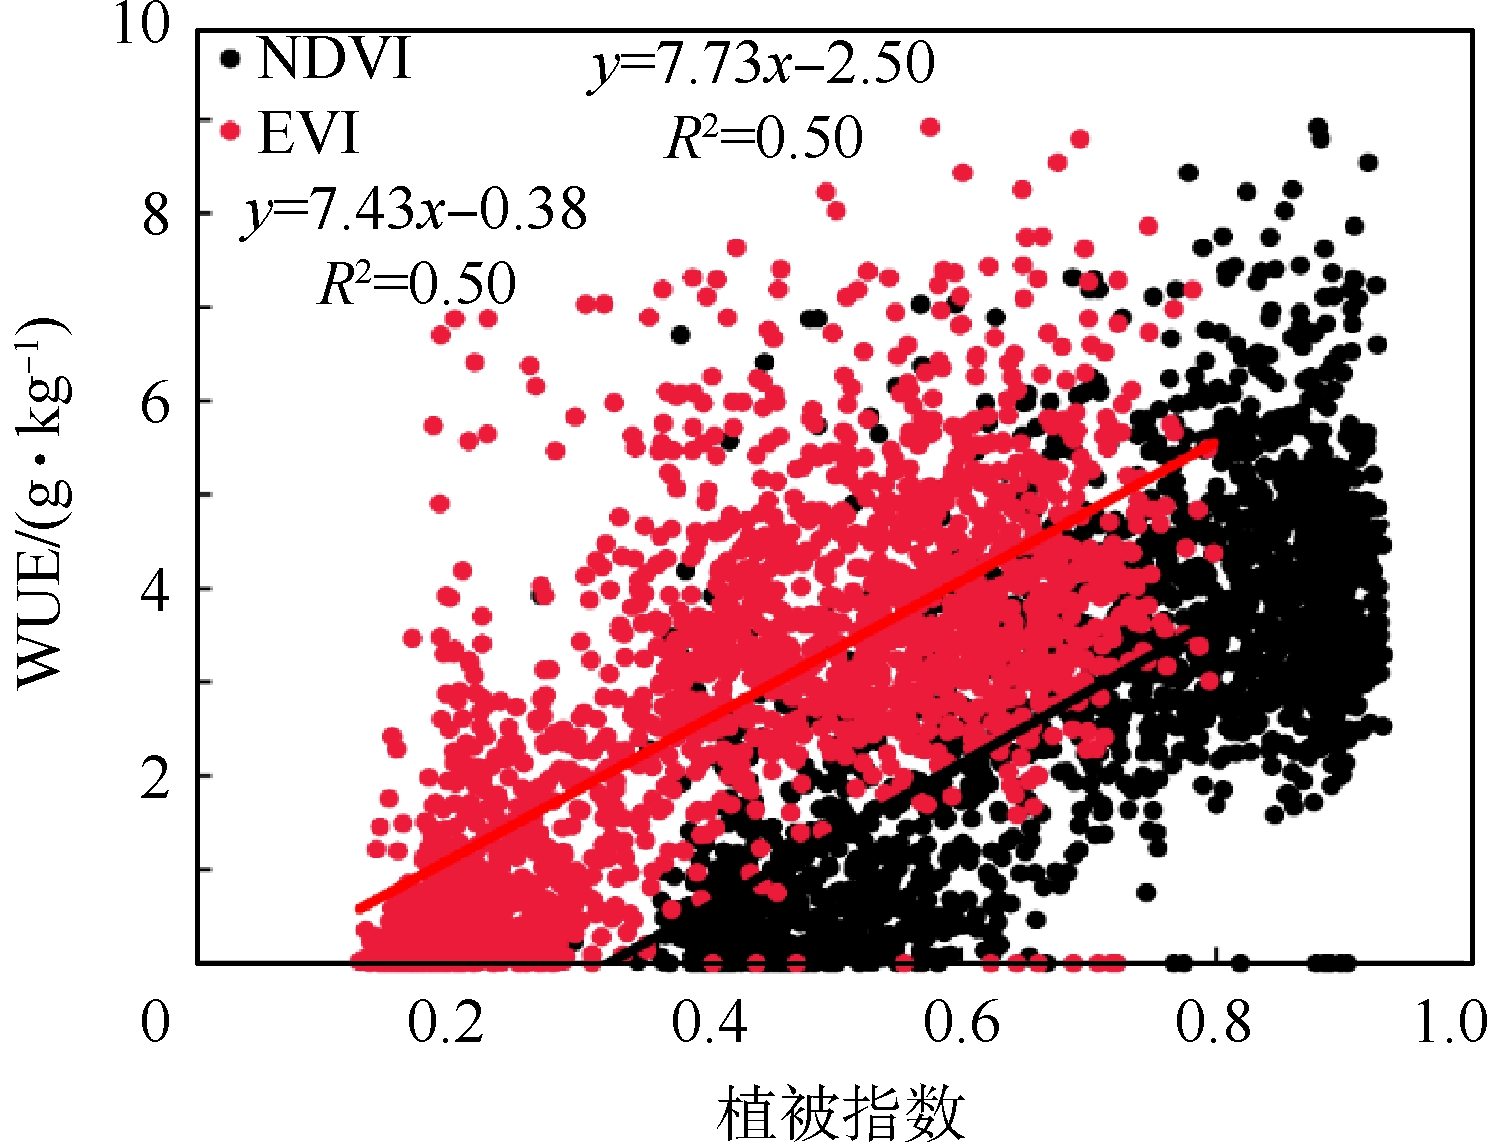
图1 水分利用效率(WUE)与植被指数的散点图及线性回归
注:NDV1为归一化差异植被指数,EV1为增强植被指数。
分析模型第1项(WUEan1st)表征的是GPP与T的比值,即最理想生长状态下的WUE,WUE/WUEan1st的变异性与WUE或植被指数的变异性相似。研究分析了WUE/WUEan1st与植被指数的相关性,并与WUE与植被指数的相关性进行对比,如图2所示。通量观测的WUE与WUEan1st的比值与NDVI和EVI的相关关系明显优于WUE与植被指数的关系,因此第2项替换为植被指数的回归方程,使模型同时比线性回归模型和原分析模型均有提升,尤其是与NDVI的截距出现了明显的降低。但是Ro2站点例外,MODIS和分析模型估算WUE都很差,同时与植被指数的线性关系也是最差的,与其他站点相比,Ro2站点是多年平均气温最高的站点,可达到15.5℃,所以植被生长更快进入到生长峰值期,这从WUE与VI的斜率最大可以看出来,当气温超过最适的生长温度后,植被自身为了调节水分利用策略,而关闭气孔,减少水分蒸腾。
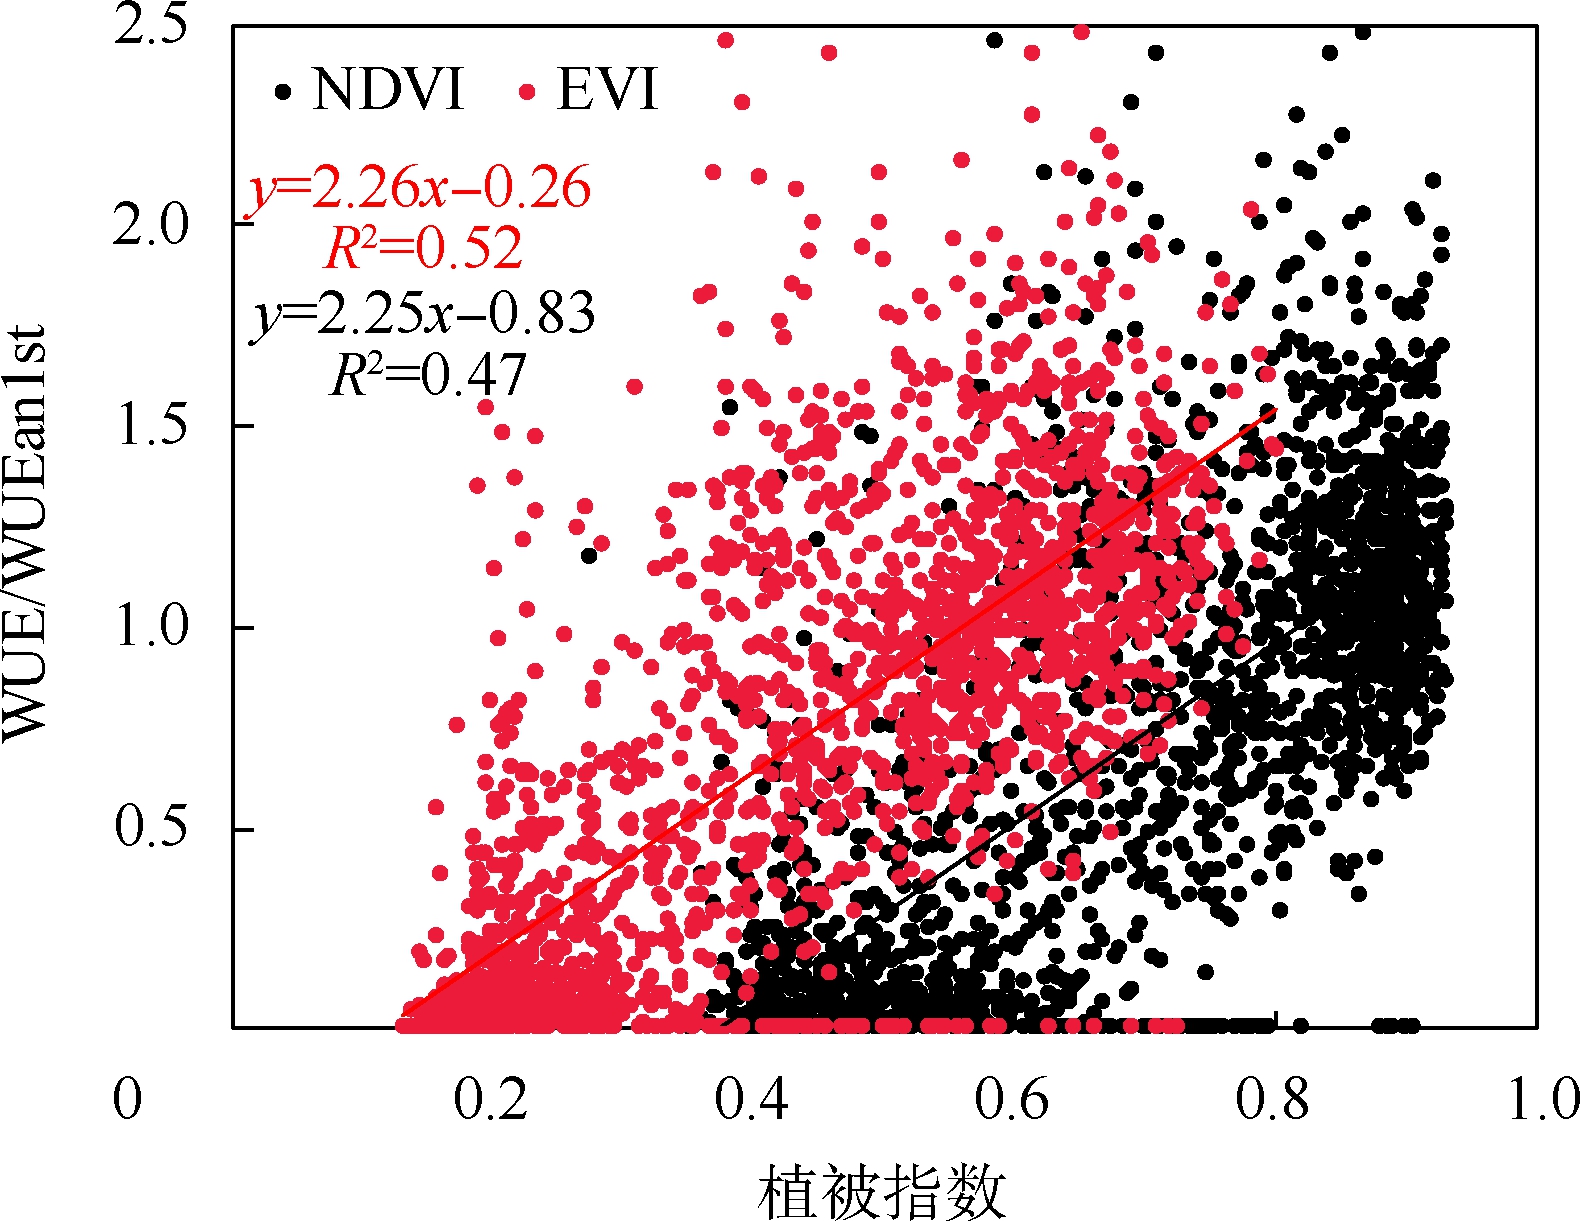
图2 WUE/WUEan1st与MODIS植被指数的散点图及线性关系
注:WUEan1st为气孔导模型的第1项。
2.1.2 WUE对冠层结构因子的非线性响应
从分析模型第2项出发,WUE对LAI的响应可用对数函数:y=a(1-exp(k×x))+b达到最佳拟合(图3),WUE对LAI的响应是先增长,到LAI一定值的时候出现饱和。从植被的冠层结构来看,当植被达到一定的郁闭程度后,LAI对WUE的调控达到极限,需要进一步考虑植被叶片生化结构(即叶绿素等生物因子)及气象等环境因子的影响。理想的分析模型(即第一项)加上LAI的因素,虽然能提升的模型的完整性,但是整体表现不理想,并且降低了LAI对WUE的贡献。单一的LAI与WUE的对数关系比分析模型和MODIS间接计算WUE都要好,并且比NDVI和EVI的线性关系好,其R2范围为0.30~0.80,整体 R2达到了 0.54,优于 NDVI和 EVI线性模型的0.49和0.50。
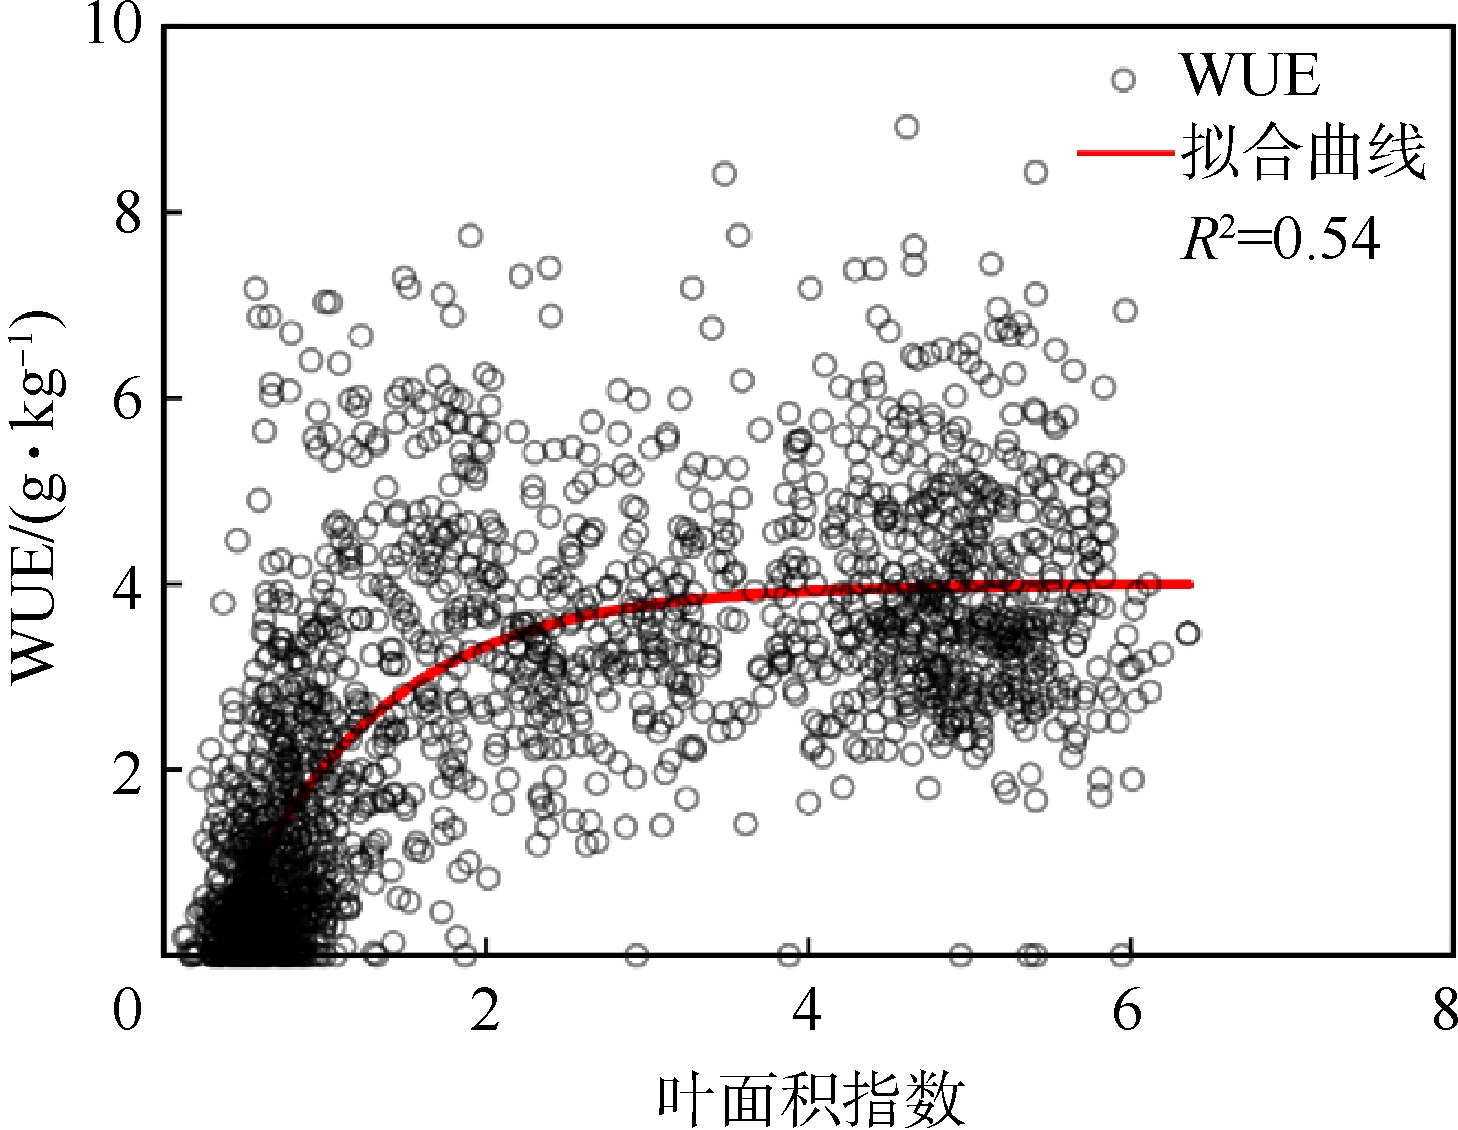
图3 WUE与叶面积指数的散点图及拟合曲线
2.2.1 改进模型参数校准
研究在站点尺度对分析模型进行评估发现,虽然模型能够基本捕捉WUE的季节变化趋势,但对WUE在生长季开始和结束时的高估比较严重,而在生长旺盛期出现了过度抑制,非生长季明显高估。通过分析WUE对植被覆盖因子及冠层结构因子的响应,结合分析模型捕捉WUE季节变异性差的问题,研究通过实验尝试多种方案对分析模型进行改进,如表2所示。采用6个站点除去后3年的数据(用于验证)外的所有站点-年数据,对模型参数进行计算并对模型进行校准,总的样本量n=2 576,排除缺测值及质量控制剔除的数据,有效样本量为2 160。模型参数拟合计算在1stOpt软件中进行,算法选用通用全局优化算法,采用平均绝对误差最小的约束条件,最大迭代次数为1 000,当达到收敛判断标准时结束计算,综合R2、均方根误差、卡方检验及F统计量等检验指标,最终确定模型参数。从校准数据可以看到,当用NDVI和EVI的线性形式替代LAI表征第2项时,模型在8 d尺度的效果好于原模型,但是估算效果依然不理想。
同时,原模型以及通过NDVI和EVI替换方式的改进模型估算WUE精度差的一个主要原因是,模型第2项在捕捉WUE季节变异时被第1项“中和”了很多,因而在非生长季出现明显的高估。对现有分析模型耦合拉伸的NDVI,很好地解决了生长旺盛期过度抑制以及非生长季高估的问题。之所以气孔导度模型在植被覆盖生长季较小的区域不适用,主要是因为这些区域在生长旺盛期由于干旱等因素,植被为了减少水分消耗而气孔闭合,但此时植被仍然会进行光合作用,这时植被的WUE不再由VPD控制,而是土壤水分,所以在生长旺盛期气孔闭合时,气孔导度理论模型是失效的。改进的WUEan×ScaledNDVI模型的优点在于,耦合的ScaledNDVI是无量纲的,不改变原分析模型的结构,不需要引入新的参数,也不需要对原模型参数重新进行计算,省去了模型校准的过程,但是耦合了ScaledNDVI之后,各输入变量对WUE的贡献需要重新进行判定和验证。同时,改进的WUEan×ScaledNDVI模型还需对组成模型的3项逐一进行分析和验证。
表2 改进分析模型参数校准及精度
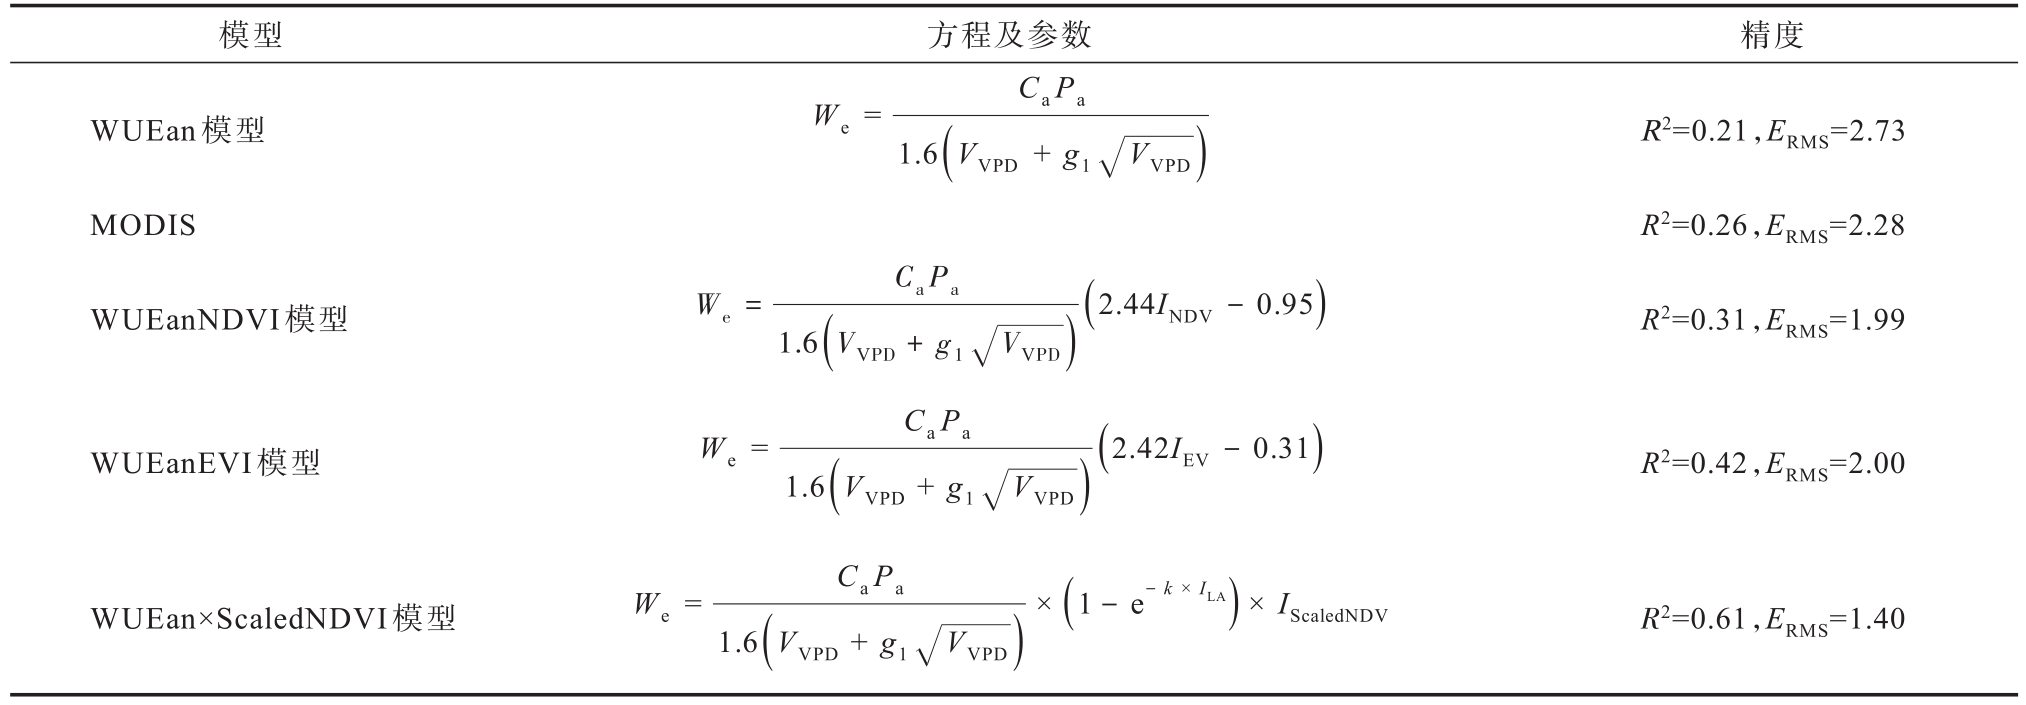
注:We为生态系统水分利用效率,Ca为大气中CO2物质的量分数,Pa是大气压,VVPD为大气饱和水汽压差,IEVI和INDVI分别为增强和归一化植被指数,ERMS为均方根误差。
模型方程及参数精度W=CaPa WUEan模型e 1.6(V +gV)R2=0.21,ERMS=2.73 VPD1 VPD MODIS R2=0.26,ERMS=2.28 W=CaPa(2.44I-0.95)WUEanNDVI模型e 1.6(V +gV)NDV R2=0.31,ERMS=1.99 VPD1 VPD W=CaPa(2 . 42I-0.31)WUEanEVI模型e 1.6(V +gV)EV R2=0.42,ERMS=2.00 VPD1 VPD W=CaPa×(1 -e-k×ILA ) ×I WUEan×ScaledNDVI模型e 1.6(V +gV)ScaledNDVR2=0.61,ERMS=1.40 VPD1 VPD
在NDVI满足范围要求的所有站点,分别对改进模型进行验证,WUE与模型加入各项后的散点图如图4所示。拉伸的NDVI与WUE的R2为0.57,大于直接线性回归的R2,与LAI项相乘R2也都比单一因子的高,改进后的模型R2为0.61,RMSE为1.40 g/kg,比表3中的其他改进方案精度都高,说明加入拉伸的NDVI显著改善了模型的性能,其主要是通过进一步加强了季节变异性而起作用的,并且耦合后的模型性能出现了较大幅度的上升,也说明原分析模型中环境因子对WUE的调控也是有效的。
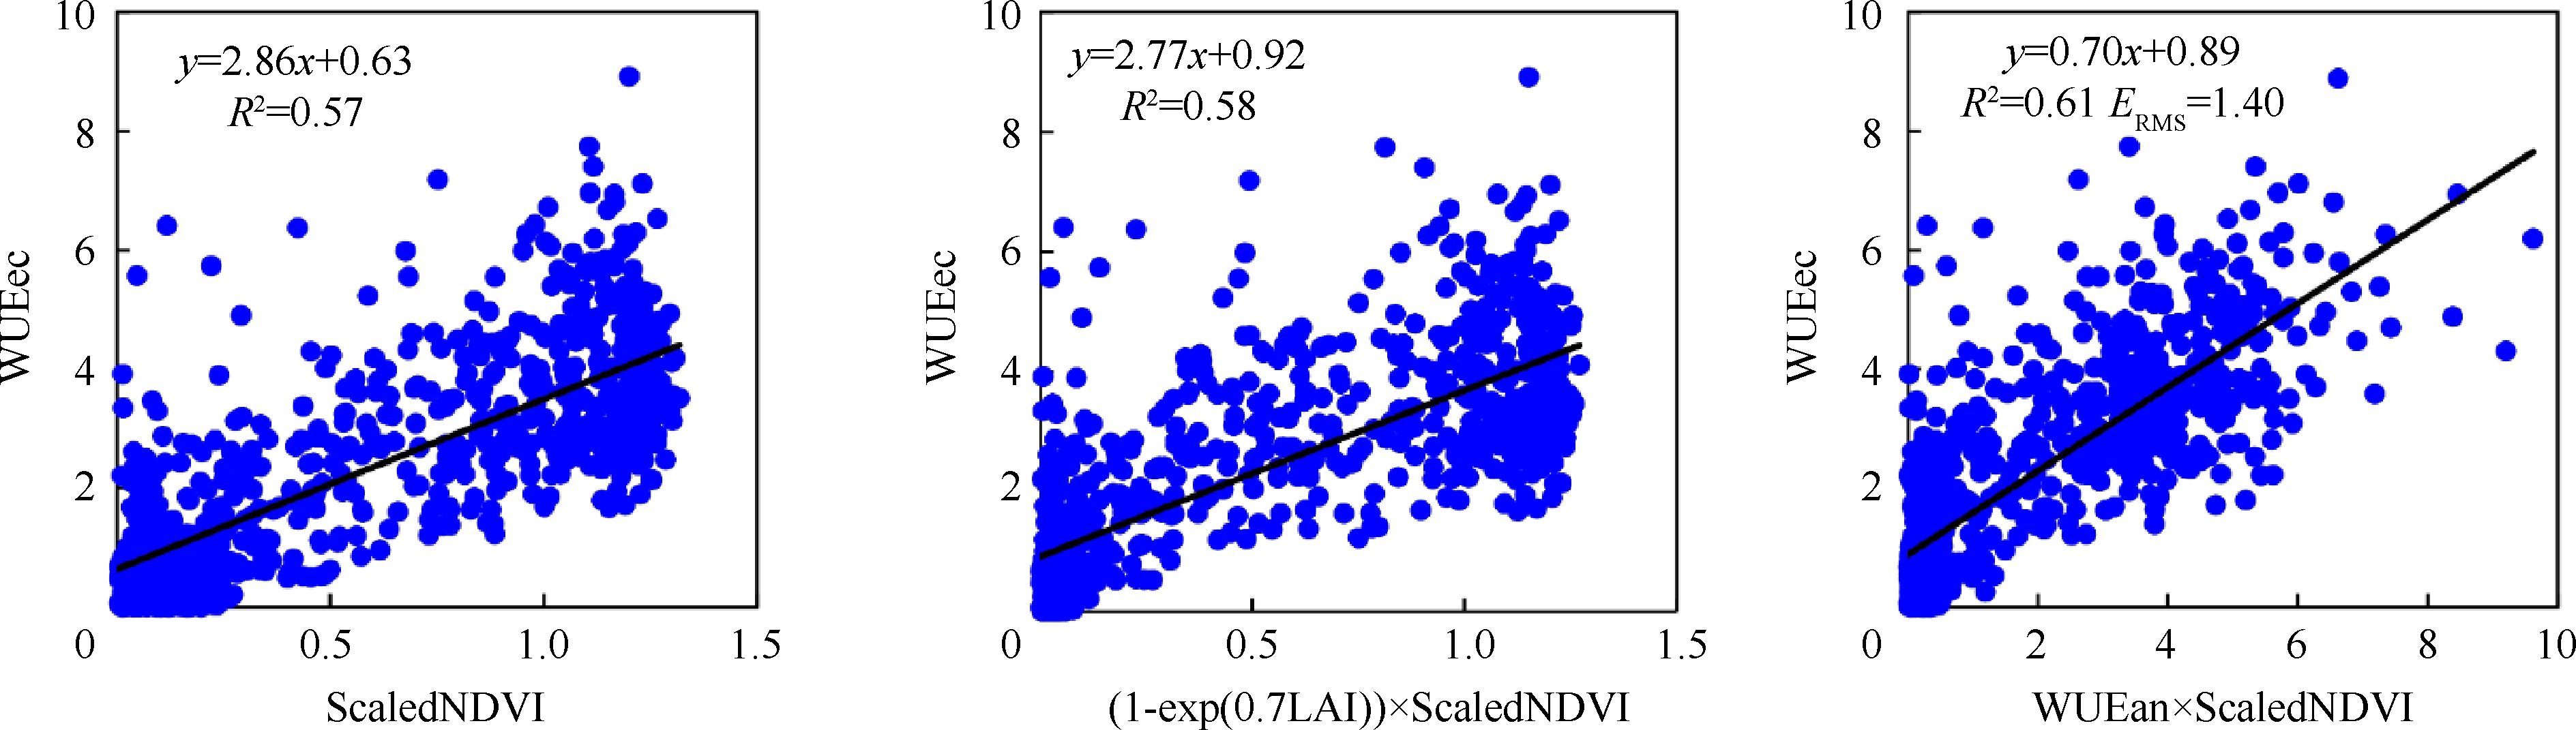
图4 改进模型耦合因子校准散点图
注:横坐标为逐步加入耦合因子的改进模型估算值,WUEec为通量观测WUE。
2.2.2 改进模型验证与评估
研究在验证站点一年对基于通量观测、MODIS以及改进分析模型估算WUE的结果进行了对比验证(图 5和 6),改进的 WUEan×ScaledNDVI模型参考基于通量观测的结果,对8 d尺度生态系统WUE进行了估算。在NDVI满足0.4~0.9站点,改进模型与WUEec之间的散点图显示出优于其他MODIS和原模型的线性关系,在RMSE相差不多的情况下,R2比单因子条件下以及MODIS产品均有显著提升。改进的分析模型在监测温带落叶林生态系统WUE的季节变化上能够解决MODIS和原模型在生长季的低估和非生长季的高估问题。并且,在生长季生态系统WUE中夏季低谷的典型特征也能充分捕捉,相比WUEmod在研究站点表现的糟糕,改进分析模型体现出了较好的效果,与 WUEmod相比,WUEan×ScaledNDVI模型对温带落叶阔叶林的WUE估算值要高得多,并且能够解释碳、水循环耦合的部分机理。
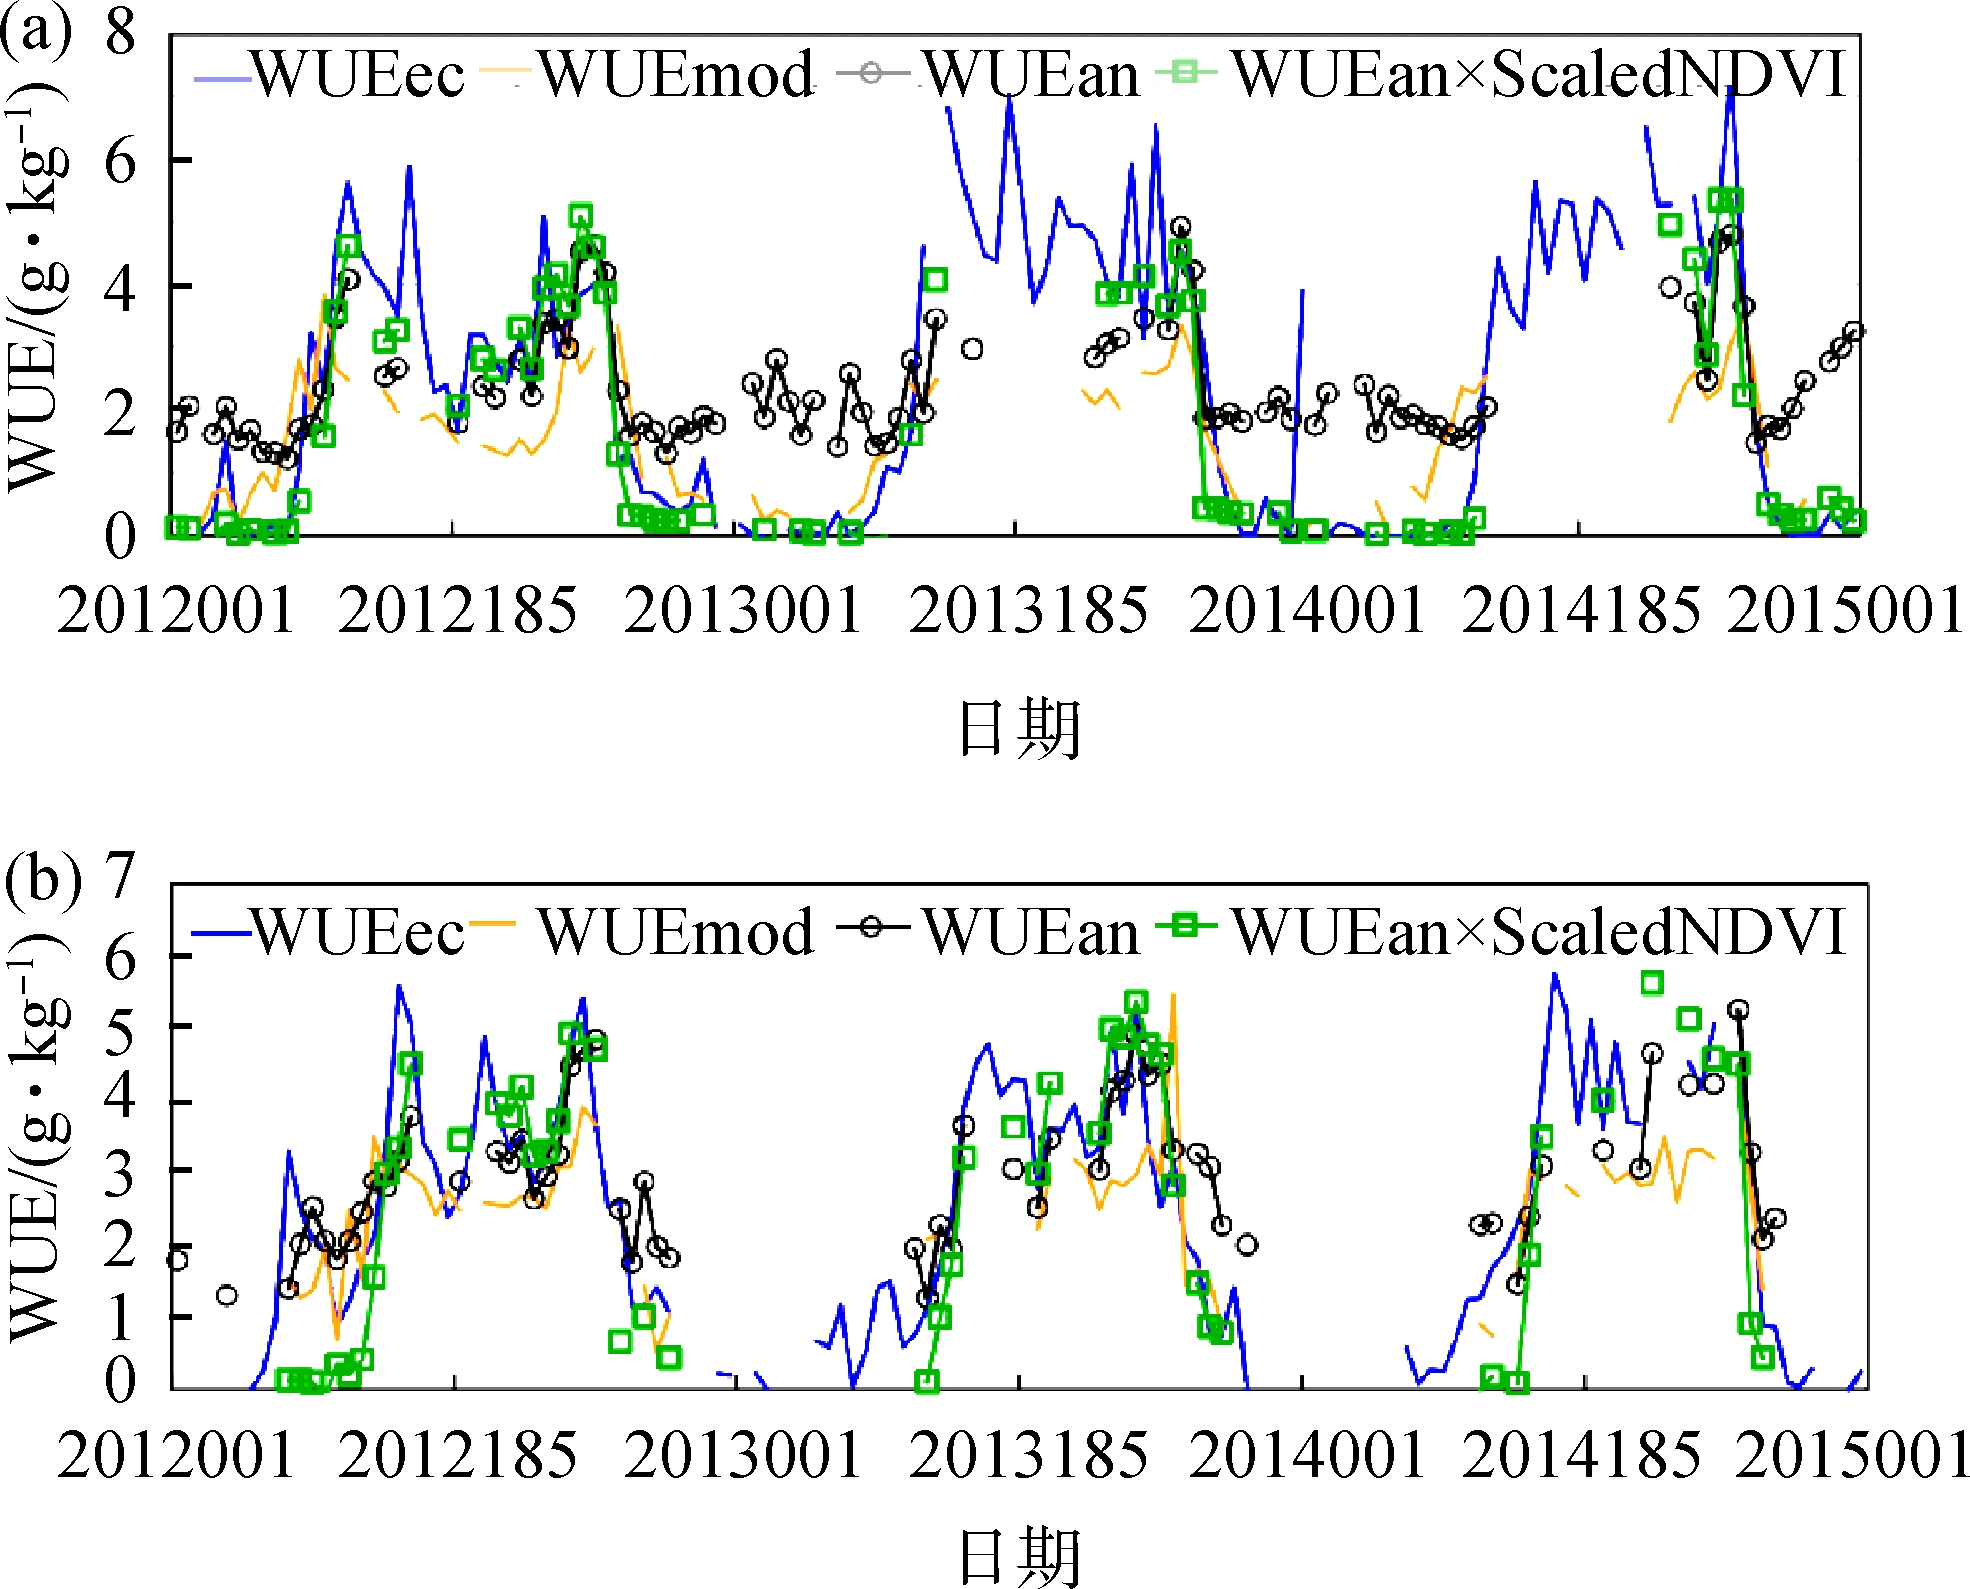
图5 不同站点改进模型估算WUE时间序列对比验证
(a)MMS站点;(b)UMB站点
改进的分析模型既能捕捉到峰值,也能较好地区分生长季和非生长季的差异,原因可能是模型所包含的物候信息对季节变异性捕捉更好,拉伸的NDVI的加入进一步强化了植被特征因素。但是模型仅在有限的范围内表现较好,在其他站点模型表现并未得到提升,没有超过植被指数或LAI单因子估算的效果,尤其是在NDVI变化范围较小的站点,原因可能是其他站点属于地中海气候,气候差异使得植被密度较小且季节变化也相对较小,再加上较为充沛的降水,使得VPD的范围较小,模型不能对真实的WUE做出有效的响应。另一个可能的因素是,过多的输入变量影响了数据的连续性,导致估算结果在生长旺盛期缺值比较严重,在验证时季节变异性难以捕捉到。因此,分析模型在8 d尺度上的应用还需进一步的验证和改进,既要考虑特定站点环境/生物因子的特征,也要重新深入探讨调控因子的影响机制,大量的输入变量及尚不明确的响应机制增加了分析模型的不确定性。
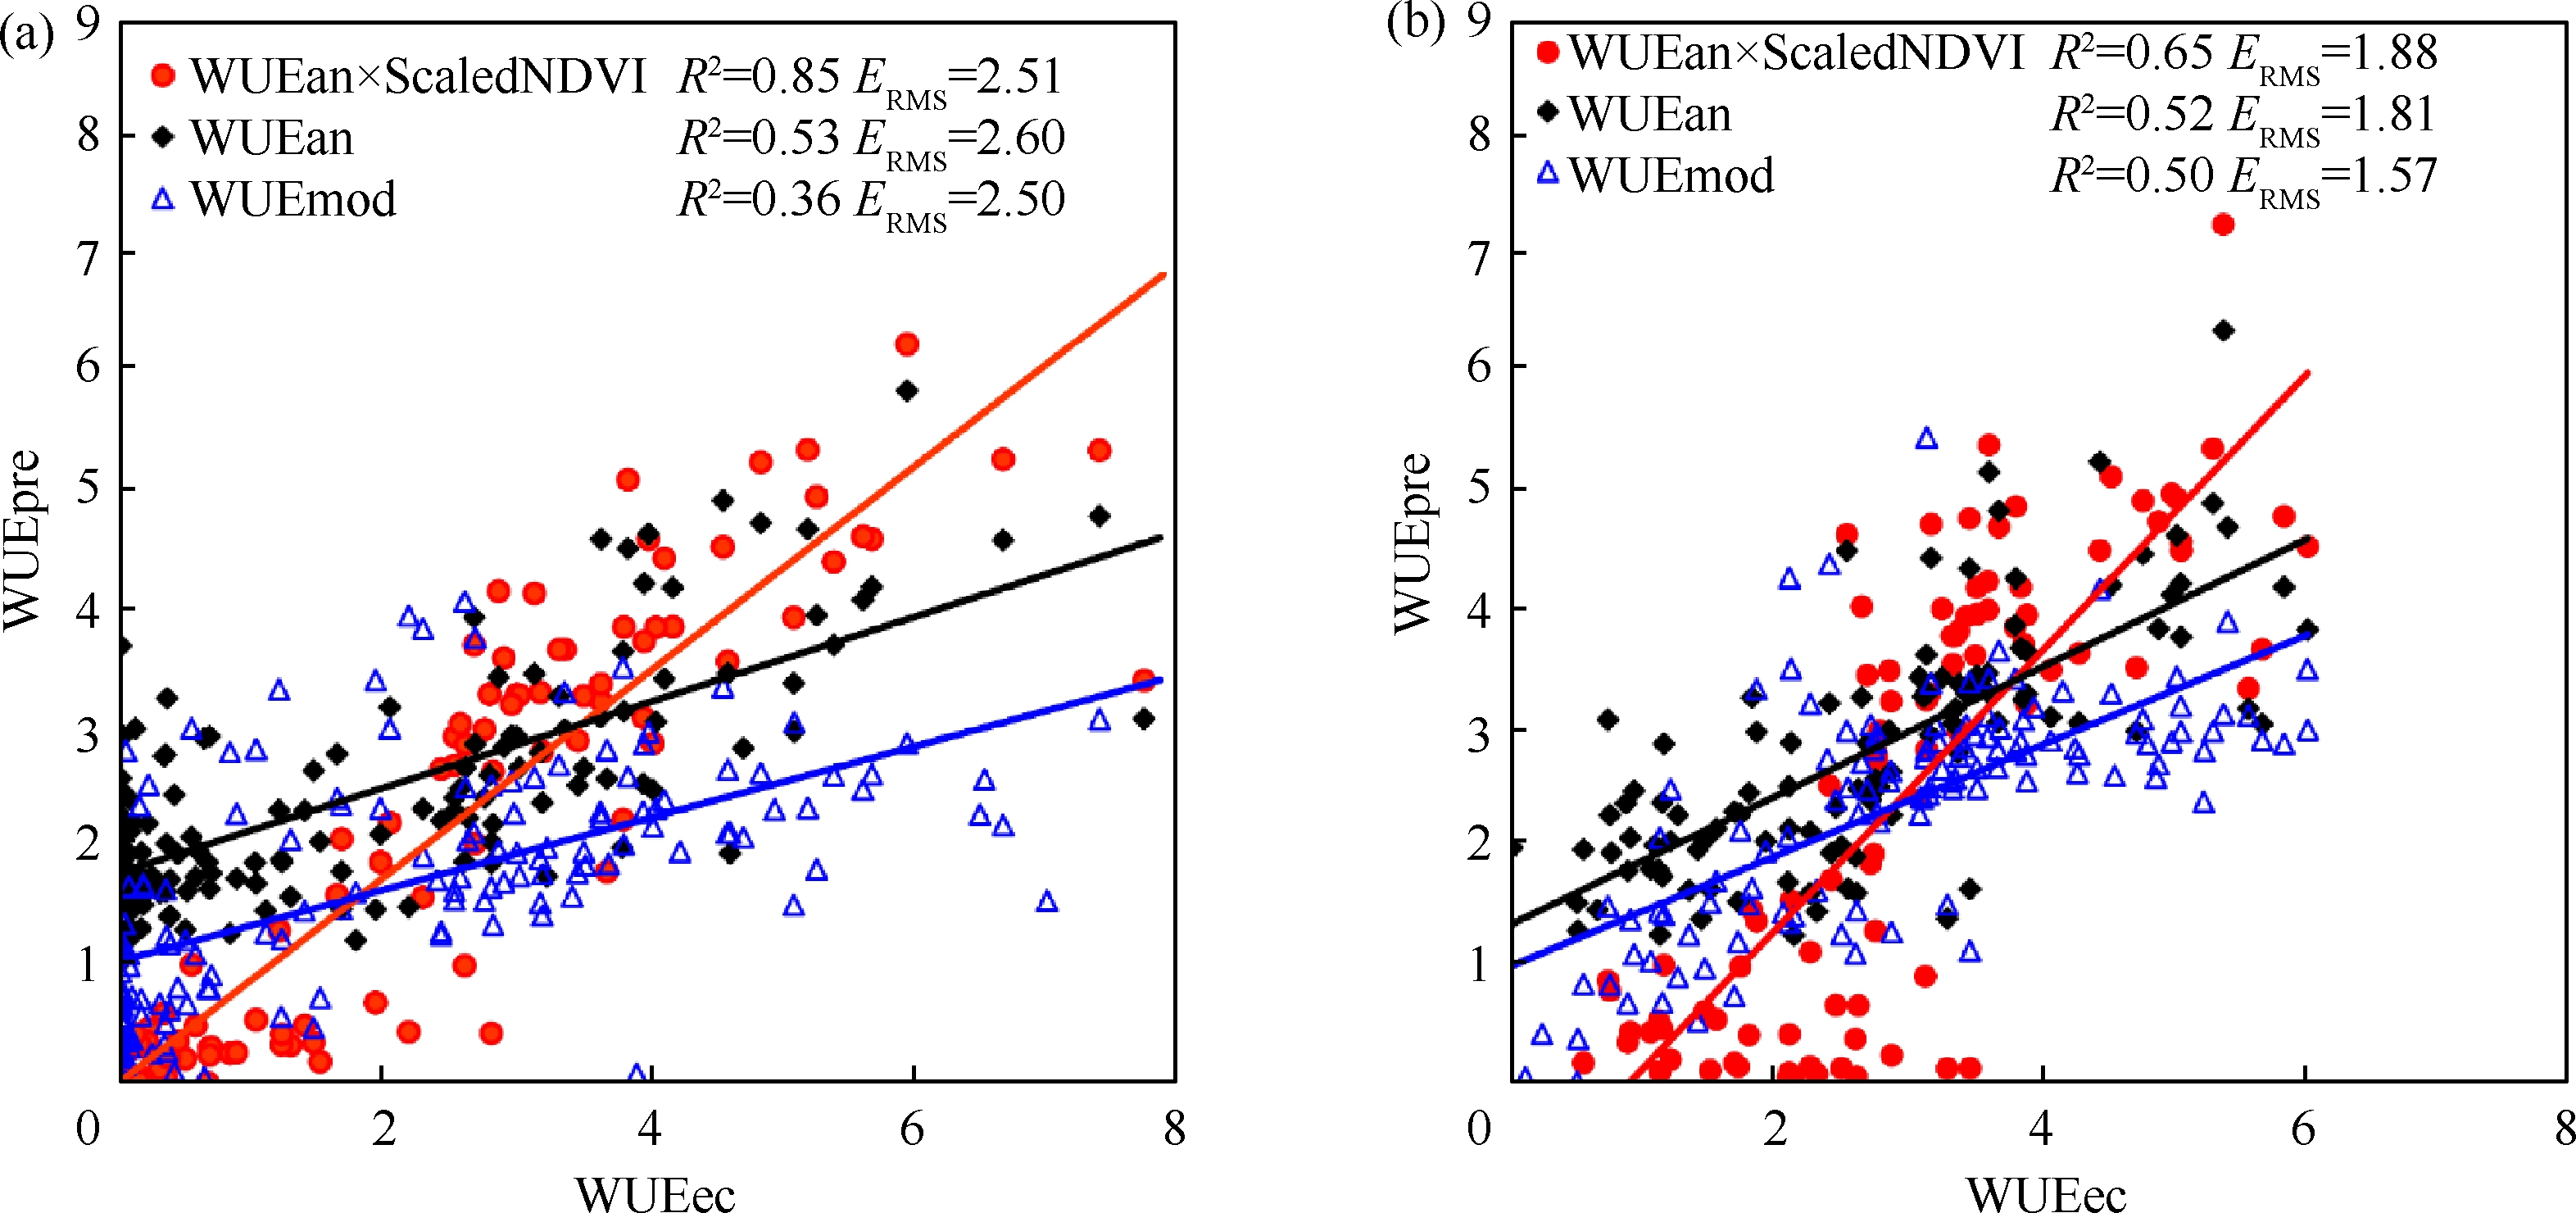
图6 改进模型估算WUE验证散点图
(a)US-MMS站点;(b)US-WUB站点
注:WUEpre为WUE模型预测值。
本文在最优气孔导度理论的基础上,改进了一个适用于温带落叶阔叶林8 d尺度WUE直接估算的模型。尽管WUEan×ScaledNDVI模型在监测WUE季节动态上比原模型在部分站点有提升,但WUE估算仍需要进一步改进。使用MODIS NDVI和LAI产品耦合分析模型估算WUE在一些站点上有一定的优势,但准确预测WUE对环境/生物因子以及极端气候事件的响应仍然具有挑战性,这归因于模型中实际碳水循环参数和状态的不准确表达。由气孔导度模型推导的分析模型对假设条件的要求十分苛刻,且对气孔行为的调节尚需进一步完善,不同站点间性能和精度的差异还需进一步改进。WUE分析模型是目前唯一一种基于机制直接估算WUE的方法,其优点是提供了一个简单的有意义的WUE的理论框架[30]。但是模型对T与ET比值的描述过于简单,土壤蒸发和植被蒸腾的遥感估计和验证是一个具有挑战性的问题[31-32]。模型的另一个限制因素就是第3项——冠层截留蒸发的观测与模拟,由于对潜在物理过程了解的不足,该项尚无法通过地面观测,并难以独立验证[26,33]。同时,也有研究表明,气孔导度和特性仅能解释WUE的44%[34],分析模型综合了辐射在冠层的传输因素,对WUE的解释在冠层导度的基础上提升了。然而,当气孔关闭或植被还未开始生长时,即气孔导度超过临界值或未进入生长季时,气孔调节植被的用水策略失效,这也可以解释WUE的气孔导度理论模型适用性的限制[35]。
尽管遥感是唯一可以用于提高大尺度碳循环和水循环监测的方法,但由于MODIS GPP和ET算法本身的缺陷,间接估算WUE效果很差。因此,需要对GPP和ET产品进行持续改进,以改善8 d尺度WUE的间接估算。使用MODIS GPP和ET产品的耦合过程存在很大的不确定性,这种不确定性可归因于算法、上游输入和生物群落属性查找表中的特定经验参数[36-37]。一般来说,GPPmod表现出较好的一致性,而ETmod在6个森林站点出现了明显的高估,这也导致了对WUE的低估。之前的研究也证实了ETmod在完全依赖降雨的农田[20]和常绿森林[30]上是可靠的,但是在森林站点还需进一步的检验。另外,基于GPP与ET之间的强正相关关系,利用ET估算GPP和更为准确的生态系统WUE,还需考虑GPP和ET在季节动态上的滞后效应[38]。
另一个不能忽略的事实是,通量观测在确定WUE上同样存在着不确定性。涡动协方差技术为GPP和ET计算提供了测量净CO2交换和水汽通量的最佳方法,但通量测量也包含着随机误差和系统误差[39-40]。理想情况下,系统误差可以修正,但在EC测量的情况下,由于对各种误差源的理解有限,且背景数据不足,系统误差仍然受到限制[41]。毕竟,GPP不是通过通量塔直接测量的,而是通过光响应曲线法将NEE划分为GPP和生态系统呼吸来推导的[42]。然而,在冠层通量与地表分离的某些情况下,夜间呼吸可能被低估,因此GPP被高估[43]。此外,Wu等[44]使用Bowen比率能量平衡(bowen ratio energy balance,BREB)方法的ET估算值与观测值在温带混交林进行了比较,在1个月的观测期内,基于BREB的ET估算值与观测值的误差<6%。因此,能量闭合比是评估有效性的另一种方法,能量闭合对ET的通量观测是一个不容忽视的因素。
综上所述,本文在评估了MODIS间接估算和气孔导度模型估算WUE在8 d尺度的性能和适用性的基础上,通过耦合植被覆盖和冠层结构因子对气孔导度分析模型进行改进,并进一步讨论了通量观测、遥感间接估算以及改进模型在8 d尺度的适用性及优缺点。改进的WUEan×ScaledNDVI模型虽然包含了较多的输入变量以及经验性和统计性的参数,存在一些不稳定因素,但能够在特定的站点上表现出不错的效果,更为重要的是在综合了生物和非生物调控因子的基础上,进一步提升了遥感监测植被指数用于估算WUE的潜力,也在一定程度上能够量化主要调控因子对WUE的贡献,也为WUE的年际变化研究提供了一个新的诊断工具。此外,改进的WUEan×ScaledNDVI模型优于MODIS GPP和ET产品间接估算WUE,对气象变量、生理参数以及遥感数据等输入变量做了很大程度的简化。在能够部分解释潜在的物理机制的基础上,比单纯的经验回归模型具有更好的精度。值得注意的是,当气孔导度调节WUE失效时,还需考虑其他因素的调节作用,为在更多站点改进稳健而通用的生态系统WUE直接估算模型提供了一个可供借鉴的思路。
[1]于贵瑞,孙晓敏.陆地生态系统通量观测的原理与方法[M].北京:高等教育出版社,2006:10.
[2]BEER C,CIAIS P,REICHSTEIN M,et al.Temporal and among-site variability of inherent water use efficiency at the ecosystem level [J]. Global Biogeochemical Cycles,2009,23:GB2018.
[3]NIU S L,XING X R,ZHANG Z,et al.Water-use efficiency in response to climate change:from leaf to ecosystem in a temperate steppe[J].Global Change Biology,2011,17(2):1073-1082.
[4]胡中民,于贵瑞,王秋凤,等.生态系统水分利用效率研究进展[J].生态学报,2009,29(3):1498-1507.
[5]VADEZ V.Water-use efficiency[M].New Jersey:John Wiley&Sons,Ltd,2019:267-276.
[6]YU G R,SONG X,WANG Q F,et al.Water-use efficiency of forest ecosystems in eastern china and its relations to climatic variables[J].New Phytologist,2008,177(4):927-37.
[7] TANG X G,LI H P,ANKUR R,et al.How is water-use efficiency of terrestrialecosystems distributed and changing on earth?[J].Scientific Reports,2014,4:7483.
[8] YANG S S,ZHANG J H,ZHANG S,et al.The potential of remote sensing-based models on global water-use efficiency estimation:an evaluation and intercomparison of an ecosystem model(BESS) and algorithm(MODIS)using site level and upscaled eddy covariance data[J].Agricultural and Forest Meteorology,2020,287:107959.
[9]BEER C,MARKUS R,ENRICO T,et al.Terrestrial gross carbon dioxide uptake:global distribution and covariation with climate[J].Science,2010,329(5993):834-838.
[10]CHENG L,ZHANG L,WANG Y P,et al.Recent increases in terrestrial carbon uptake at little cost to the watercycle[J].Nature Communications,2017,8(1):110.
[11] XIE J,CHEN J Q,SUN G,et al.Ten-year variability in ecosystem water use efficiency in an Oak-dominated temperate forest under a warming climate [J].Agricultural and Forest Meteorology,2016,(218):209-17.
[12] TANG X G,LI H P,XU X B,et al.Potential of MODIS data to track the variability in ecosystem water-use efficiency of temperate deciduous forests[J].Ecological Engineering,2016,91:381-91.
[13]VALENTINI R,DE ANGELIS P,MATTEUCCI G,et al.Seasonal net carbon dioxide exchange of a beech forest with the atmosphere[J].Global Change Biology,1996,2(3):199-207.
[14] SCHMID H P,GRIMMOND C S,CROPLEY F,et al.Measurements of CO2and energy fluxes over a mixed hardwood forest in the mid-western United States[J].Agricultural and Forest Meteorology,2000,103:357-74.
[15]TEDESCHIV,REYA,MANCA G,etal.Soil respiration in a Mediterranean Oak forest at different developmental stages after coppicing[J].Global Change Biology,2006,12:110-121.
[16]DESAI A R,RICHARDSON A D,MOFFAT A M,et al.Cross-Site evaluation of eddy covariance GPP and Re decomposition techniques[J].Agricultural and Forest Meteorology,2008,148:821-38.
[17] KUPPELS,PEYLIN P,CHEVALLIER F,etal.Constraining a global ecosystem model with multi-site eddy-covariance data [J]. Journal of Geophysical Research:Biogeosciences,2012,9(10):3757-3776.
[18] GOUGH C M,VOGEL C S,SCHMID H P,et al.Multi-Yearconver-gence ofbiometricand meteorological estimates of forest carbon storage[J].Agricultural and Forest Meteorology,2008,148:158-170.
[19]HUANG M T,PIAO S L,SUN Y,et al.Change in terrestrial ecosystem water-use efficiency over the last three decades[J].Global Change Biology,2015,21(6):2366-2378.
[20]TANG X G,LI H P,GRIFFIS T J,et al.Tracking ecosystem water use efficiency of cropland by exclusive use of MODIS EVI Data[J].Remote Sensing,2015,7(9):11016-11035.
[21] HUETE A,DIDAN K,MIURA T,et al.Overview of the radiometric and biophysical performance of the MODIS vegetation indices[J].Remote Sensing of Environment,2002,83:195-213.
[22] GONG X,DU S,LI F,et al.Study of mesoscale NDVI prediction models in arid and semiarid regions of china under changing environments[J].Ecological Indicators,2021,131(1):108198.
[23]BARTON C V M,DUURSMA R A,MEDLYN B E,et al. Effects of elevated atmospheric [CO2] on instantaneous transpiration efficiency at leaf and canopy scales in eucalyptus saligna[J].Global Change Biology,2012,18(2):585-95.
[24]ZHANG Y E,LIU B,JIA G D,et al.Scaling up from leafto whole-plantlevelforwateruse efficiency estimates based on stomatal and mesophyll behaviour in platycladus orientalis[J].Water,2022,14(2):20.
[25] MEDLYN B E,DE KAUWE M G,LIN Y S,et al.How do leaf and ecosystem measures of water-use efficiency compare?[J].New Phytologist,2017,216(3):758-70.
[26]STOY P C,EL-MADANY T,FISHER J B,et al.Reviews and syntheses:turning the challenges of partitioning ecosystem evaporation and transpiration into opportunities[J].Biogeosciences Discussions,2019,16(19):3747-75.
[27]DESAI A R,NOORMETS A,BOLSTAD P V,et al.Influence of vegetation and seasonal forcing on carbon dioxide fluxes across the upper midwest, USA:implications for regional scaling[J].Agricultural and Forest Meteorology,2008,148(2):288-308.
[28]REICH P B,RICH R L,LU X,et al.Biogeographic variation in evergreen conifer needle longevity and impacts on boreal forest carbon cycle projections[J].Proceedings of the National Academy of Sciences of the United States of America,2014,111(38):13703.
[29] TONG X J,ZHANG J S,MENG P,et al.Ecosystem wateruse efficiency in a warm-temperate mixed plantation in the north China[J].Journal of Hydrology,2014,512:221-228.
[30]LIU Y,XIAO J,JU W,et al.Water use efficiency of China’s terrestrial ecosystems and responses to drought[J].Scientific Reports,2015,5:13799.
[31]MAXWELL R M,CONDON L E.Connections between groundwater flow and transpiration partitioning:using integrated continental-scale simulations at high resolution to diagnose hydrologic process interaction[J].Science,2016,353:6297-6377.
[32] CHEN H,HUANG J J,MCBEAN E,et al.Evaluation of alternative two-source remote sensing models in partitioning of land evapotranspiration[J].Journal of Hydrology,2021,597:126029.
[33] VAN DIJK A I J M,GASH J H,VAN GORSEL E,et al.Rainfall interception and the coupled surface water and energy balance[J].Agricultural and Forest Meteorology,2015,s214/215:402-415.
[34]LIU Y,DING Z,BACHOFEN C,et al.The effect of saline-alkaline and water stresses on water use efficiency and standing biomass ofphragmites australis and bolboschoenus planiculmis[J].Science of the Total Environment,2018,644:207-216.
[35]XU H,ZHANG Z Q,XIAO J F,et al.Environmental and canopy stomatal control on ecosystem water use efficiency in a riparian poplar plantation[J].Agricultural and Forest Meteorology,2020,287(15):107953
[36] YANG Y T,LONG D,SHANG S H.Remote estimation of terrestrial evapotranspiration without using meteorological data[J].Geophysical Research Letters,2013,40(12):3026-30.
[37] TANG X G,LI H P,LIU G H,et al.Sensitivity of near real-time MODIS gross primary productivity in terrestrial forest based on eddy covariance measurements[J].Chinese Geographical Science,2015,25(5):537-548.
[38] ZHOU S,YU B F,HUANG Y F,et al.Daily underlying water use efficiency for Ameriflux sites[J].Journal of Geophysical Research:Biogeosciences,2015,120(5):887-902.
[39] SCOTT R L,EDWARDS E A,SHUTTLEWORTH W J,et al.Interannual and seasonal variation in fluxes of water and carbon dioxide from a riparian woodland ecosystem[J].Agricultural and Forest Meteorology,2004,122(1):65-84.
[40]DRAGONI D,SCHMID H P,GRIMMOND C S B,et al.Uncertainty of annual net ecosystem productivity estimated using eddy covariance flux measurements[J].Journal of Geophysical Research Atmospheres,2007,112(D17).
[41]POSTH H,FRANSSEN JH,GRAFA,etal.Uncertainty analysisofeddy covariance CO2flux measurements for different EC tower distances using an extended two-tower approach [J]. Journal of Geophysical Research:Biogeosciences,2015,11(8):11943-11983.
[42]LASSLOP G,REICHSTEIN M,PAPALE D,et al.Separation of net ecosystem exchange into assimilation and respiration using a light response curve approach:critical issues and global evaluation[J].Global Change Biology,2010,16(1):187-208.
[43]AUBINET M, HEINESCH B, LONGDOZ B.Estimation of the carbon sequestrationby a heterogeneous forest:night flux corrections,heterogeneity of the site andinter-annual variability[J].Global Change Biology,2002,8:1053-1071.
[44] WU J,GUAN D,ZHANG M,et al.Comparison of eddy covariance and BREB methods in determining forest evapotranspiration:case studyon broadleaved Korean pine forest in Changbai mountain[J].Chinese Journal of Applied Ecology,2005,24:1245-1249.