0 引 言
兰科(Orchidaceae),是与真菌形成典型菌根共生关系的高等植物类群,是植物界第二大科,物种多样性丰富、分布广泛,共分为5亚科、763属、2.8万余种,占被子植物物种多样性比例的8%[1-2].该科许多种类是我国传统名贵中药材,如铁皮石斛(Dendrobium officinale)、天麻(Gastrodia elata)等为我国历届药典收录[3].兰科多样性的物种、多样化的传粉机制及其与真菌特殊的共生关系吸引全世界生物学家进行研究.由于“从头到脚”,即从昆虫传粉到菌根共生,都体现了生物共生关系,其被认为是进化生态学及生物间相互作用研究的最理想的模式植物[4-5].自然条件下,真菌对兰科种子的萌发、幼苗的生长发育乃至成年植株的繁殖和分布有着重要影响.近年来,兰科植物与真菌的共生关系已经成为生物学和生态学领域研究的热点.
兰科植物高度依赖菌根真菌来完成其生命周期,尤其在缺乏胚乳导致营养缺乏的种子萌发阶段和幼苗生长阶段[6-9].Bernard[10]最早观察到同属或同种兰科植物总是与同一类真菌共生,因此,提出兰科植物与其共生真菌存在一定的专一性关系.此后,众多学者围绕二者之间的专一性关系开展了大量研究[8,11-12].然而,该领域的研究一直是兰科植物研究的热点和争论的焦点.随着现代分子生物学技术在该领域的应用,越来越多的研究结果倾向于兰科植物与共生真菌之间存在某种特定的专一性关系,且这种关系受多种因素影响[13-14].
本文综述了近年来兰科植物与菌根真菌专一性关系相关文献,从定义、影响因素、兰科菌根研究方法及共生机制等方面进行总结和分析,旨在全面分析兰科菌根专一性这一现象,为今后更好地利用菌根技术,实现兰科植物的规模化栽培和野生保育奠定基础;同时对濒危兰科植物在原始生态环境的生态恢复也具有一定的指导意义.
1 专一性关系定义
植物与微生物(病原菌及共生真菌)相互作用时普遍存在一定的专一性关系,这种专一性关系常与宿主植物间的系统发育、生理差异,微生物间的竞争关系以及共生体之间的互惠效应、资源优先分配等因素相关[15-16].兰科菌根是继丛枝菌根及外生菌根之外的第3种菌根类型,研究表明:兰科菌根共生较其他类型的菌根关系有更高的菌根专一性[17-18],体现在这些共生真菌通常是腐生菌,且仅在兰科植物根内形成典型的菌根共生结构,即菌丝圈(pelotons).
关于兰科菌根的早期研究提出:在植物分类学上,属于同一属或种的兰科植物总与相同种类的真菌共生,即兰科菌根真菌在宿主植物属或种水平上存在专一性[10];而随后的实验表明兰科菌根在“种⁃种”的水平上(宿主植物⁃共生真菌)没有专一性[19].有关兰科植物与菌根真菌专一性的命题一直存在争议,究其原因可能与不同学者对二者专一性关系的定义及界定范围不同有关[20].Mycorrhizal ecolo⁃gy[20]书中指出一种兰科植物与系统发育关系上属于同一分支的真菌共生,即认为其具有一定的菌根真菌专一性;而最近有学者指出兰科植物与菌根真菌专一性,广义上指宿主植物与多种特定真菌类群共生,表现为宿主植物对共生真菌具有一定偏好性[13],严格意义上指宿主植物与唯一种类真菌共生,表现为一定的排他性[21].绝大多数研究兰科植物与菌根真菌专一性的相关文献是采用广义的专一性定义,具有一定的普遍性,本文专一性定义包含广义上的专一性和狭义上的专一性定义.
兰科植物与菌根真菌之间专一性关系的研究方法通常有2种.一种是从自然生态环境中采集成年兰科植物的根,从皮层细胞中分离菌根真菌,探讨成年兰科植物与菌根真菌之间的关系;另一种是在体外实验条件下,利用兰科种子与各种菌根真菌进行共生萌发,探讨实验室条件下,种子或原球茎与菌根真菌之间的关系[22-23].针对以上研究方法,有学者提出“生态专一性”(ecological specificity)和“潜在专一性”(potential specificity)的概念,即在自然生态环境下,真菌能在兰科植物根的皮层细胞或原球茎中形成菌丝圈,则表明兰科植物与这类真菌之间存在生态专一性;而在适宜的体外条件下,如实验室条件下,采用真菌与兰科种子或幼苗共培养的方式,研究在兰科植物的组织细胞中形成菌丝圈,则表明二者之间存在潜在专一性[23].同时,有研究表明利用原位萌发技术,在自然条件下,促进种子萌发的真菌种类要远少于实验室条件下,因此,表现出在自然条件下,兰科植物与共生真菌有更强的专一性[23-24],即潜在专一性不等同于生态专一性.
生态专一性与潜在专一性是根据兰科菌根专一性研究方法衍生出的一组概念,二者侧重点不同,互为补充.如采集兰科植物的根,利用真菌特异性引物,通过高通量测序方法鉴定的菌根真菌,并讨论其与宿主植物的关系,通常属于生态专一性范畴;而在实验室条件下,从兰科植物根组织块或根内菌丝圈直接分离、培养共生真菌,并通过与特定兰科植物共培养的方式,筛选出的菌根真菌,分析其与宿主的关系,则多是采用潜在专一性概念.
2 影响因素分析
兰科植物种类丰富、营养类型复杂、生态类型多样、地理分布限制,这些都会不同程度地影响兰科植物和与其共生真菌之间的专一性关系,本文对比总结了代表性文献的结果,并分析了影响兰科菌根专一性关系的主要因素(表1)[6,12,25-46].
表1 兰科植物与菌根真菌之间专一性关系的影响因素[6,12,25-46]
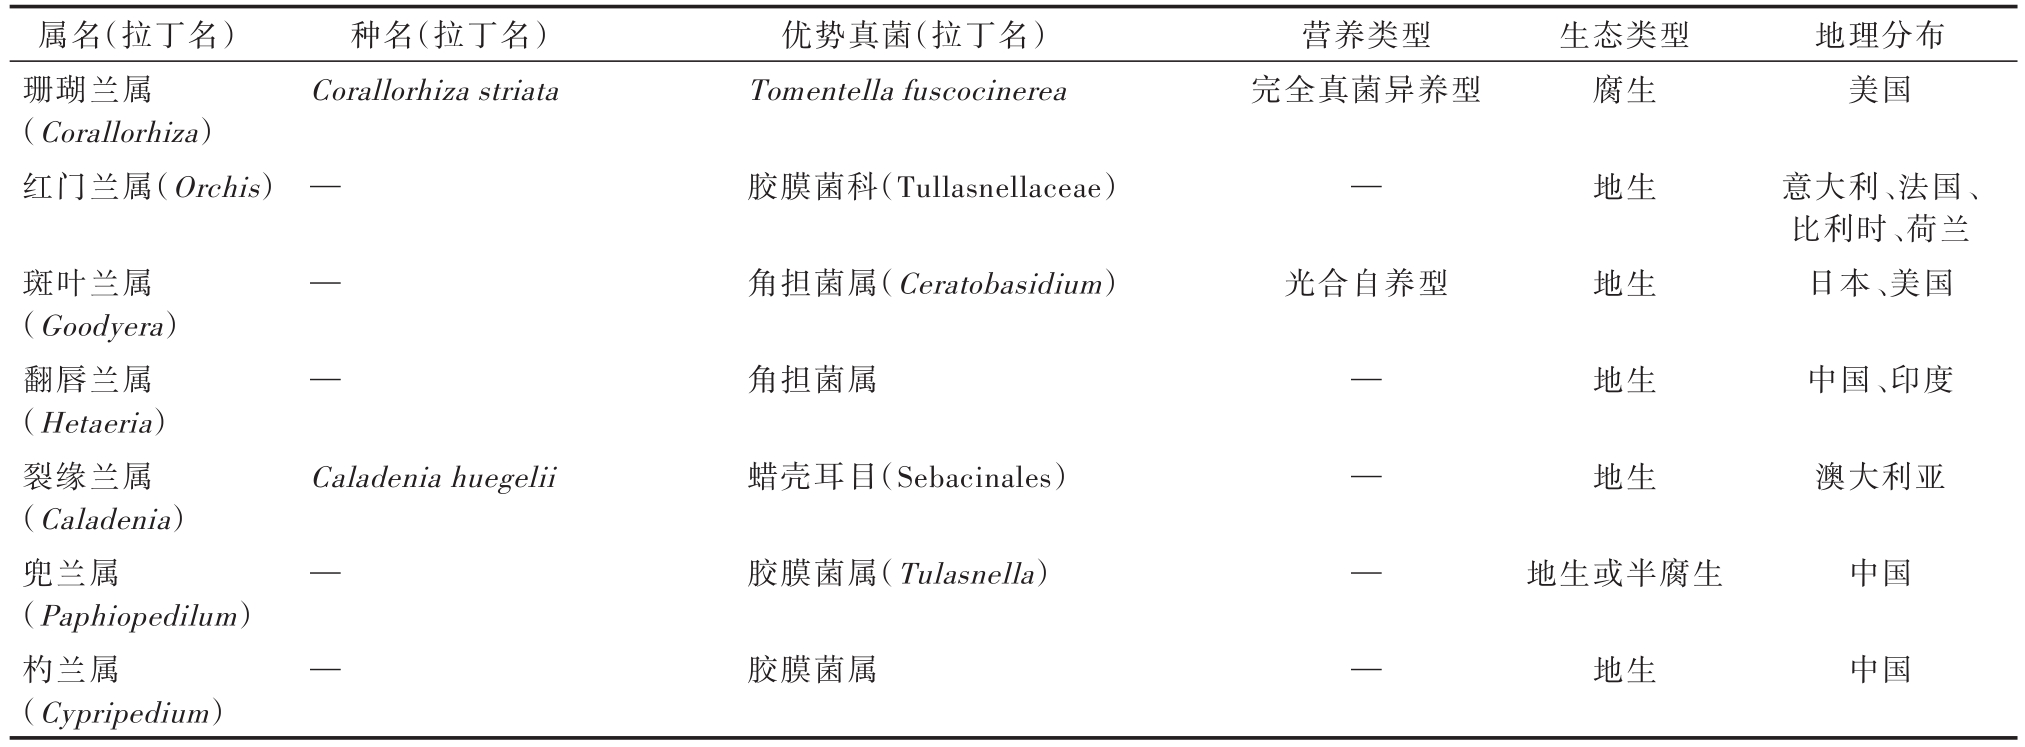
属名(拉丁名) 种名(拉丁名) 优势真菌(拉丁名) 营养类型 生态类型 地理分布珊瑚兰属(Corallorhiza)红门兰属(Orchis)Corallorhiza striata Tomentella fuscocinerea 完全真菌异养型 腐生 美国— —胶膜菌科(Tullasnellaceae) — 地生斑叶兰属(Goodyera)翻唇兰属(Hetaeria)裂缘兰属(Caladenia)兜兰属(Paphiopedilum)杓兰属(Cypripedium)角担菌属(Ceratobasidium) 光合自养型 地生意大利、法国、比利时、荷兰日本、美国角担菌属 地生 中国、印度Caladenia huegelii 蜡壳耳目(Sebacinales) 地生 澳大利亚— —胶膜菌属(Tulasnella) 地生或半腐生 中国胶膜菌属——地生 中国
续表
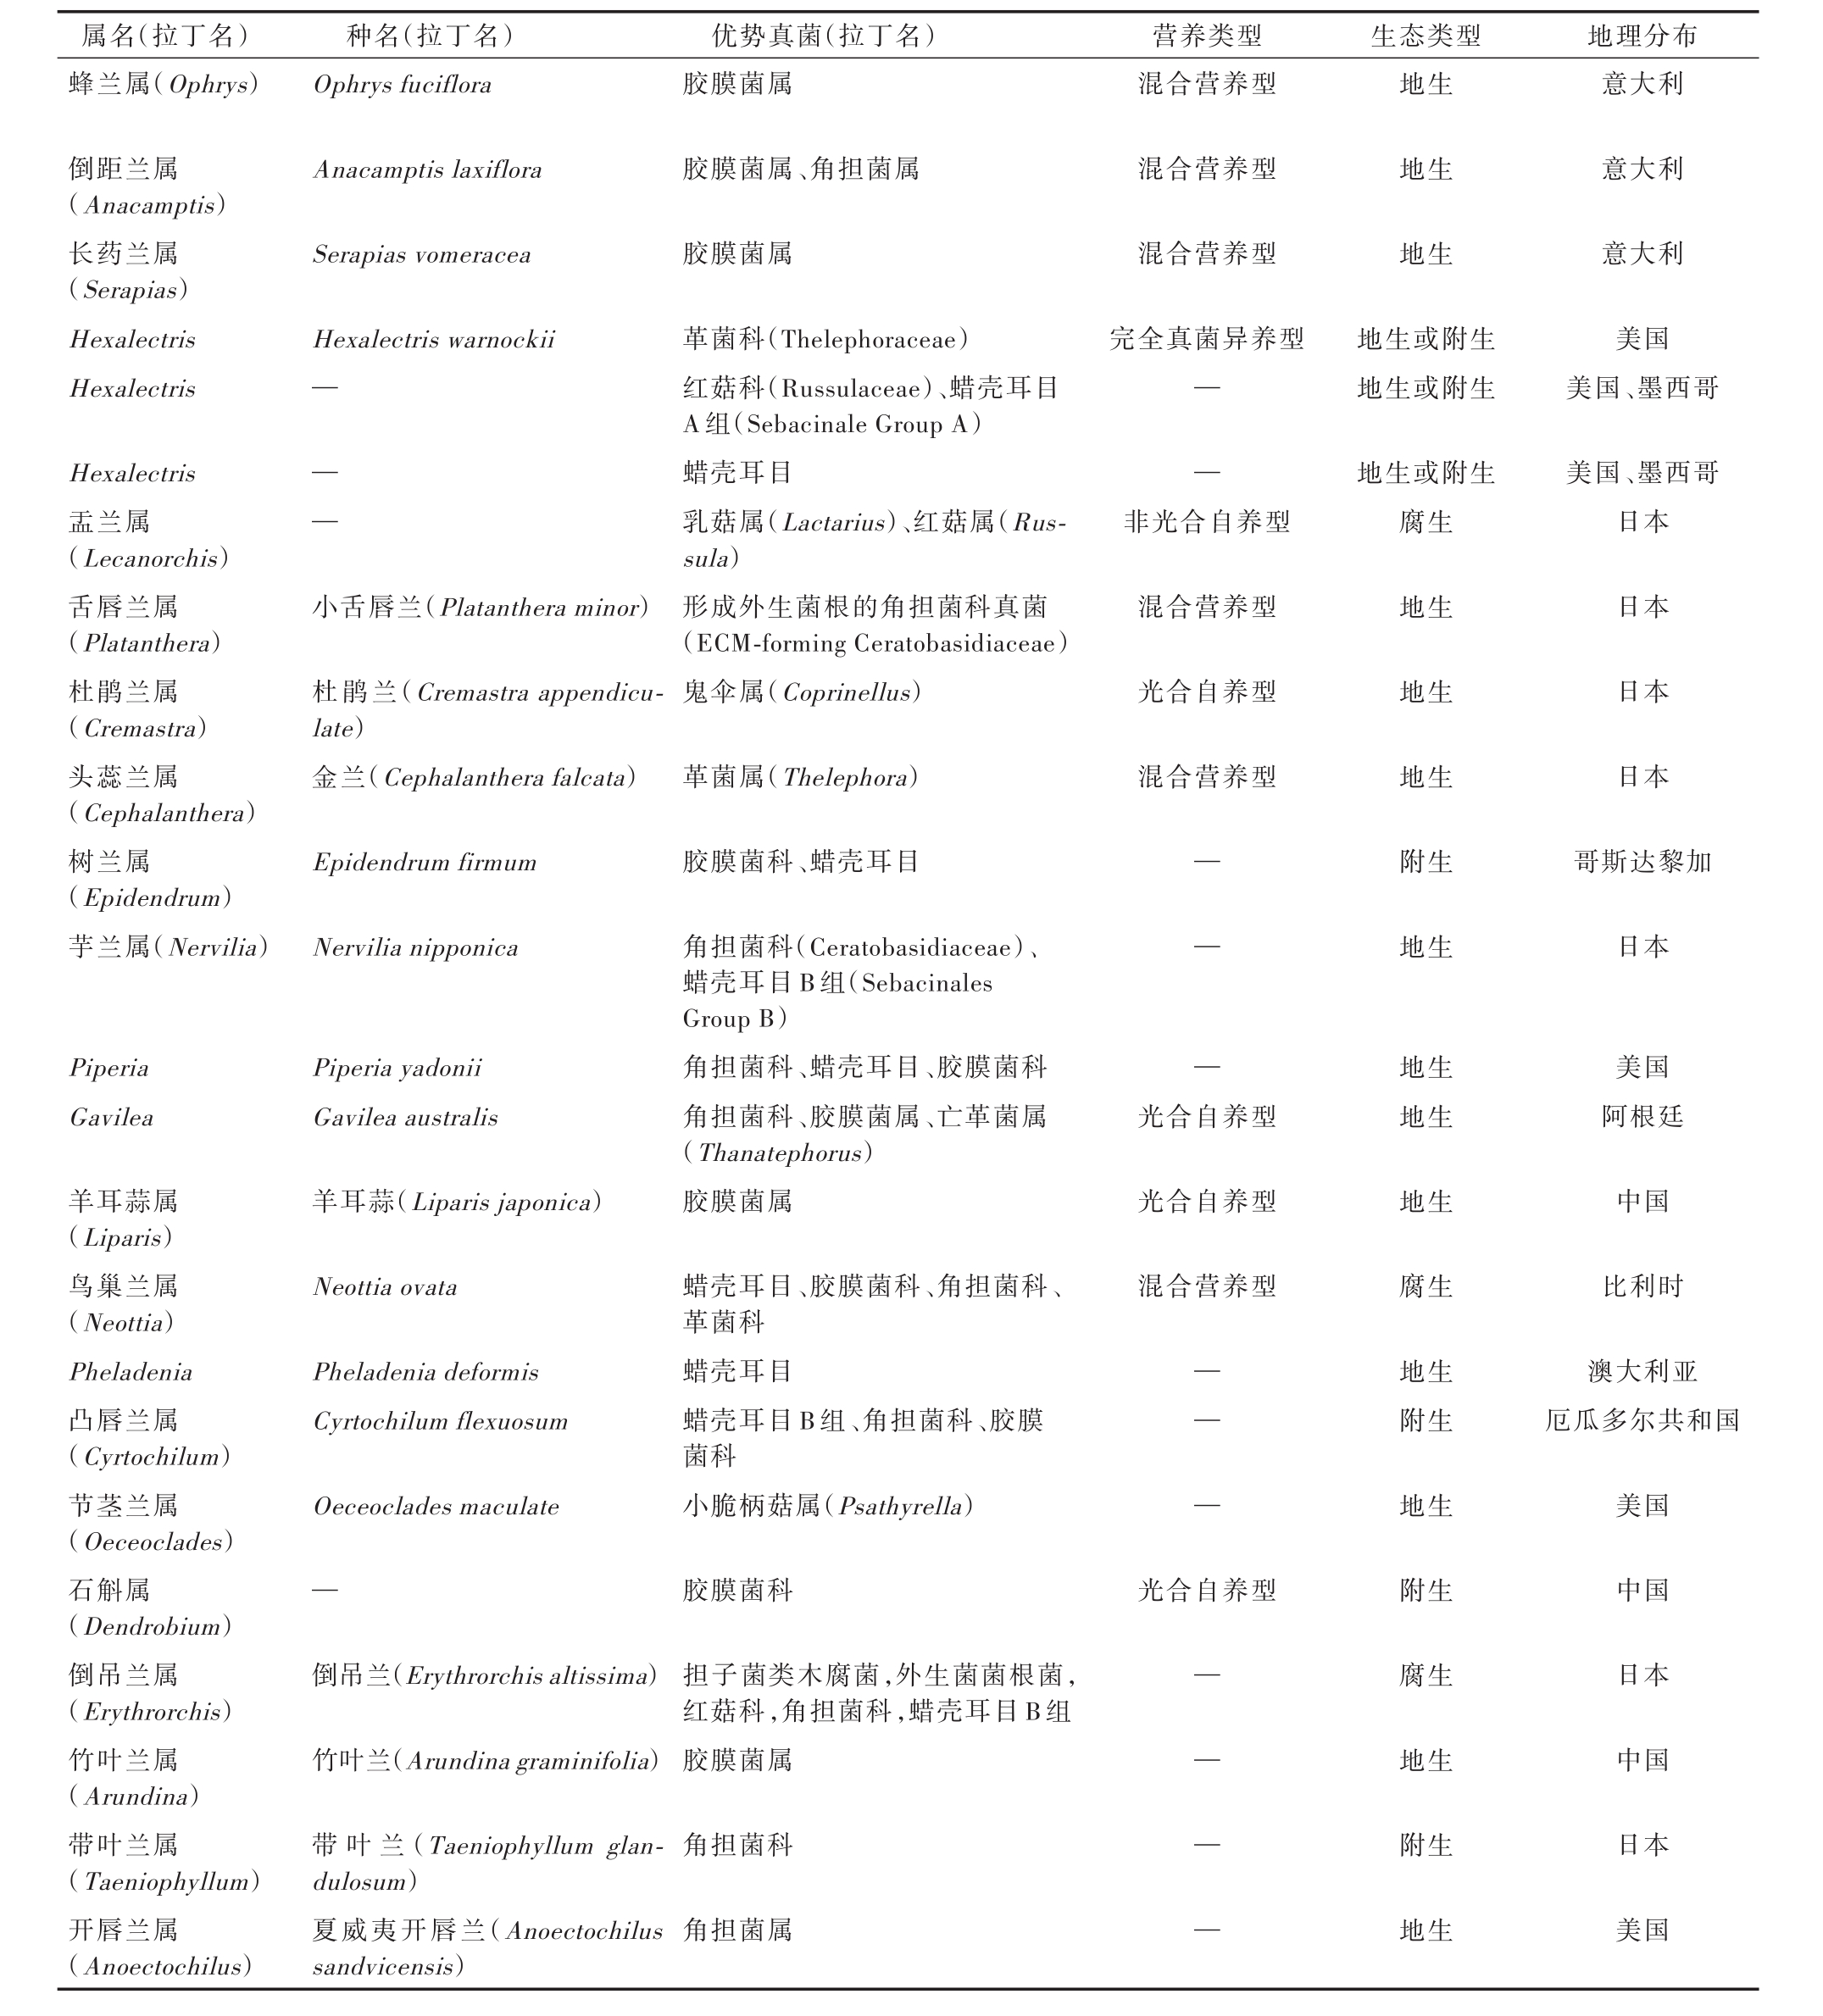
注:—指无数据.
属名(拉丁名) 种名(拉丁名) 优势真菌(拉丁名) 营养类型 生态类型 地理分布蜂兰属(Ophrys)Ophrys fuciflora 胶膜菌属 混合营养型 地生 意大利倒距兰属(Anacamptis)长药兰属(Serapias)Hexalectris Hexalectris Anacamptis laxiflora 胶膜菌属、角担菌属 混合营养型 地生 意大利Serapias vomeracea 胶膜菌属 混合营养型 地生 意大利Hexalectris warnockii 完全真菌异养型 地生或附生地生或附生美国美国、墨西哥Hexalectris盂兰属(Lecanorchis)舌唇兰属(Platanthera)杜鹃兰属(Cremastra)头蕊兰属(Cephalanthera)树兰属(Epidendrum)芋兰属(Nervilia)— — —— —非光合自养型地生或附生腐生美国、墨西哥日本小舌唇兰(Platanthera minor) 混合营养型 地生 日本杜鹃兰(Cremastra appendicu⁃late)金兰(Cephalanthera falcata)革菌科(Thelephoraceae)红菇科(Russulaceae)、蜡壳耳目A组(Sebacinale Group A)蜡壳耳目乳菇属(Lactarius)、红菇属(Rus⁃sula)形成外生菌根的角担菌科真菌(ECM⁃forming Ceratobasidiaceae)鬼伞属(Coprinellus) 光合自养型 地生 日本革菌属(Thelephora) 混合营养型 地生 日本Epidendrum firmum 胶膜菌科、蜡壳耳目 附生 哥斯达黎加Nervilia nipponica 地生 日本Piperia Gavilea Piperia yadonii Gavilea australis—— —光合自养型地生地生美国阿根廷羊耳蒜属(Liparis)鸟巢兰属(Neottia)Pheladenia凸唇兰属(Cyrtochilum)节茎兰属(Oeceoclades)石斛属(Dendrobium)倒吊兰属(Erythrorchis)竹叶兰属(Arundina)带叶兰属(Taeniophyllum)开唇兰属(Anoectochilus)羊耳蒜(Liparis japonica)角担菌科(Ceratobasidiaceae)、蜡壳耳目B组(Sebacinales Group B)角担菌科、蜡壳耳目、胶膜菌科角担菌科、胶膜菌属、亡革菌属(Thanatephorus)胶膜菌属 光合自养型 地生 中国Neottia ovata 混合营养型 腐生 比利时Pheladenia deformis Cyrtochilum flexuosum地生附生澳大利亚厄瓜多尔共和国Oeceoclades maculate蜡壳耳目、胶膜菌科、角担菌科、革菌科蜡壳耳目蜡壳耳目B组、角担菌科、胶膜菌科小脆柄菇属(Psathyrella)— — —地生 美国—胶膜菌科 光合自养型 附生 中国倒吊兰(Erythrorchis altissima) 腐生 日本竹叶兰(Arundina graminifolia)担子菌类木腐菌,外生菌菌根菌,红菇科,角担菌科,蜡壳耳目B组胶膜菌属地生 中国带 叶 兰(Taeniophyllum glan⁃dulosum)夏威夷开唇兰(Anoectochilus sandvicensis)角担菌科附生 日本角担菌属——地生 美国
2.1 分类等级
兰科植物与菌根真菌之间专一性研究时间较久,但兰科植物与真菌之间的协同进化研究却始终被忽略.兰科植物包含800余属,2.8万余种,就目前已研究的有限属、种,无论是原始还是进化的兰科植物种类,其报道主要与胶膜菌科(Tulasnella⁃ceae)、角担菌科(Ceratobasidiaceae)及蜡壳耳目(Se⁃bacinales)真菌共生[27].兰科植物的属、种分类地位及系统发育关系,甚至不同倍体会部分影响与真菌的共生关系[9,47-48].
Jacquemyn 等[49]研究了 21种红门兰属(Orchis)的植物,显示其菌根真菌呈明显的镶嵌结构(nested network),具体表现为亲缘关系相近的兰科植物倾向与同一组单一分类单元(operational taxonomic units,OTU)的真菌共生,且随着植物系统发育距离的增加,二者之间的专一性程度降低.表明兰科菌根真菌专一性受兰科植物物种的系统发育限制.兰科植物斑叶兰属(Goodyera)系统发育数据表明其系统发育中较原始的种类菌根真菌专一性较高,随着植物系统发育距离的增加,二者之间的专一性发生变化[27],且兰科植物保留祖先共生体的多样性和进化生态位的保守型,最终表现为兰科菌根的系统发育具有一定的保守性.
2.2 营养类型
兰科植物与菌根真菌之间专一性关系可能与兰科植物异养程度有关[50],其在不同营养类型的宿主之间有较大差异.基于成年的兰科植物对碳源利用的不同,可分类为光合自养型(photosynthetic)、完全真菌异养型(fully mycoheterotrophic)和部分真菌异养型(partial mycoheterotrophic)或混合营养型(mixotrophs)3种不同的营养类型[51],其中完全真菌异养型和部分真菌异养型或混合营养型又统称为菌根异养型(mycoheterotrophic).
无论是广泛分布或限制性分布的光合自养型兰科植物,往往具有较低的菌根真菌专一性关系[26-27,36];从表 1 可知,与大部分光合自养型兰科植物共生的菌根真菌为胶膜菌科,角担菌科和蜡壳耳目 ,如 Gavilea australis[38]、羊 耳 蒜(Liparis japoni⁃ca)[39]、石斛属(Dendrobium)[44]或特定地域分布的光合自养型兰科植物 Piperia yadonii[36],且光合自养型兰科植物通常与蜡壳耳目B组(Sebacinales Group B)共生[52].与非光合自养型兰科植物整个生活史都不同程度依赖共生真菌为其提供营养物质不同,光合自养型兰科植物在成年阶段,自身进行光合作用获得营养物质,因此,可能对共生真菌的依赖更少,甚至有些植物为共生真菌提供碳营养物质,其与真菌形成共生关系时,存在一种机会主义现象,导致光合自养型兰科植物与共生真菌的专一性较低.
菌根异养型兰科植物,大多与可以进行光合作用的邻近树木的外生菌根真菌或非丝核菌类的腐生真菌,尤其是木腐菌、叶腐菌或蜡壳耳目A组(Sebacina⁃les Group A)共生 ,表 现 出高 度 的 专 一性[25,51,53-55].Barrett等[25]对完全真菌异养型兰科植物珊瑚兰属(Corallorhiza)植物Corallorhiza striata的42个种群、107个个体进行研究,结果显示Corallorhiza striata只与属于外生菌根真菌的革菌科(Thelephoraceae)革菌属(Tomentella)真菌共生,表现出高度的专一性.不同种类的混合营养型兰科植物舌唇兰属(Platanthera)植物小舌唇兰(Platanthera minor)与形成外生菌根的角担菌科真菌共生[33]、头蕊兰属(Cephalanthera)植物金兰(Cephalanthera falcata)与革菌属真菌共生[34]、鹤顶兰属(Limodorum)植物 Li⁃modorum abortivum与外生菌根真菌⁃红菇科(Russu⁃laceae)真菌具有高度的专一性[50].生长在森林中的绿色兰科植物,在荫蔽环境中光合效率低下,因此,强烈依赖共生真菌为其提供碳水化合物,表现为混合营养型.菌根异养型兰科植物由于其分布具有不重叠的地理范围或栖息地有一定偏好性,导致没有遇到某些真菌类群或其变种;或者可能因为与其共生的真菌具有更稳定、高输出量的碳及其他营养物质特性,最终导致二者之间具有高度专一性.混合营养型兰科植物的菌根真菌专一性程度介于光合自养型和完全真菌异养型兰科植物之间,一方面较自养型兰科植物菌根真菌专一性程度高,另一方面比完全真菌异养型兰科植物菌根真菌专一性程度低.
2.3 生态类型
兰科植物的生态类型与其菌根真菌间的专一性关系的研究近几年备受关注.兰科植物从生活环境上可分为地生、石生、附生和腐生4种生态类型.从表1中可知,不同种类的地生兰,如斑叶兰属植物的优势共生菌群为角担菌属真菌[27],竹叶兰属(Arundina)植物的优势共生菌群为胶膜菌属[46],附生兰树兰属(Epidendrum)[35]、凸唇兰属(Cyrtochi⁃lum)多与胶膜菌科、蜡壳耳目真菌共生[42],腐生兰珊瑚兰属植物仅与革菌属真菌共生[25].此外,热带地区的附生兰的共生真菌类群较地生兰共生真菌更为保守和专一[56],由于附生兰在热带生态系统中种类高度多样化,生长环境存在水分短缺、养分有限和辐照受一定约束等问题,导致其比地生兰的生态位紧张,具有较强的营养限制,因此,需要较为稳定的营养来源.地生兰的种子在地下发育很长时间,期间靠真菌提供稳定、持久的碳源,因此,地生兰可能会形成极高的菌根真菌特异性,表现为世界范围内的地生兰与胶膜菌科真菌共生[49,57],如杓兰属(Cypripedium)植物的优势共生菌群主要是胶膜菌属真菌[30].大多数的附生绿色兰科植物的共生真菌属于角担菌科、胶膜菌科和蜡壳耳目,且与地生兰共生萌发真菌一样,都以胶膜菌科和角担菌科真菌占绝对优势.
2.4 地理分布
兰科菌根专一性与宿主植物的地理分布存在一定的相关性.兰科植物种子缺乏胚乳,在种子萌发及幼苗生长阶段高度依赖菌根真菌完成其生命周期.因此,兰科植物的地理分布受共生真菌的丰度与分布的影响,从而影响兰科菌根真菌专一性.
部分研究表明,在岛屿分布的兰科植物或具有较高的菌根真菌专一性,或多与以胶膜菌科真菌为优势菌根真菌的丝核菌类真菌共生[12].如 Swift等[12]研究夏威夷群岛(6个独立海洋岛屿)特有开唇兰属(Anoectochilus)植物 Anoectochilus andvicensis的菌根真菌种类,显示其每一个种群都与角担菌属特定种共生,表明二者之间具有较高的专一性,可能的原因是由于岛屿上可利用的真菌种类较少,使其具有较高的菌根真菌专一性;Martos等[56]研究显示,热带岛屿Reunion岛上生长的25属73种兰科植物(地生兰和附生兰)多与丝核菌类真菌共生,其中胶膜菌科真菌为主要优势菌根真菌所占百分比69%,其次为Sebacinales Group B真菌和角担菌科真菌,推测不同岛屿的真菌种类不同,在一定程度上限制了当地兰科植物与其菌根真菌的专一性.
陆地地区或地理分布更广的不同岛屿地区的兰科植物其菌根真菌专一性相对较低,可能由于陆地共生真菌的种类更多,兰科植物有更大的概率与更多的真菌共生.具体表现为热带地区由于其真菌种类丰富,该地区的兰科植物具有较低的菌根真菌专一性[26].胶膜菌属真菌是地中海地区兰科植物优势共生菌根真菌[58];McCormick 和 Jacque⁃myn[59]研究表明,大规模分布的同种稀有兰科植物的菌根真菌种类无显著性差异,大规模分布的稀有兰科植物与菌根真菌之间专一性不受真菌地理位置的影响;McCormick等[8]指出在小规模有限的取样尺度上稀有兰科植物与菌根真菌之间专一性受地理位置的影响;Xing等[60]研究表明2种广泛分布的兰科植物手参(Gymnadenia conopsea)、火烧兰(Epipactis helleborine)受地理位置的影响,其菌根真菌组成有显著性差异,具体表现为:欧洲地区(3个国家共4个居群)手参的OTU主要属于胶膜菌科,而中国地区(6个居群)手参的OTU则主要属于角担菌科真菌;欧洲地区(3个国家7个居群)火烧兰的OTU主要属于红菇科,而中国地区(3个省7个居群)的OTU主要属于块菌科(Tuberaceae),且2种兰科植物的菌根群落的相似性随着地理距离的增加而显著降低,表明部分广泛分布的兰科植物不同地区的菌根真菌专一性不同.值得注意的是兰科植物的分布不一定受共生真菌分布的限制.
2.5 生长发育阶段
兰科植物与菌根真菌之间专一性关系与宿主植物生长发育相关,在兰科植物生长发育过程中,共生真菌的多样性存在一个瓶颈.且对于温带地区欧洲一些混合营养型兰科植物在其幼苗后期阶段专一性程度最高,在植物成年阶段共生真菌种类再次增加[46].如 Huang等[61]从齿瓣石斛(Dendrobium devonianum)原球茎中分离得到菌根真菌FDd1、兜唇石斛(Dendrobium aphyllum)中分离得到菌根真菌FDaI7、硬叶兰(Cymbidium mannii)中分离得到菌根真菌FCb4,研究证实3种菌根真菌均能促进齿瓣石斛的种子萌发与原球茎的形成,但只有FDd1能够促进其幼苗生长,表明该植物幼苗成长阶段具有较高的菌根真菌专一性.腐生兰科植物天麻,其种子萌发阶段需要与紫箕小菇(Mycena osmuudicola)、石斛小菇(Mycena dendrobii)等小菇属(Mycena)真菌共生,而其原球茎发育及繁殖则必须要与蜜环菌共生[62].
兰科植物的成年阶段营养物质需求增加,改变共生真菌种类有助于其提高对环境波动干扰的耐受性.此外,兰科植物在不同生长阶段与不同真菌共生,具有一定的生态优势,具体表现为兰科植物在早期生长阶段,由于和成年植物具有不同的共生真菌,从而避免了与成年兰科植物的竞争.Jacque⁃myn等[49]指出红门兰属原球茎阶段对菌根真菌的专一性高于成年阶段;而Waud等[63]表明羊耳蒜属植物Liparis loeselii的原球茎阶段所含共生真菌种类比幼苗及成年阶段所含共生真菌种类丰富.可能因为Liparis loeselii是一种生长周期短,频繁萌发与死亡的物种,因此,需要与更多的真菌共生以达到增加种子萌发概率的目的,表现为其在原球茎阶段有较低的菌根真菌专一性.兰科植物发育阶段与菌根真菌的专一性关联模式还有待深入研究.
2.6 其他因素
除以上主要客观因素外,土壤养分有效性[9]、土壤含水量[63]、土质类型[64]、采样量大小、采样时间[65]、实验室条件下的培养条件和研究手段等其他因素,也对兰科植物与菌根真菌之间的专一性研究有一定的影响.
理想情况下,兰科植物与菌根真菌之间的专一性研究,应在兰科植物原生境或模拟原生境的条件下进行,具体表现为真菌在接近自然生态环境的基质上培养、兰科种子具有一定活性以及了解共生期间所参与的所有物种等.然而,大多数情况下,二者之间专一性研究是建立在离理想状态很远的情况下进行.随着研究兰科植物种类的增多、兰科菌根生态学的发展、分子生物学技术的进步、共生机制的完善和专一性定义明确,兰科植物与菌根真菌之间专一性关系将会有更确切的研究结论出现.
3 研究方法
兰科菌根真菌的鉴定及多样性分析是研究兰科植物与菌根真菌专一性关系的前提,是全面理解二者之间的专一性的基础.根据兰科菌根真菌研究方法的发展历程,结合鉴定结果的准确性与高效性,将其研究方法主要分为2种,即经典研究法和分子生物学方法.
3.1 经典研究法
经典的研究方法主要基于形态学、解剖学和生理学特征对兰科菌根真菌进行研究,该研究的前提是以获得可培养的真菌.真菌的分离培养方法主要包括组织块表面消毒分离法、单菌丝圈分离法、原生境种子诱捕法和实验室播种诱捕法等.早期兰科菌根信息均是运用此类方式获得,该方法使基本的真菌鉴定、兰科种子共生萌发实验成为可能.
(1)组织块表面消毒分离法.利用流动水将兰科植物组织表面冲洗干净后,用75%酒精进行表面消毒,无菌水冲洗组织块表面的消毒剂后,将其切成小段接种在培养基中培养.在适宜的培养条件下,及时观察分离纯化菌根真菌.该方法操作简便,且不需要大型仪器,但存在菌根真菌的分离率低或鉴定不准确的现象.
(2)单菌丝圈分离法.用解剖针从表面消毒后的组织块细胞中分离菌丝团,在体式镜下挑取单个菌丝团接种到培养基中,在合适的条件下培养,并及时观察纯化菌根真菌.该方法使兰科菌根真菌的分离率大大提高,但是实验操作有一定难度,不易分离出菌丝圈,且部分菌根真菌的菌丝圈在培养基上生长活力减弱,不易存活.
(3)原生境种子诱捕法.将兰科植物种子套袋后放置于原生环境中进行种子萌发实验,从已萌发的原球茎中分离菌根真菌.该方法有利于定向分离得到促种子萌发的真菌.
(4)实验室播种诱捕法.取原生环境中土壤、枯枝落叶等基质,在实验室环境下进行种子萌发实验,以获得原生环境中促种子萌发的真菌.该方法有利于分离促萌发真菌,且打破兰科种子共生萌发研究的时空限制[66].
经典的研究方法对菌根真菌的分类、遗传多样性研究有一定的限制,因为兰科菌根真菌种类复杂,形态学特征往往不明显,在人工培养基上很难产生有重要鉴别特征的孢子,因此,该方法很难将菌根真菌鉴定到种水平,易造成鉴定结果不准确.此外,通过分离培养方法获得的真菌种类和数量相当有限,大量的菌根真菌可能未被分离培养.但在实验室条件下,研究兰科种子共生萌发、菌根真菌对兰科植物生长发育的影响和兰科植物保育工作需要可培养的菌根真菌资源.因此,通过经典研究方法获得可培养的菌根真菌具有一定的现实意义.如Zi等[67]利用原生境种子诱捕法,对西双版纳热带地区药用附生兰科植物兜唇石斛进行了有效促萌发真菌的分离、鉴定,并在实验室条件下成功进行离体共生萌发实验.
3.2 分子生物学方法
分子生物学方法主要利用DNA测序技术来鉴定真菌种类,该方法对真菌的鉴定更加准确和高效,故应用广泛;尤其是近几年发展起来的高通量测序技术(next generation sequencing,NGS)在兰科菌根研究中的应用,极大地提高了人们对兰科菌根真菌多样性和丰富性的认识,以及对兰科植物与菌根真菌之间专一性的理解.早期分子生物学技术在兰科菌根真菌研究领域的应用表现为,使用真菌通用引物或菌根真菌特异性引物,对兰科植物根的DNA片段进行直接聚合酶链式反应(poly⁃merase chain reaction,PCR)扩增和克隆测序[26,68]、单个菌丝圈PCR扩增或利用末端限制性片段长度多态性(terminal⁃restriction fragment length polymorphism,T⁃RFLP)技术[69]、变性/温度梯度凝胶电泳(dena⁃tured/temperature gradient gel electrophoresis,DGGE/TGGE)技术[70]、DNA微列阵(芯片)技术[71]等分析兰科植物根内的菌根真菌组成.上述方法是经典研究方法的补充,与经典研究法相比,其所需样品量少、耗时少、鉴定精准且效率高.
NGS历经几代测序平台,如454测序平台[58]、Meseq 测序平台、Hiseq 测序平台 101[72]和 Illumina MiSeq平台[42]等,科研人员利用以上平台研究兰科植物菌根真菌的群落特征,探讨兰科植物的菌群区系如何随时间、兰科植物生命阶段的变化而变化,较全面分析二者之间的专一性问题.rDNA片段NGS相对于早期分子生物学技术单位成本较低,在高度多样化的微生物系统中,利用该技术所得序列丰度丰富,目前该技术广泛应用于兰科植物定殖组织的真菌检测和根际微生物检测,鉴定准确性得到大幅度提升.
4 作用机制
目前,有关兰科植物的菌根共生机制尤其是兰科植物对共生真菌专一性的识别机制少见报道[73-74].为了探究兰科菌根相互作用的复杂性,科研人员已进行了大量的基因组、转录组和蛋白质组研究,在一定程度上阐明了菌根真菌的作用[75-76],但是兰科菌根共生机制相比丛枝菌根、外生菌根共生机制研究较少,尤其是在分子生理学方面.
最新研究表明,菌根异养型兰科植物与菌根真菌共生时,至少部分地拥有植物与丛枝菌根真菌共生的分子机制[73,77].Favre⁃Godal等[74]推测了菌根真菌与兰科植物相互作用时的可能机制(图1),包括:(1)兰科植物会分泌植物信号分子,如独脚金内酯和类黄酮或其他次生代谢物;(2)兰科菌根真菌会分泌菌根因子(mycorrhizal factors,Myc factors),如脂质几丁糖/短链几丁质寡聚物(COs/LCOs)或类似化合物来激活植物的共同共生基因(common symbi⁃osis genes,CSGs);(3)真菌通过分泌小抑制剂蛋白等效应物来逃避病原体相关分子模式(pathogen⁃as⁃sociated molecular patterns,PAMPs)引发的免疫反应,从而逃避植物的防御机制;(4)兰科植物分泌植物激素,帮助真菌定植或干扰植物产生防御激素等4个可能的级联反应.此外,兰科菌根真菌分泌多种可诱导植物免疫的细胞壁降解酶,帮助其在兰科植物组织皮层细胞内定殖[78].以上推测内容为研究兰科植物的菌根共生机制提供了思路与方向.
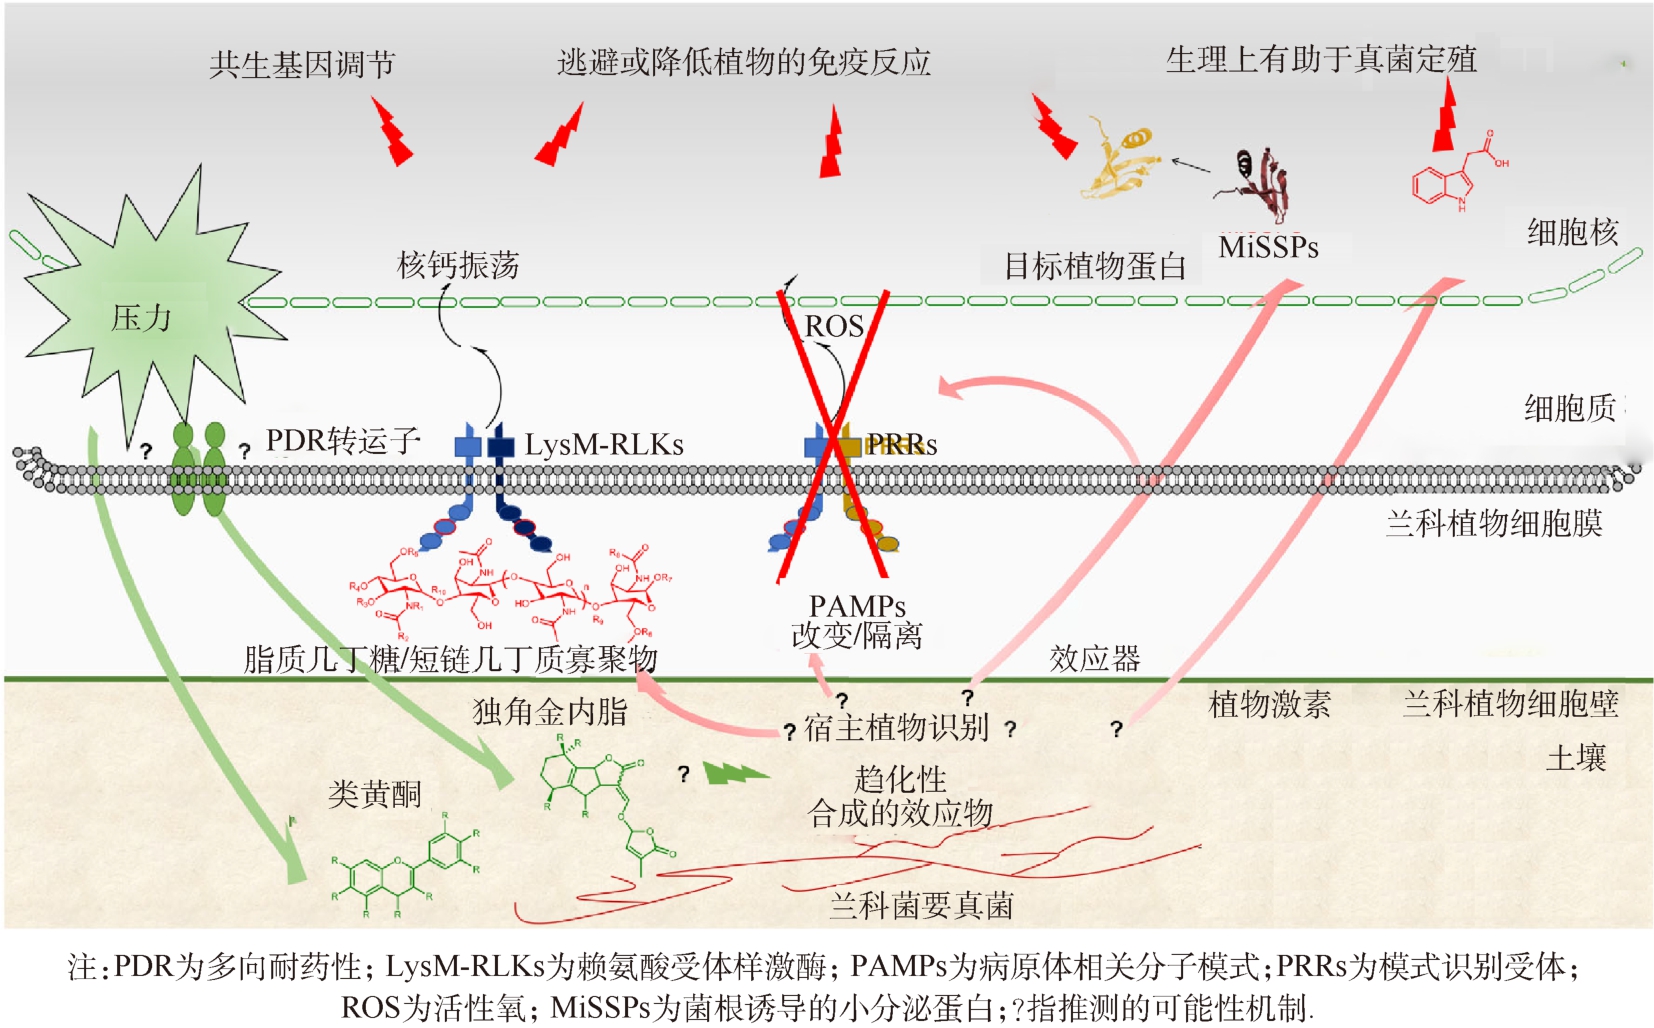
图1 兰科菌根形成过程中宿主植物与共生真菌相互作用时推测的作用机制示意[74]
5 问题与展望
兰科是植物界分布最广,物种多样性最丰富的有花植物科之一,兰科植物高度依赖菌根真菌来完成其生命周期,大量研究表明兰科植物与菌根真菌之间存在一定的专一性.近年来,兰科菌根真菌多样性及专一性研究有了长足的进展.然而,由于实验和分析的局限性,目前对兰科植物与菌根真菌专一性的认识可能还不完整,兰科菌根真菌专一性还存在一系列问题有待深入研究,主要集中在以下3个方面:
(1)兰科菌根真菌的多样性是研究兰科植物与菌根真菌之间专一性的基础,只有获得了更多种类的菌根真菌才能更加全面地分析二者之间的专一性关系.目前兰科菌根真菌的发掘远远不够,由于兰科植物种类庞大,绝大多数的兰科植物尚未被研究,且已有研究缺乏一定的系统性.以我国药用植物铁皮石斛为例,目前其研究仅限于一定地区、某个居群、甚至几株植物内生真菌的纯培养分离与分子分类等内容,缺乏一定的系统性研究,如本实验室大多针对浙江金华市、云南景洪市等地区进行铁皮石斛的兰科菌根真菌研究,而对我国其他非主产地区,如江西南昌市、安徽六安市和贵州驻兴义市等地区的铁皮石斛研究较为缺乏.今后应加大力度建立同属不同物种之间、同一物种不同地理分布(远距离与近距离)的居群之间、甚至野生种与栽培种之间、植物不同生长阶段之间,同时兼顾不同取样时间与取样数量的菌根真菌的分离鉴定与分子分类,旨在全面为兰科植物与菌根真菌的相互作用关系提供新论据,为分析二者之间的专一性提供更多数据,得出接近真实的结论.
(2)尽管大量文献指出兰科植物与菌根真菌之间存在专一性关系,但是二者之间相互作用的识别机制相比其他类型的菌根相互作用机制研究较少,尤其是在分子生理学方面.目前,兰科菌根相互作用的分子机制研究大多局限于相关基因的表达及其功能预测方面.由于兰科种子小,遗传操作困难,国内外尚未建立起兰科菌根共生的遗传转化体系,使得转录组、蛋白质组及代谢组的数据的深入挖掘和研究受到一定的限制.菌根真菌与兰科植物共生过程的形态学研究表明,兰科菌根共生建立的早期,同样经历了二者的相互识别、接触和真菌在特定部位侵入,继而在胚或根皮层细胞内形成菌丝圈,而后随着发育进程,菌丝圈消解.然而,有关每个过程的细节,如细胞形态和结构的变化,信号分子及信号转导途径、菌丝圈的形成和消解过程与机制等,都鲜有研究.因此,兰科菌根真菌的特性、共生遗传转化体系、兰科菌根共生机制与其他菌根的异同,以及兰科菌根的作用机制将是今后的研究重点.
(3)利用兰科植物与菌根真菌二者之间专一性关系,加强菌根真菌对兰科植物资源保护及利用.兰科植物种数虽多,但也是受威胁最严重的物种之一.一方面由于其复杂的生活史,兰科植物很容易受到栖息地破坏和气候变化的严重影响;另一方面不可持续的采集(通常是非法和无证许可的)带来的威胁,这对一些是园艺、食品或药品的原材料的兰科植物种群来说是一个额外的风险.为了更有效地保护兰科植物,菌根真菌的作用对兰科植物种群的生存延续至关重要,如果根据专一性研究结果,在最佳时期提供相应的菌肥,增加其成活率,或增加一些药用兰科植物的药用活性成分等,对于兰科植物的保育和栽培、濒危兰科植物种群资源的保护和恢复有极大贡献.
[1]CHRISTENHUSZ M J M,BYNG B J.The number of known plant species in the world and its annual increase[J].Phyto⁃taxa,2016,261(3):201-217.
[2]FAY M F.Orchid conservation:how can we meet the challenges in the twenty⁃first century?[J].Botanical Studies,2018,59(1):16-22.
[3]国家药典委员会.中华人民共和国药典(一部)[M].北京:中国医药科技出版社,2015:58+282.
[4]SELOSSE M A.The latest news from biological interactions in orchids:in love,head to toe[J].New Phytologist,2014,202(2):337-340.
[5]BRONSTEIN J L,ARMBRUSTER W S,THOMPSON J N.Understanding evolution and complexity of species interactions using orchids as a model system[J].New Phytologist,2014,202(2):373-375.
[6]RAMMITSU K,YAGAME T,YAMASHITA Y,et al.A leafless epiphytic orchid,Taeniophyllum glandulosum Blume(Or⁃chidaceae),is specifically associated with the Ceratobasidiaceae family of basidiomycetous fungi[J].Mycorrhiza,2019,29(2):159-166.
[7]张盈,李媛媛,陈晓梅,等.铁皮石斛种子共生萌发形态学观察[J].首都师范大学学报(自然科学版),2019,40(5):35-42.
[8]MCCORMICK M K,WHIJHAM D F,CANCHANI⁃VIRUET A.Mycorrhizal fungi affect orchid distribution and population dynamics[J].New Phytologist,2018,219(4):1207-1215.
[9]JACQUEMYN H,WAUD M,MERCKX V S F T,et al.Habitat⁃driven variation in mycorrhizal communities in the terres⁃trial orchid genus Dactylorhiza[J].Scientific Rreports,2016,6(1):37182.
[10]BERNARD N.L'evolutlon dans la symbiose.Les Orchidees et leur champignons commensaux[J].Annales Des Sciences Naturelles,1909,99:1-96.
[11]KAUR J,ANDREWS L,SHARMA J.High specificity of a rare terrestrial orchid toward a rare fungus withinthe North American tallgrass prairie[J].Fungal Biology,2019,123(12):895-904.
[12]SWIFT S,MUNROE S,IM C,et al.Remote tropical island colonization does not preclude symbiotic specialists:new evi⁃dence of mycorrhizal specificity across the geographic distribution of the Hawaiian endemic orchid Anoectochilus sandvi⁃censis[J].Annals of Botany,2019,123(4):657-666.
[13]PÕLME S,BAHRAM M,JACQUEMYN H,et al.Host preference and network properties in biotrophic plant⁃fungal associ⁃ations[J].New Phytologist,2018,217(3):1230-1239.
[14]DEARNALEY J D W.Further advances in orchid mycorrhizal research[J].Mycorrhiza,2007,17(6):475-486.
[15]HEILMANN⁃CLAUSEN J,MARUYAMA P K,BRUUN H H,et al.Citizen science data reveal ecological,historical and evolutionary factors shaping interactions between woody hosts and wood⁃inhabiting fungi[J].New Phytologist,2016,212(4):1072-1082.
[16]HORTON T R.Mycorrhizal Networks[M].Dordrecht:Springer Science+Business Media,2015:1-39.
[17]VAN DER HEIJDEN M G,MARTIN F M,SELOSSE M A,et al.Mycorrhizal ecology and evolution:the past,the present,and the future[J].New Phytologist,2015,205(4):1406-1423.
[18]HOCK B.Fungal Associations[M].2nd ed.Berlin Heidelberg:Springer⁃Verlag,2012:207-230.
[19]HADLEY G.Non⁃specificity of symbotic infection in orchid mycorrhiza[J].New Phytologist,1970,69(4):1015-1023.
[20]HEIJDEN M G A,SANDERS I R.Mycorrhizal ecology[M].Berlin:Springer Verlag,2002:357-413.
[21]PATERSON S,VOGWILL T,BUCKLING A,et al.Antagonistic coevolution accelerates molecular evolution[J].Nature,2010,464(7286):275-278.
[22]RASMUSSEN H N.Recent developments in the study of orchid mycorrhiza[J].Plant and Soil,2002,244(1/2):149-163.
[23]MASUHARA G,KATSUYA K.In situ and in vitro specificity between Rhizoctonia spp.and Spiranthes sinensis(Persoon)Ames.var.amoena(M.Bieberstein)Hara(Orchidaceae)[J].New Phytologist,1994(127):711-718.
[24]PERKINS A J,MASUHARA G,MCGEE P A.Specificity of the associations between Microtis parvifora(Orchidaceae)and its mycorrhizal fungi[J].Australian Journal of Botany,1995,43:85-91.
[25]BARRETT C F,FREUDENSTEIN J V,TAYLOR D L,et al.Rangewide analysis of fungal associations in the fully myco⁃heterotrophic Corallorhiza striata complex(Orchidaceae) reveals extreme specificity on ectomycorrhizal Tomentella(Thelephoraceae)across North America[J].American Journal of Botany,2010,97(4):628-643.
[26]JACQUEMYN H,HONNAY O,CAMMUE BP,et al.Low specificity and nested subset structure characterize mycorrhizal associations in five closely related species of the genus Orchis[J].Molecular Ecology,2010,19(18):4086-4095.
[27]SHEFFERSON R P,COWDEN C C,MCCORMICK M K,et al.Evolution of host breadth in broad interactions:mycorrhi⁃zal specificity in East Asian and North American rattlesnake plantains(Goodyera spp.)and their fungal hosts[J].Molec⁃ular Ecology,2010,19(14):3008-3017.
[28]SWARTS N D,SINCLAIR E A,FRANCIS A,et al.Ecological specialization in mycorrhizal symbiosis leads to rarity in an endangered orchid[J].Molecular Ecology,2010,19(15):3226-3242.
[29]GIRLANDA M,SEGRETO R,CAFASSO D,et al.Photosynthetic Mediterranean meadow orchids feature partial mycohet⁃erotrophy and specific mycorrhizal associations[J].American Journal of Botany,2011,98(7):1148-1163.
[30]YUAN L,YANG Z L,LI S Y,et al.Mycorrhizal specificity,preference,and plasticity of six slipper orchids from South Western China[J].Mycorrhiza,2010,20(8):559-568.
[31]OKAYAMA M,YAMATO M,YAGAME T,et al.Mycorrhizal diversity and specificity in Lecanorchis(Orchidaceae)[J].Mycorrhiza,2012,22(7):545-553.
[32]KENNEDY A H,TAYLOR D L,WATSON L E.Mycorrhizal specificity in the fully mycoheterotrophic Hexalectris Raf.(Orchidaceae:Epidendroideae)[J].Molecular Ecology,2011,20(6):1303-1316.
[33]YAGAME T,ORIHARA T,SELOSSE M A,et al.Mixotrophy of Platanthera minor,an orchid associated with ectomycor⁃rhiza⁃forming Ceratobasidiaceae fungi[J].New Phytologist,2012,193(1):178-187.
[34]YAGAME T,YAMATO M.Mycoheterotrophic growth of Cephalanthera falcata(Orchidaceae)in tripartite symbioses with Thelephoraceae fungi and Quercus serrata(Fagaceae)in pot culture condition[J].Journal of Plant Research,2013,126(2):215-222.
[35]KARTZINEL T R,TRAPNELL D W,SHEFFERSON R P.Highly diverse and spatially heterogeneous mycorrhizal symbio⁃sis in a rare epiphyte is unrelated to broad biogeographic or environmental features[J].Molecular Ecology,2013,22(23):5949-5961.
[36]NOMURA N,OGURA⁃TSUJITA Y,GALE S W,et al.The rare terrestrial orchid Nervilia nipponica consistently associates with a single group of novel mycobionts[J].Journal of Plant Research,2013,126(5):613-623.
[37]PANDEY M,SHARMA J,TAYLOR D L,et al.A narrowly endemic photosynthetic orchid is non⁃specific in its mycorrhi⁃zal associations[J].Molecular Ecology,2013,22(8):2341-2354.
[38]FRACCHIA S,ARANDA⁃RICKERT A,FLACHSLAND E,et al.Mycorrhizal compatibility and symbiotic reproduction of Gavilea australis,an endangered terrestrial orchid from south Patagonia[J].Mycorrhiza,2014,24(8):627-634.
[39]DING R,CHEN X H,ZHANG L J,et al.Identity and specificity of Rhizoctonia⁃like fungi from different populations of Li⁃paris japonica(Orchidaceae)in Northeast China[J].PLoS One,2017,9(8):105573.
[40]JACQUEMYN H,WAUD M,MERCKX V S,et al.Mycorrhizal diversity,seed germination and long⁃term changes in population size across nine populations of the terrestrial orchid Neottia ovata[J].Molecular Ecology,2015,24(13):3269-3280.
[41]DAVIS B J,PHILLIPS R D,WRIGHT M,et al.Continent⁃wide distribution in mycorrhizal fungi:implications for the bio⁃geography of specialized orchids[J].Annals of Botany,2015,116(3):413-421.
[42]CEVALLOS S,SÁNCHEZ⁃RODRÍGUEZ A,DECOCK C,et al.Are there keystone mycorrhizal fungi associated to tropical epiphytic orchids?[J].Mycorrhiza,2017,27(3):225-232.
[43]BAYMAN P,MOSQUERA⁃ESPINOSA A T,SALADINI⁃APONTE C M,et al.Age⁃dependent mycorrhizal specificity in an invasive orchid,Oeceoclades maculate[J].American Journal of Botany,2016,103(11):1880-1889.
[44]XING X K,MA X T,MEN J X,et al.Phylogenetic constrains on mycorrhizal specificity in eight Dendrobium(Orchidace⁃ae)species[J].Science China Life Sciences,2017,60(5):536-544.
[45]OGURA⁃TSUJITA Y,GEBAUER G,XU H,et al.The giant mycoheterotrophic orchid Erythrorchis altissima is associated mainly with a divergent set of wood⁃decaying fungi[J].Molecular Ecology,2018,27(5):1324-1337.
[46]MENG Y Y,ZHANG W L,SELOSSE M A,et al.Are fungi from adult orchid roots the best symbionts at germination?A case study[J].Mycorrhiza,2019,29(5):541-547.
[47]OGURA⁃TSUJITA Y,YOKOYAMA J,MIYOSHI K,et al.Shifts in mycorrhizal fungi during the evolution of autotrophy to mycoheterotrophy in Cymbidium(Orchidaceae)[J].American Journal of Botany,2012,99(7):1158-1176.
[48]TĚŠITELOVÁ T,JERSÁKOVÁ J,ROY M,et al.Ploidy⁃specific symbiotic interactions:divergence of mycorrhizal fungi between cytotypes of the Gymnadenia conopsea group(Orchidaceae)[J].New Phytologist,2013,199(4):1022-1033.
[49]JACQUEMYN H,MERCKX V,BRYS R,et al.Analysis of network architecture reveals phylogenetic constraints on my⁃corrhizal specificity in the genus Orchis(Orchidaceae)[J].New Phytologist,2011,192(2):518-528.
[50]GIRLANDA M,SELOSSE M A,CAFASSO D,et al.Inefficient photosynthesis in the Mediterranean orchid Limodorum abortivum is mirrored by specific association to ectomycorrhizal Russulaceae[J].Molecular Ecology,2006,15(2):491-504.
[51]陈艳红,邢晓科,郭顺星.兰科植物与菌根真菌的营养关系[J].菌物学报,2017,36(7):807-819.
[52]WEISS M,SYKOROVA Z,GARNICA S,et al.Sebacinales everywhere:previously overlooked ubiquitous fungal endo⁃phytes[J].PLoS One,2011,6(2):16793.
[53]WEI M,WALLER F,ZUCCARO A,et al.Sebacinales⁃one thousand and one interactions with land plants[J].New Phytol⁃ogist,2016,211(1):20-40.
[54]SELOSSE M A,MARTOS F,PERRY B A,et al.Saprotrophic fungal symbionts in tropical achlorophyllous orchids:find⁃ing treasures among the'molecular scraps'?[J].Plant Signaling&behavior,2010,5(4):349-353.
[55]LEE Y I,YANG C K,GEBAUER G.The importance of associations with saprotrophic non⁃Rhizoctonia fungi among fully mycoheterotrophic orchids is currently under⁃estimated:novel evidence from sub⁃tropical Asia[J].Annals of Botany,2015,116(3):423-435.
[56]MARTOS F,MUNOZ F,PAILLER T,et al.The role of epiphytism in architecture and evolutionary constraint within my⁃corrhizal networks of tropical orchids[J].Molecular Ecology,2012,21(20):5098-5109.
[57]BAILAROTE B C,LIEVENS B,JACQUEMYN H.Does mycorrhizal specificity affect orchid decline and rarity?[J].American Journal of Botany,2012,99(10):1655-1665.
[58]JACQUEMYN H,WAUD M,LIEVENS B,et al.Differences in mycorrhizal communities between Epipactis palustris,E.helleborine and its presumed sister species E.neerlandica[J].Annals of Botany,2016,118(1):105-114.
[59]MCCORMICK M K,JACQUEMYN H.What constrains the distribution of orchid populations?[J].New Phytologist,2014,202(2):392-400.
[60]XING X K,GAO Y,ZHAO Z Y,et al.Similarity in mycorrhizal communities associating with two widespread terrestrial or⁃chids decays with distance[J].Journal of Biogeography,2020,47(2):421-433.
[61]HUANG H,ZI X M,LIN H,et al.Host⁃specificity of symbiotic mycorrhizal fungi for enhancing seed germination,proto⁃corm formation and seedling development of over⁃collected medicinal orchid,Dendrobium devonianum[J].Journal of Mi⁃crobiology,2018,56(1):42-48.
[62]ZENG X,LI Y Y,LING H,et al.Revealing proteins associated with symbiotic germination of Gastrodia elata by proteomic analysis[J].Botanical Studies,2018,59(1):8.
[63]WAUD M,BRYS R,VAN LANDUYT W,et al.Mycorrhizal specificity does not limit the distribution of an endangered or⁃chid species[J].Molecular Ecology,2017,26(6):1687-1701.
[64]RUIBAL M P,TRIPONEZ Y,SMITH L M,et al.Population structure of an orchid mycorrhizal fungus with genus⁃wide specificity[J].Science Reports,2017,7(1):5613.
[65]翟明恬.广西雅长自然保护区优势兰科植物根部内生真菌鉴定及多样性研究[D].北京:北京林业大学,2015.
[66]王美娜,胡玥,李鹤娟,等 .兰科植物菌根真菌研究新见解[J/OL].广西植物,2019[2019⁃11⁃07].http://kns.cnki.net/detail/45.1134.Q.20191107.0932.002.html.
[67]ZI X M,SHENG C L,GOODALE U M,et al.In situ seed baiting to isolate germination⁃enhancing fungi for an epiphytic orchid,Dendrobium aphyllum(Orchidaceae)[J].Mycorrhiza,2014,24(7):487-499.
[68]DEARNALEY J D W,BOUGOURE J J.Isotopic and molecular evidence for saprotrophic Marasmiaceae mycobionts in rhizomes of Gastrodia sesamoides[J].Fungal Ecology,2009,3(4):288-294.
[69]DICKIE I A,FITZJOHN R G.Using terminal restriction fragment length polymorphism(T⁃RFLP)to identify mycorrhizal fungi:a methods review[J].Mycorrhiza,2007,17(4):259-270.
[70]BOUGOURE D S,CAIRNEY J W.Fungi associated with hair roots of Rhododendron lochiae(Ericaceae)in an Australian tropical cloud forest revealed by culturing and culture⁃independent molecular methods[J].Environmental Microbiology,2005,7(11):1743-1754.
[71]LIEVENS B,VAN KERCHHOVE S,JUSTE A,et al.From extensive clone libraries to comprehensive DNA arrays for the efficient and simultaneous detection and identification of orchid mycorrhizal fungi[J].Journal of Microbiological Meth ⁃ods,2010,80(1):76-85.
[72]DEGNAN P H,OCHMAN H.Illumina⁃based analysis of microbial community diversity[J].The International Society for Microbial Ecology Journal,2011,6(1):183-194.
[73]PEROTTO S,RODDA M,BENETTI A,et al.Gene expression in mycorrhizal orchid protocorms suggests a friendly plant⁃fungus relationship[J].Planta,2014,239(6):1337-1349.
[74]FAVRE⁃GODAL Q,GOURGUIIION L,LORDEL⁃MADELEINE S,et al.Orchids and their mycorrhizal fungi:an insuffi⁃ciently explored relationship[J].Mycorrhiza,2020,30(11):5-22.
[75]TSAI W C,DIEVART A,HSU C C,et al.Post genomics era for orchid research[J].Botanical Studies,2017,58(1):61.
[76]LALLEMAND F,MARTIN⁃MAGNIETTE M L,GILARD F,et al.In situ transcriptomic and metabolomic study of the loss of photosynthesis in the leaves of mixotrophic plants exploiting fungi[J].Plant Journal,2019,98(5):826-841.
[77]SUETSUGU K,YAMATO M,MIURA C,et al.Comparison of green and albino individuals of the partially mycoheterotro⁃phic orchid Epipactis helleborine on molecular identities of mycorrhizal fungi,nutritional modes and gene expression in mycorrhizal roots[J].Molecular Ecology,2017,26(6):1652-1669.
[78]FLOUDAS D,BINDER M,RILEY R,et al.The Paleozoic origin of enzymatic lignin decomposition reconstructed from 31 fungal genomes[J].Science,2012,336(6089):1715-1719.