0 引 言
登革热是一类常见的虫媒传染病,其以埃及伊蚊和白纹伊蚊为主要的传病媒介,归于黄病毒科黄病毒属.最近的临床数据表明登革热发病比较急,发热后会立刻出现明显头痛、腰痛、关节炎及肌肉疼痛,以及皮肤出现瘀点或瘀斑,淋巴结肿大,白细胞和血小板减少等症状.登革热的传病媒介伊蚊在温带气候下的冬季仍然可以存活,但主要活跃在热带和亚热带地区.因此,登革热广泛流行于世界上各个不同地区,尤其是热带和亚热带地区.地处亚热带地区的广东省是我国登革热暴发最频繁的地区.近几十年来,广东省每年都会有登革热感染病例,每4~7 a会暴发一次大规模疫情.2014年,广东省暴发史上最严重的登革热疫情,截止到2014年10月21日,登革热患病者登记病例已有36 889例[1-2].如何消除和控制登革热病毒的传播依旧是当前的热点和难点问题.
传染病动力学方法是目前研究登革热病毒传播的有效方法之一.近年来,众多国内外学者对登革热病毒在宿主和媒介之间传播的数学模型进行了深入细致地研究,得到了一些重要结论[3-7].特别地,Garba等[8]提出了登革热病毒在人和蚊虫之间传播的数学模型,计算出了基本再生数的精确表达式,即,当基本再生数<1时无病平衡点是局部渐近稳定的,而当其 >1时,无病平衡点是不稳定的,且模型存在唯一渐近稳定的地方病平衡点.Amaku等[9]讨论了具有预防控制策略的登革热病毒传播模型,不仅给出了疾病消除与流行的阈值条件,而且详细讨论了阈值关于相关参数的敏感性.
临床研究表明,蚊虫的生命周期约为3周,登革热病毒在蚊虫体内会有一个潜伏期,时间一般在5~8 d,登革热病毒在人体内也会有一个潜伏期,时间一般在3~14 d[1].然而,在现有的大部分研究工作中,考虑到理论分析的便利性,往往忽略了登革热病毒在人和蚊虫体内的潜伏期时滞,这将高估疾病传播的风险.因此,有必要考虑具有潜伏期时滞的登革热病毒传播动力学模型,讨论潜伏期时滞对疾病消除和流行的影响.基于此,近年来已有部分学者研究具有时滞的媒介传染病模型.例如Wang和Zhao[10]讨论了具有时滞的登革热模型,给出疾病消除的阈值条件及地方病平衡点全局吸引的充分条件;Ruan等[11]研究了疟疾在媒介和宿主均带有潜伏期时滞的疟疾传播动力学模型,讨论了潜伏期时滞对阈值和疾病传播动态的影响.
基于上述讨论,本文通过构建一类具有潜伏期时滞的登革热病毒传播动力学模型,讨论模型无病平衡点和地方病平衡点的全局渐近稳定性,给出确定疾病消除或流行的阈值条件及模型参数关于阈值条件的敏感性.
1 模型建立
考虑到登革热病毒在人和蚊虫体内的潜伏期,基于经典的登革热病毒在人和蚊虫之间传播的动力学模型,建立如下具有潜伏期时滞的媒介传染病模型:
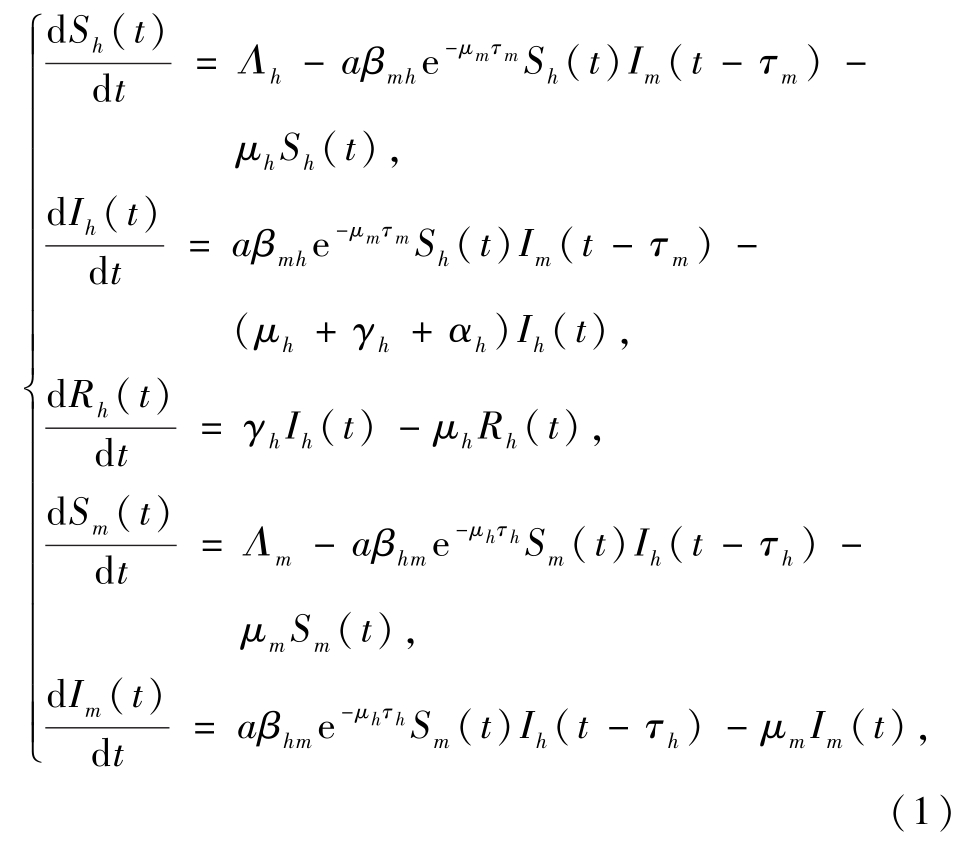
式中Sh(t)、Ih(t)和Rh(t)分别表示t时刻易感类、感染类和康复类的人数;Sm(t)和Im(t)分别表示t时刻易感类和感染类的蚊子数量;e-μhτh和e-μmτm分别表示人和蚊子的存活率.模型中其他参数的生物意义列于表1.
表1 模型(1)参数的生物意义
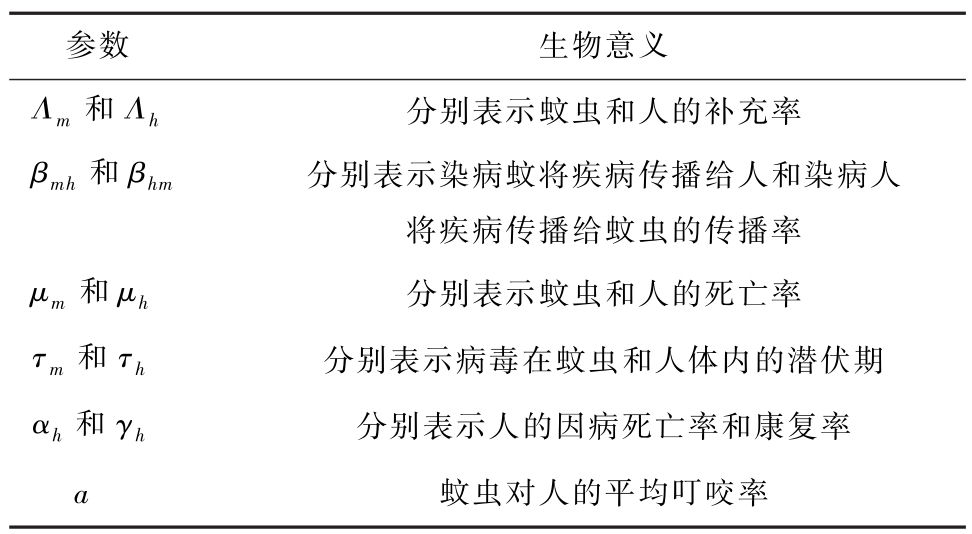
参数 生物意义Λm和Λh 分别表示蚊虫和人的补充率βmh和βhm 分别表示染病蚊将疾病传播给人和染病人将疾病传播给蚊虫的传播率μm和μh 分别表示蚊虫和人的死亡率τm和τh 分别表示病毒在蚊虫和人体内的潜伏期αh和γh 分别表示人的因病死亡率和康复率a蚊虫对人的平均叮咬率
由于模型(1)中4个方程都不含变量Rh(t),从而模型(1)等价于如下简化模型:
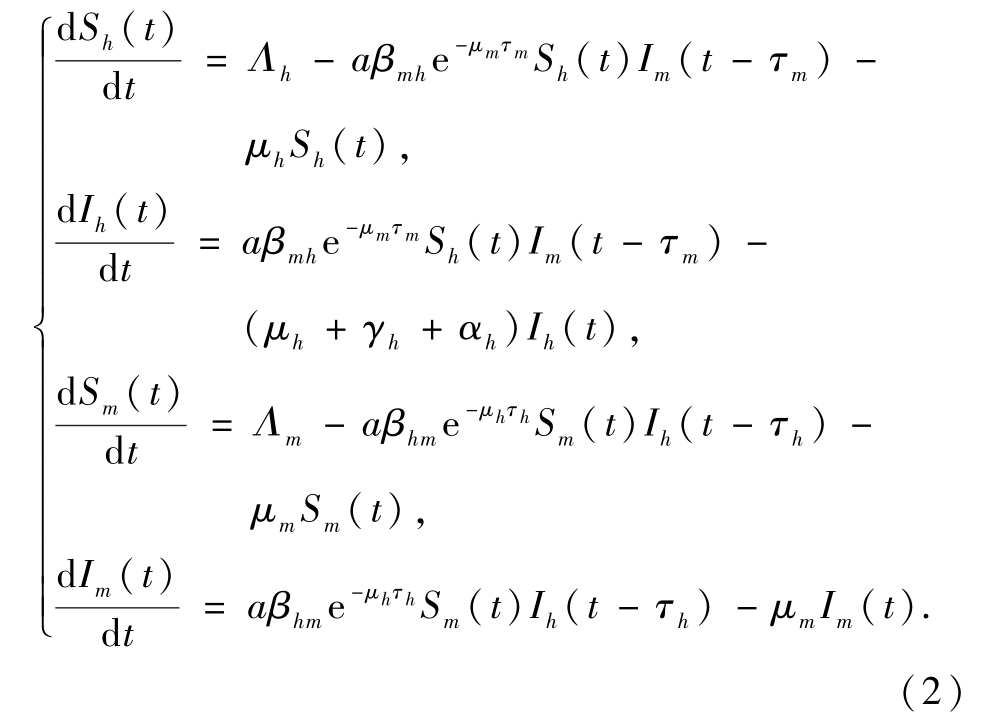
其初始条件为
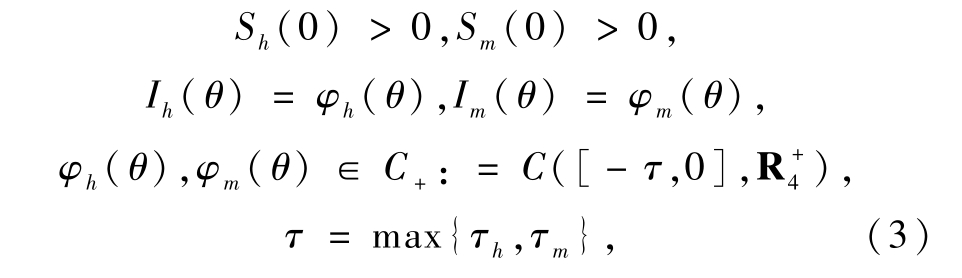
式中 C是Banach空间,C+:={φ∈C:φi(θ)≥0,i=m,h,θ∈[-τ,0]}表示连续函数φi(θ)将[-τ,0]映射到 的Banach空间.
由泛函微分方程的基本原理,可知模型(2)以(3)为初始条件的解(Sh(t),Ih(t),Sm(t),Im(t))是存在且是唯一的,并且所有过非负初值的解均是非负的.考虑到模型(2)的生物背景,仅需在可行域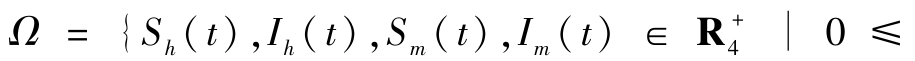
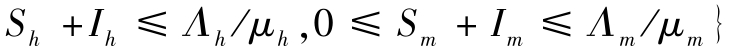 上讨论其动力学行为.易证Ω是模型(2)的正不变集.
2 平衡点的存在性和无病平衡点的稳定性
应用文献中的基本再生数的计算方法[12],模型(2)的基本再生数为
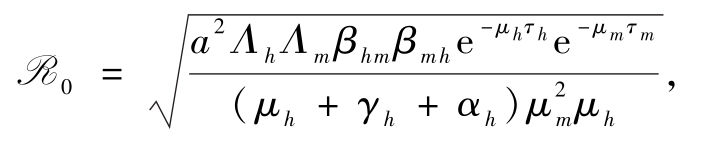
疾病的动力学行为可由R0描述.R0表示疾病在感染初期,人和蚊虫均为易感者时,1例患者在其染病期内平均可能感染的新病患者例数.注意到登革热的传播有人传播给蚊虫和蚊虫传播给人2种方式,每种传播方式都对应有自己的基本再生数.人传播给蚊虫的基本再生数为
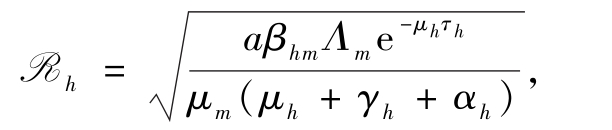
蚊虫传播给人的基本再生数为
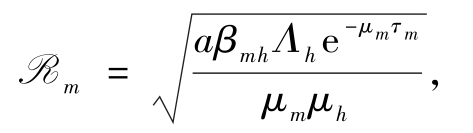
从而R0实际上是人和蚊虫的基本再生数的乘积.
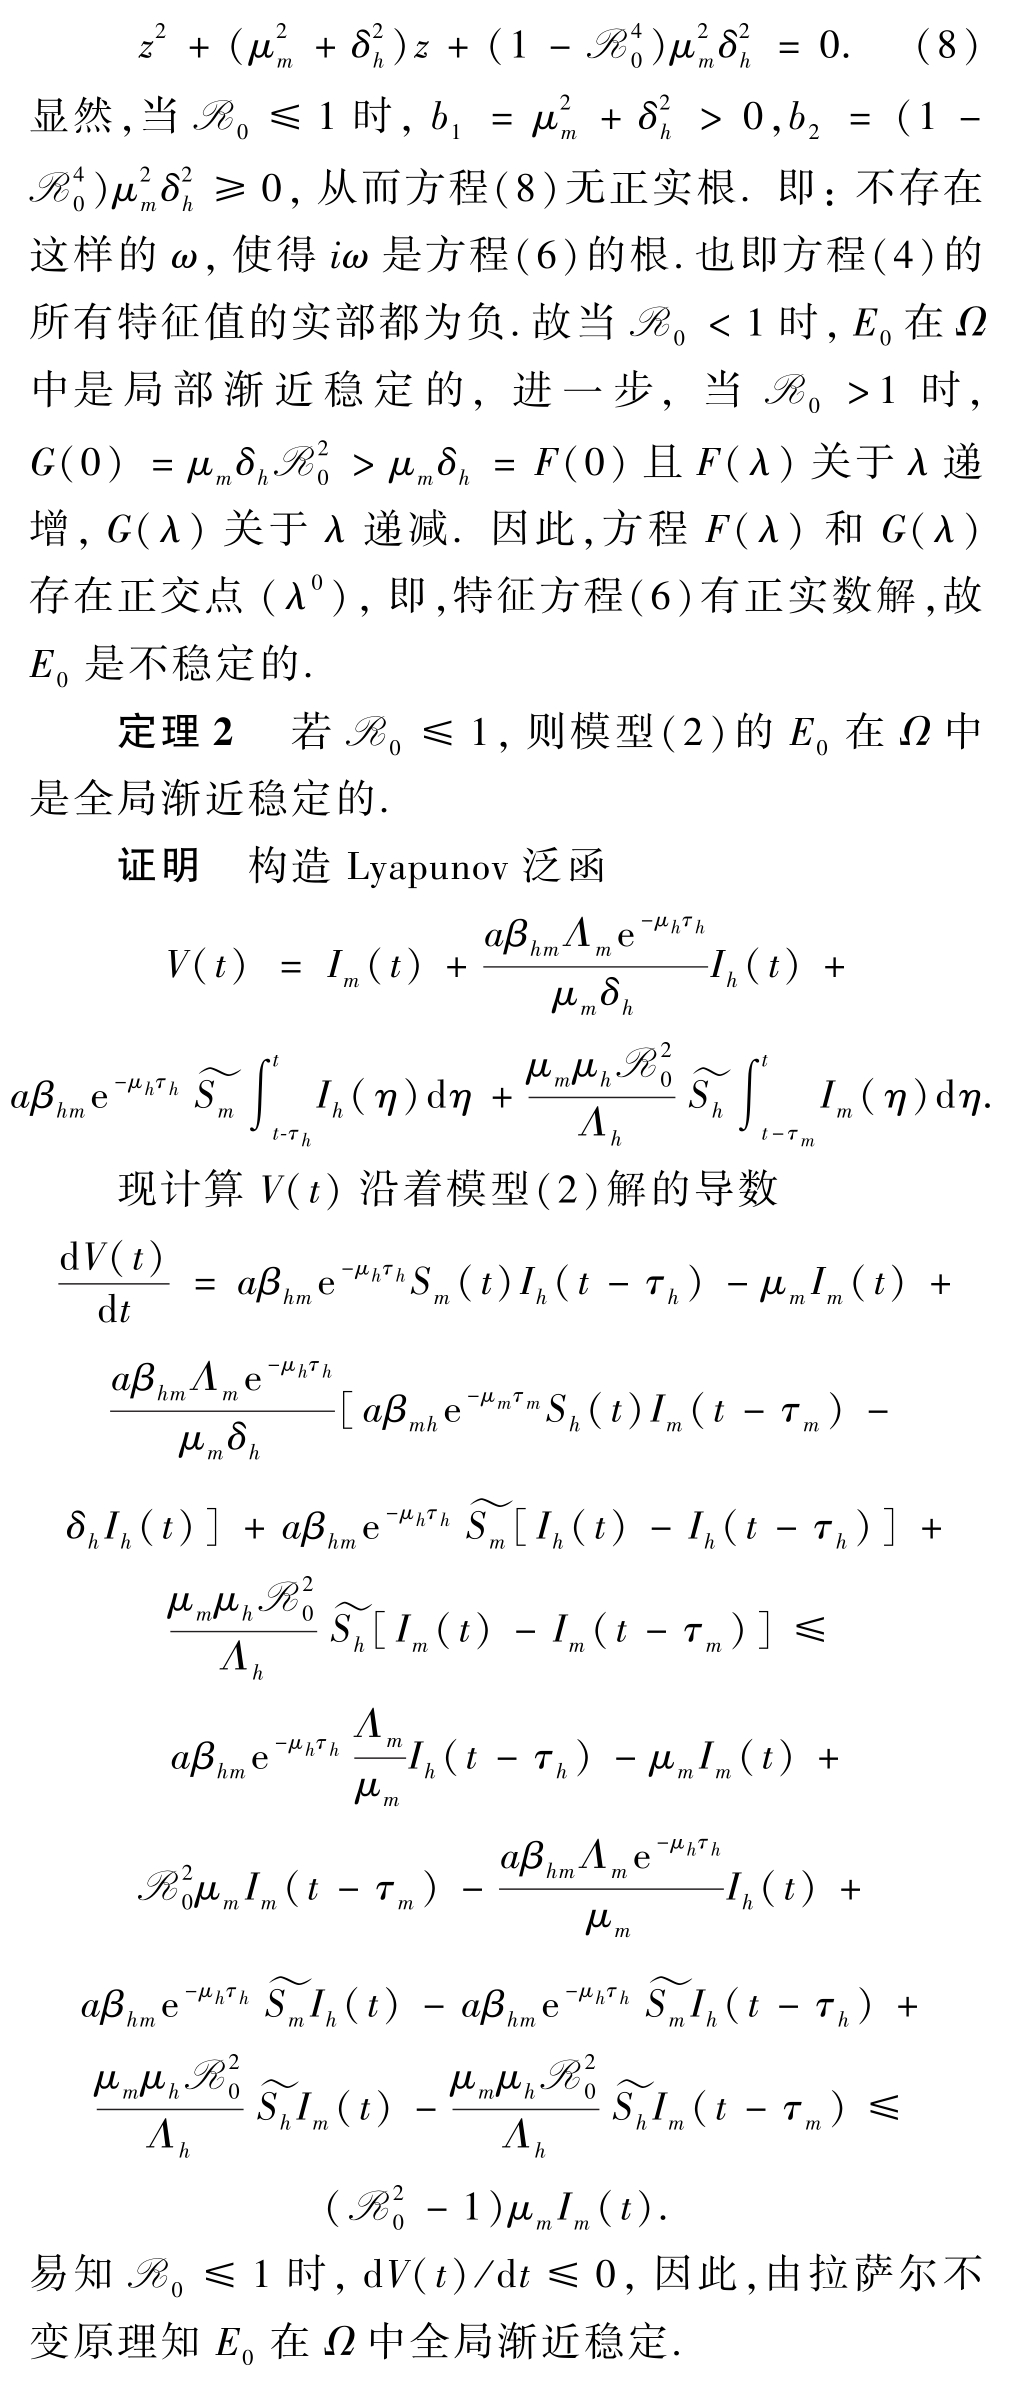
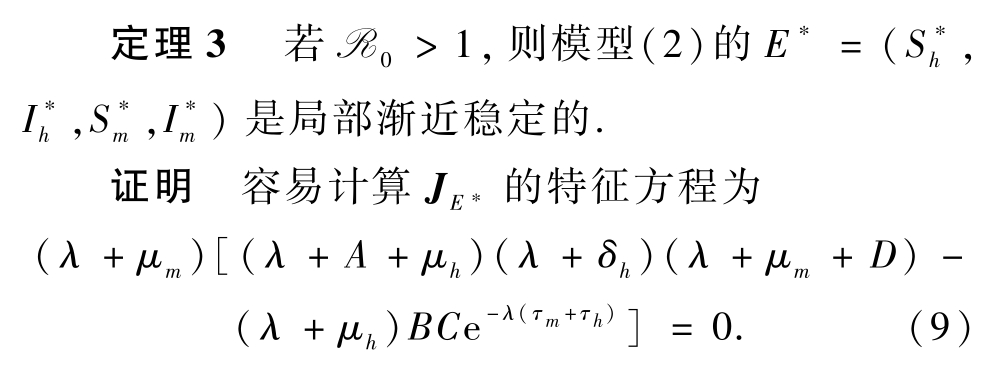
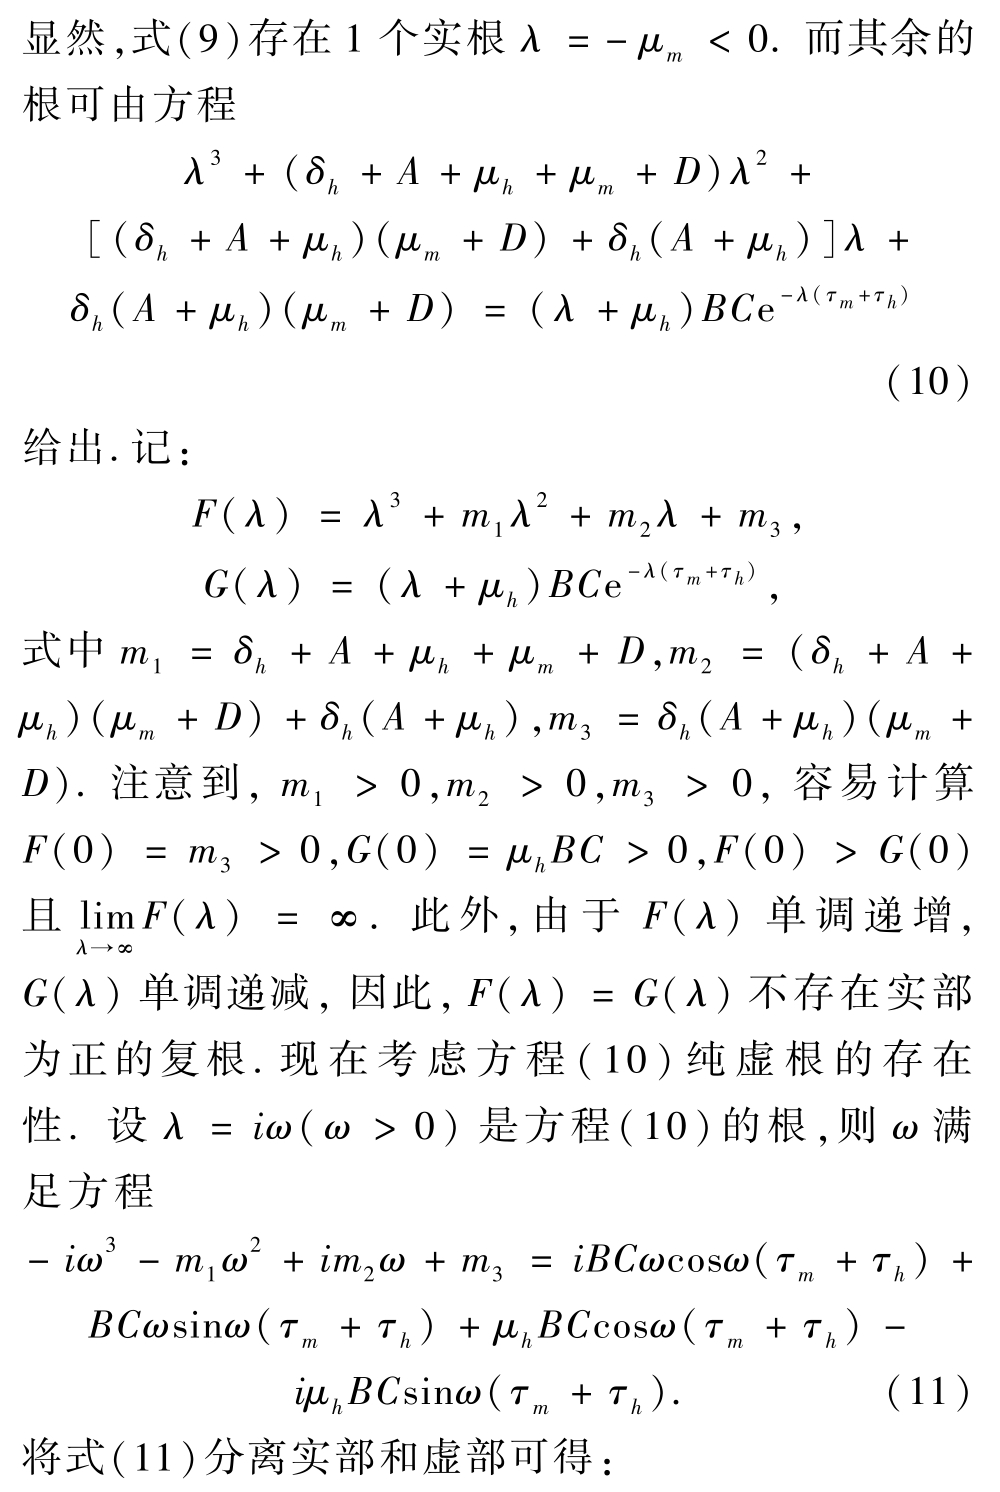
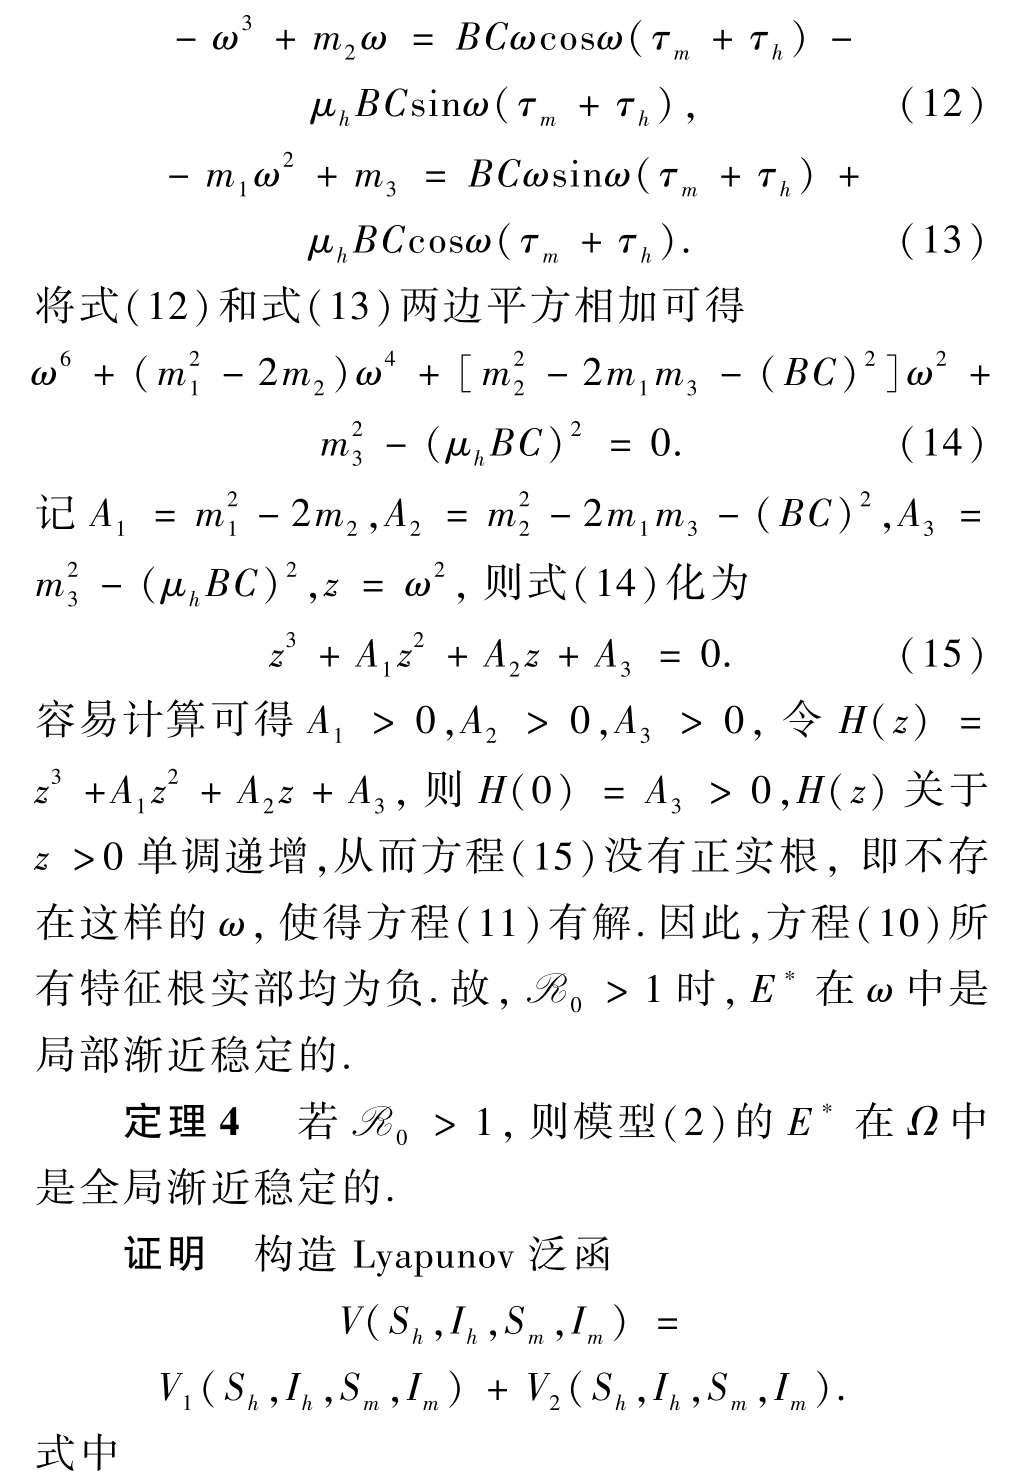
容易计算当R0≤1时,模型(2)存在唯一的无病平衡点E0=(Λh/μh,0,Λm/μm,0).当R0>1时,除E0外,模型(2)存在唯一的地方病平衡点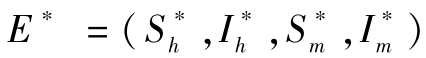 ,其中
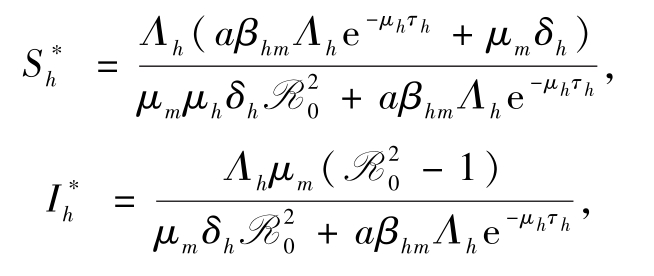
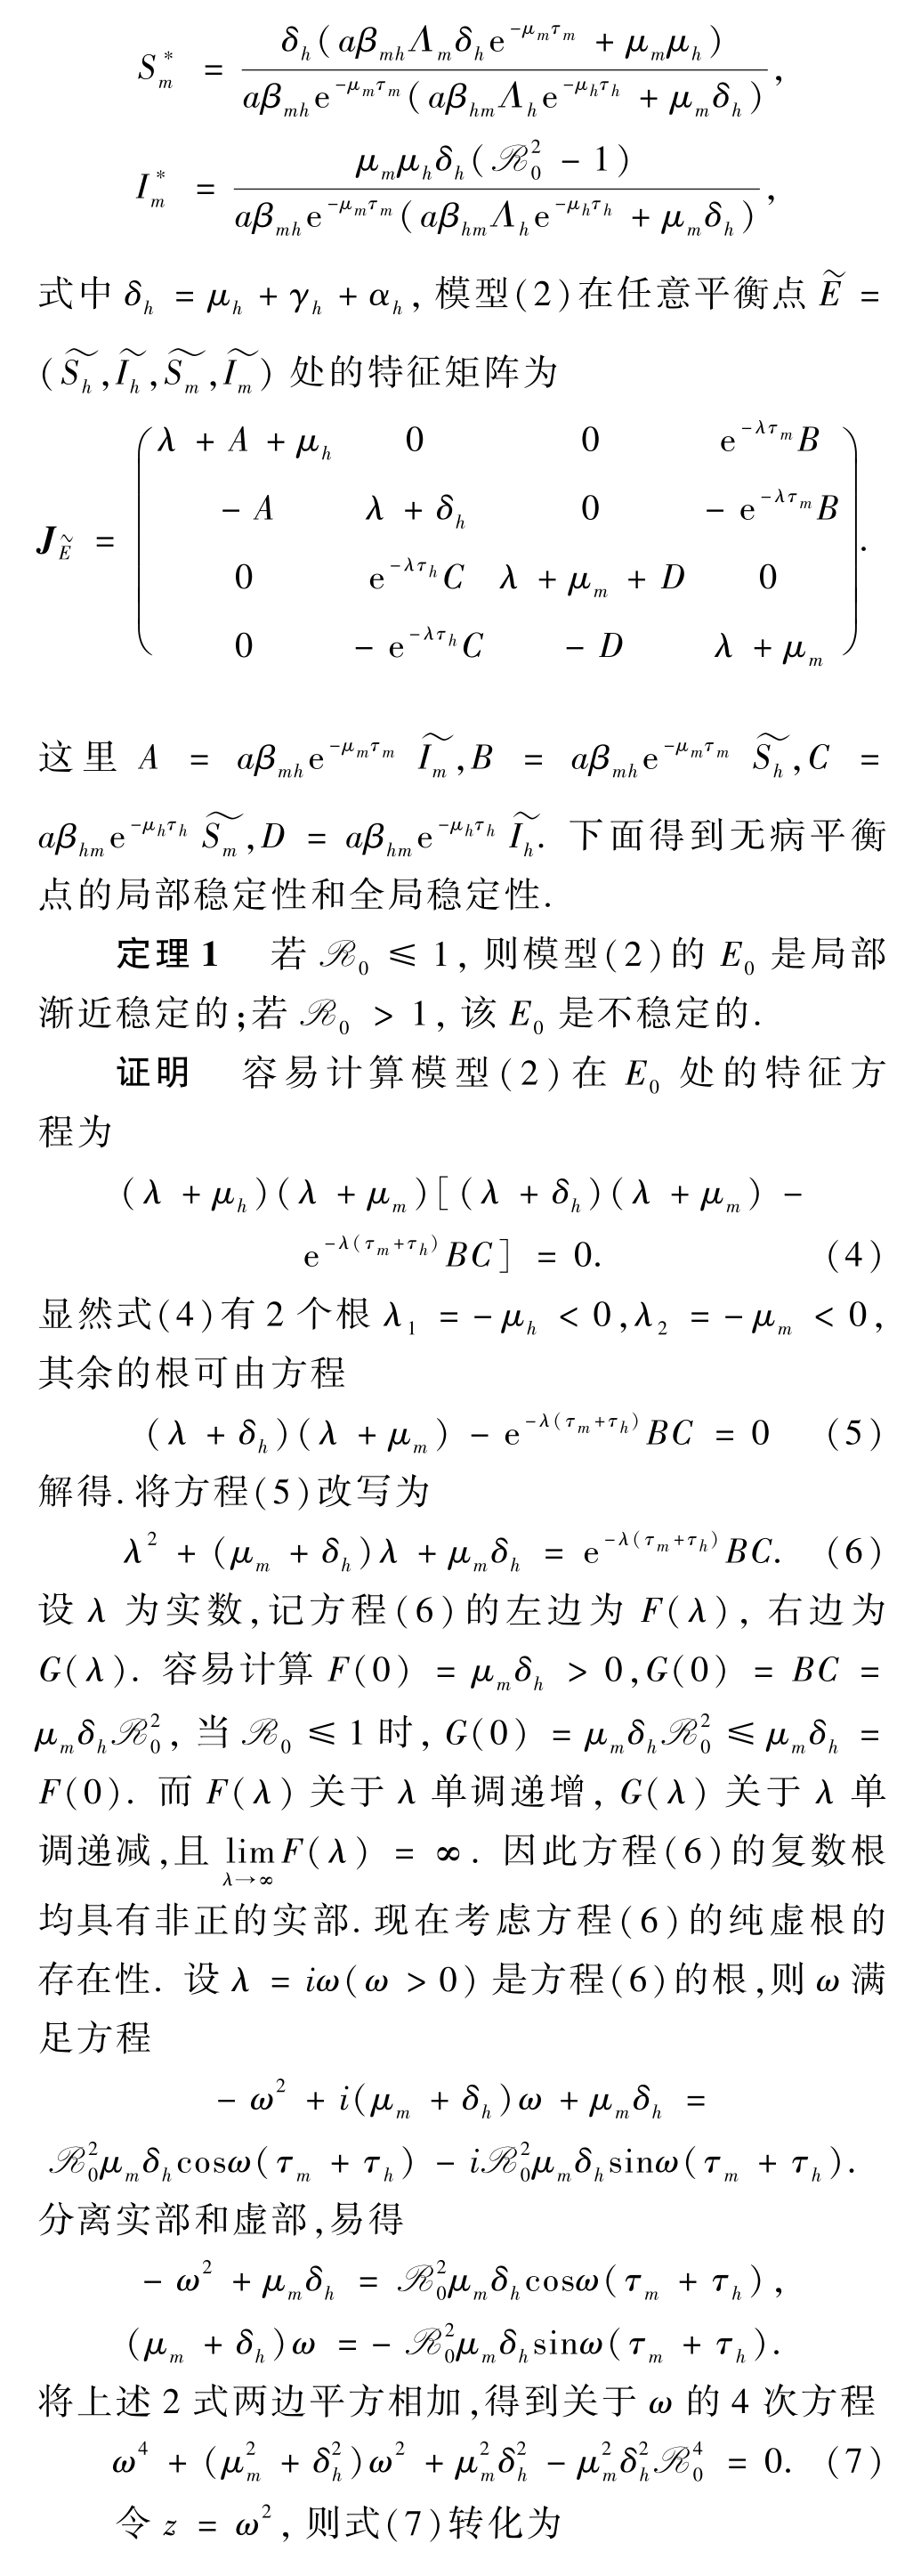
3 地方病平衡点的稳定性
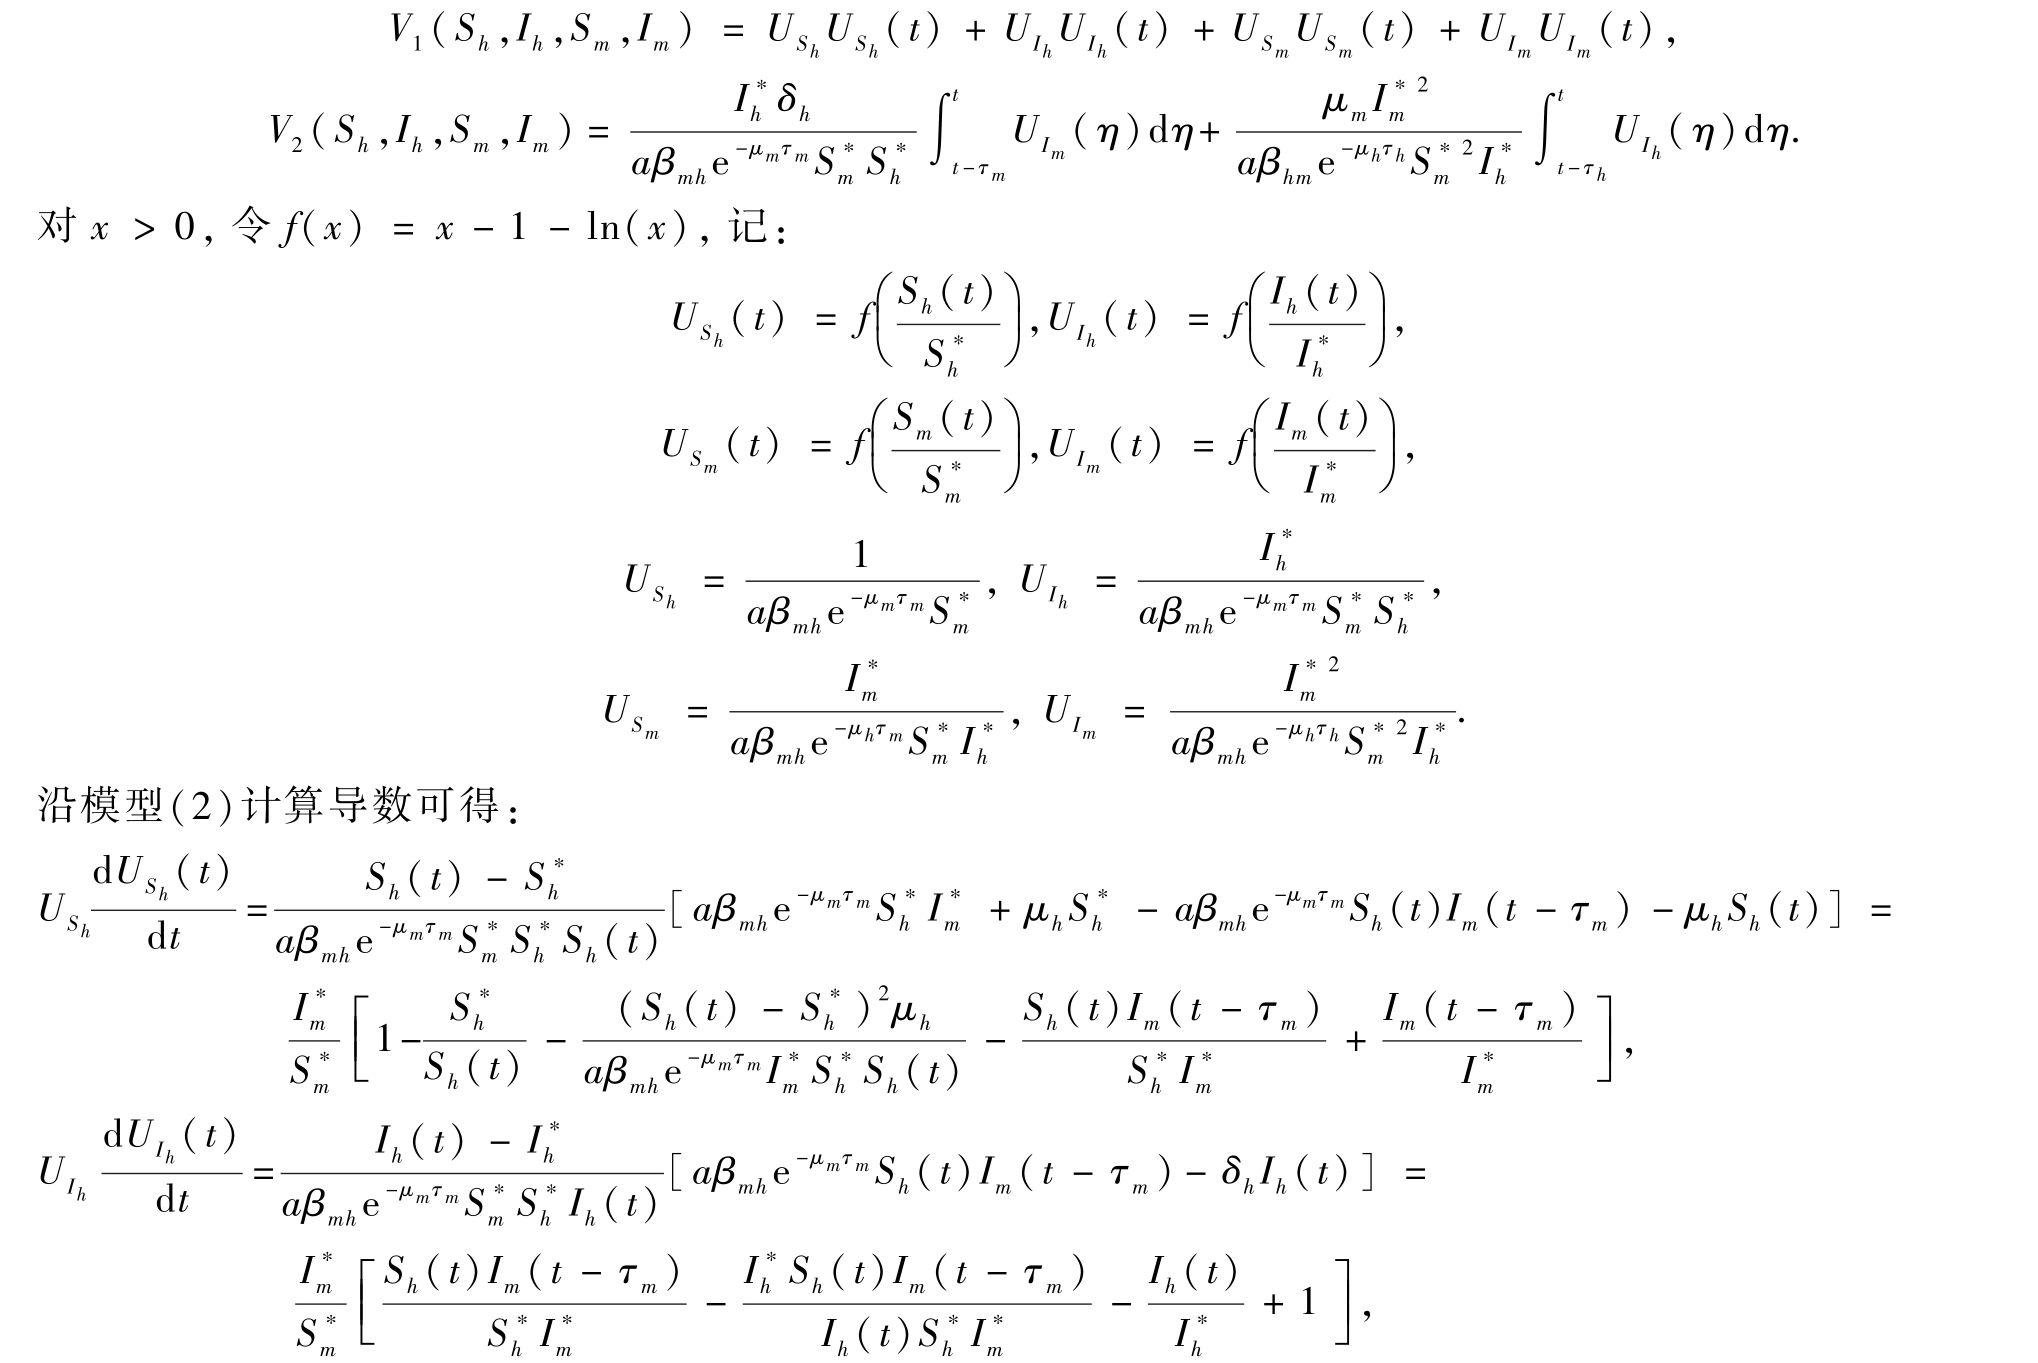
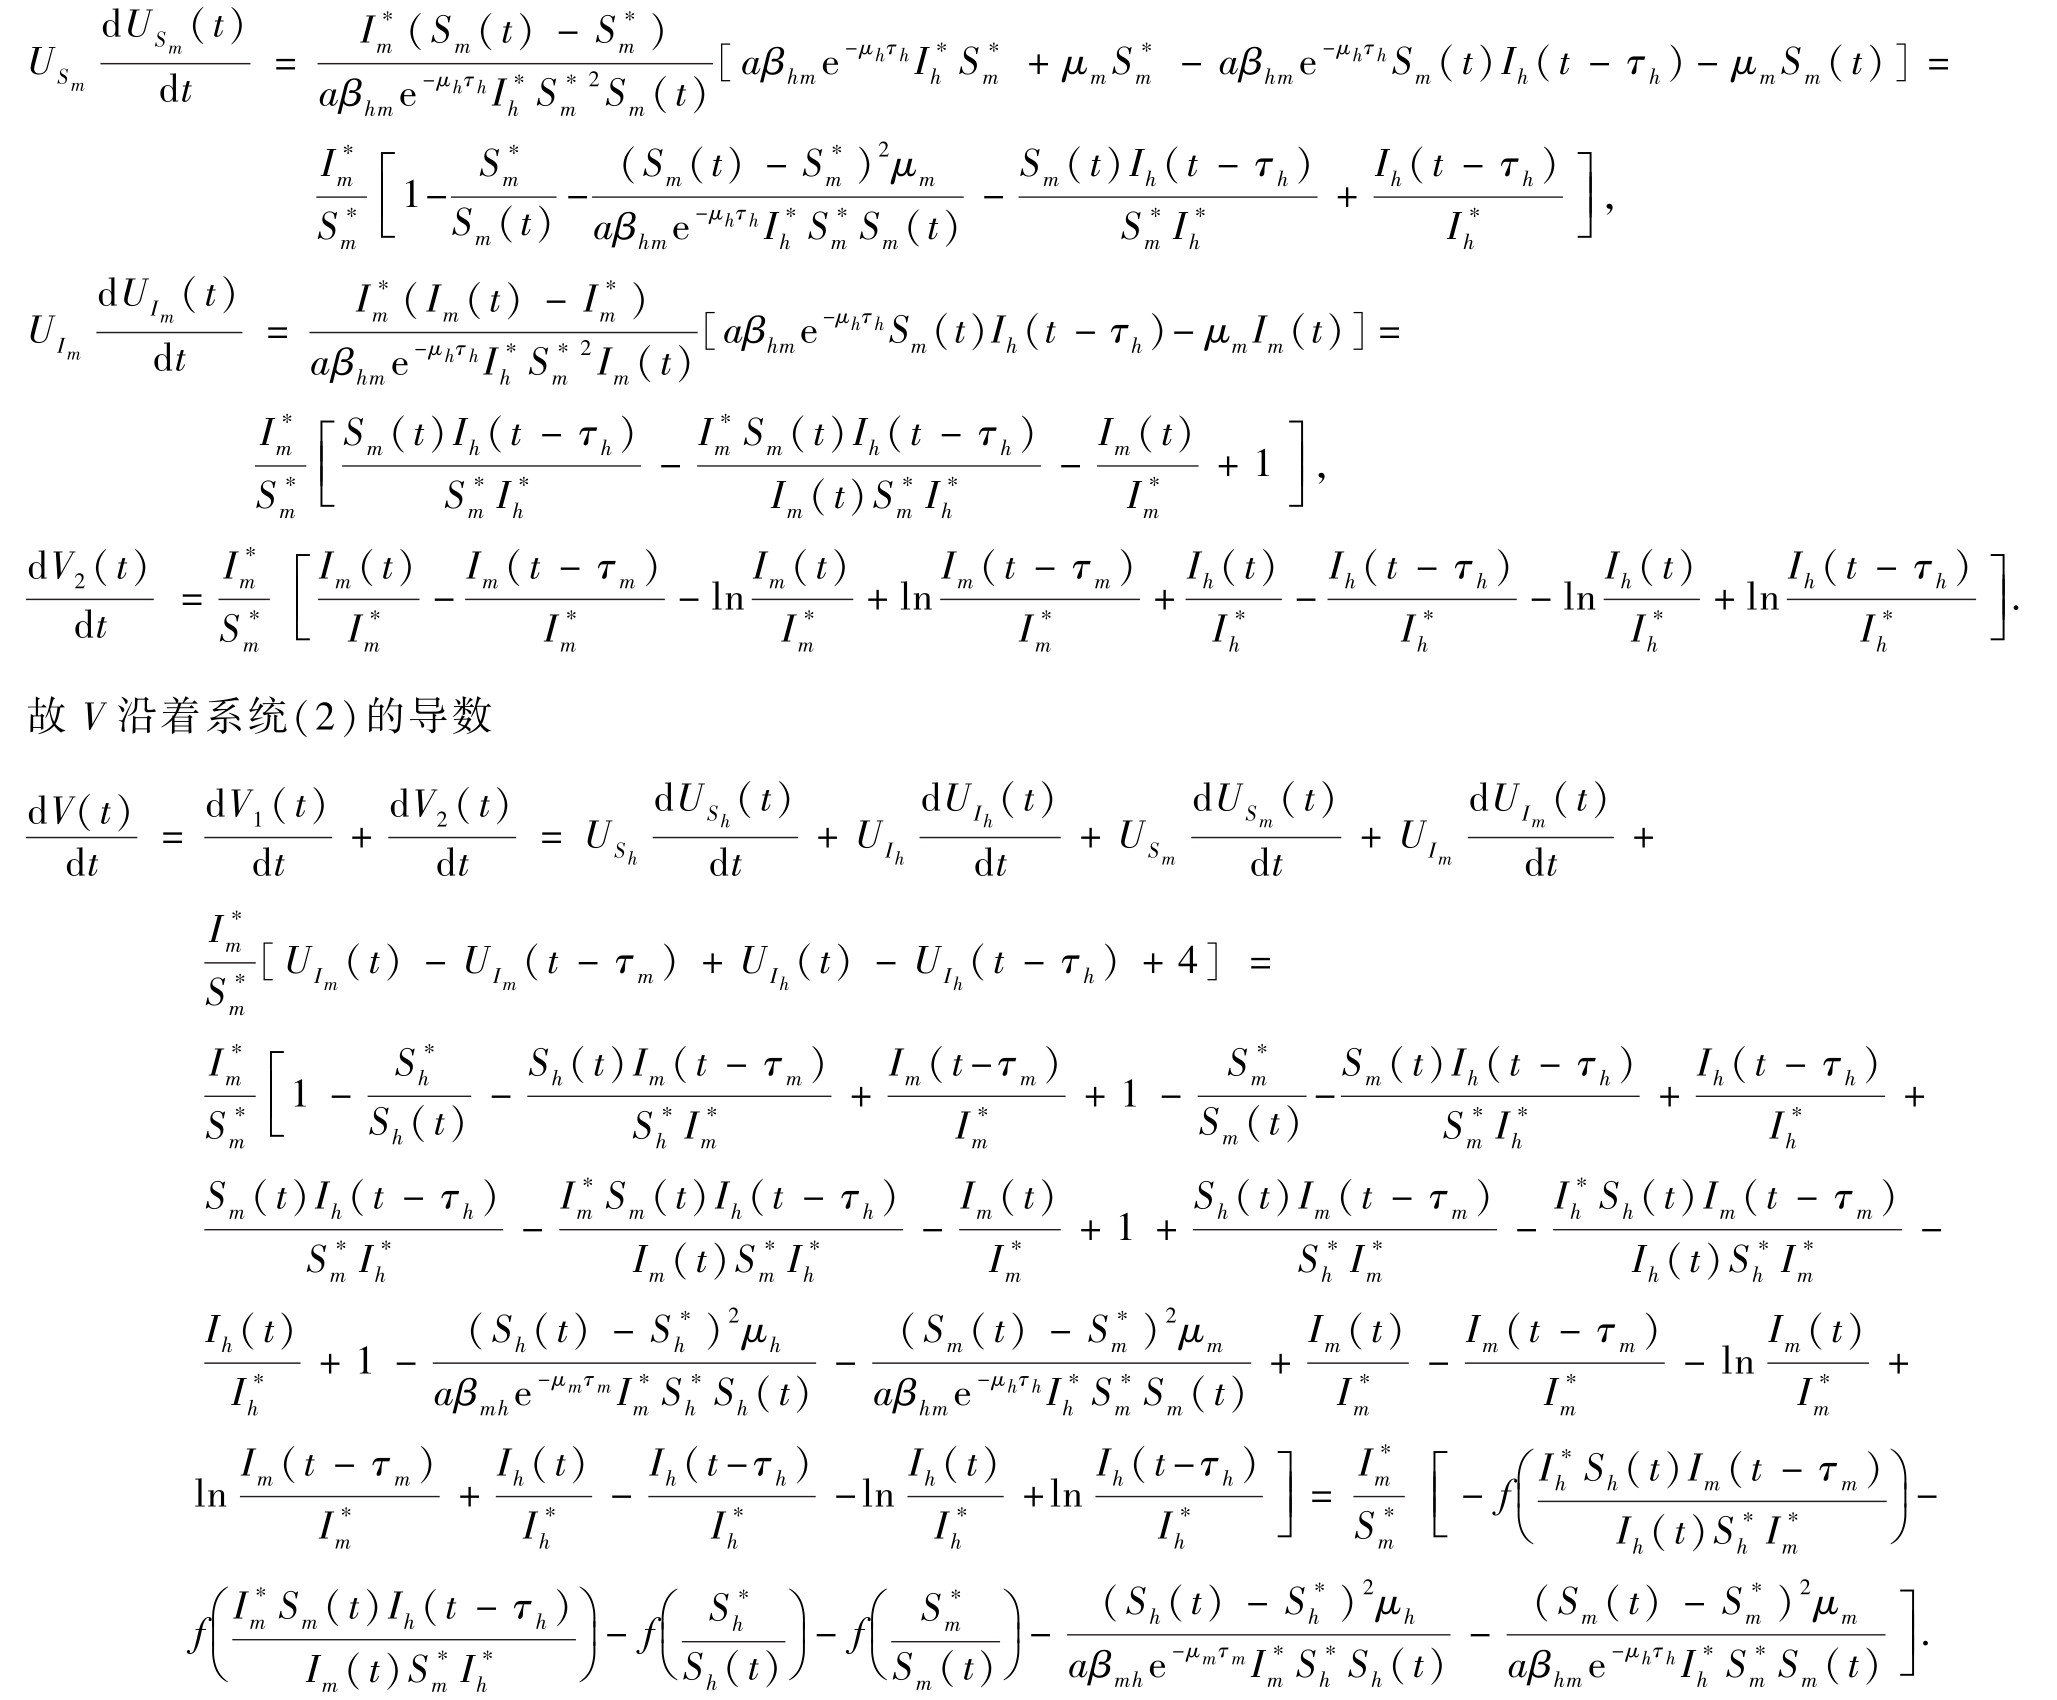
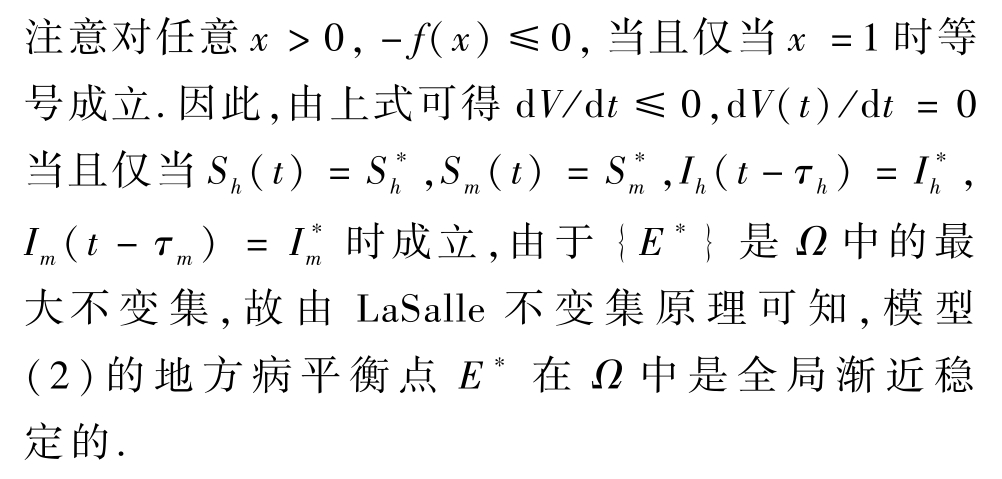
4 敏感性分析
本小节将分析R0关于模型参数的敏感性.若变量是1个关于模型参数的可微函数,那么敏感指数就可用偏导数来定义.
定义1[13] 变量u的规范化前向敏感指数,依赖其关于参数p的微分.可定义为
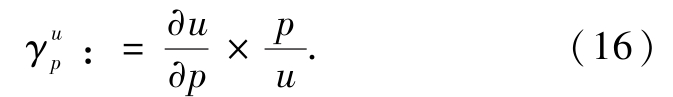
依照文献中模型参数的取值范围[14],选取模型(2)的参数,其取值分别为a=0.164,βmh=βhm=0.375,μh=0.000 4,μm=0.09,γh=0.143,Λh=0.001,Λm=6,αh=0.000 35,τm=8,τh=12.R0关于模型参数a、βmh、βhm、μm、τm、τh的敏感指数分别为1、0.5、0.5、-1、-0.36、-0.002 4.
R0关于a和μm最敏感,a每减少1%,R0减少0.5%,μm每增加1%,R0减少1%;而R0关于βmh和βhm的敏感度相应地可表现为βmh和βhm每减少1%,R0分别减少0.5%;同理可知R0关于τm和τh的敏感度可表现为τm每增加1%,R0减少0.36%,τh每增加1%,R0减少0.002 4%.由此,不难得出消除登革热传播最有效的方法仍是控制媒介的数量,同时也应加强人群的自我防护意识,以降低被蚊虫叮咬的水平.此外,敏感性分析也表明忽略病毒在人和蚊虫体内的潜伏期会高估登革热爆发的风险,对有限的医疗资源造成不必要的浪费.
[1] US Department of Health&Human Service.Centers for disease control and prevention[EB/OL].(2018-08-01)[2018-08-01].http://www.cdc.gov/dengue/.
[2] LAI S,HUANG Z,ANDERS K L,et al.The changing epidemiology of dengue in China,1990-2014:a descriptive analysis of 25 years of nationwide surveillance data[J].Biomedical Chromatography Medicine,2015,13(1):1-12.
[3] RODRIGUES H S,TORRES D F,MONTEIRO M T.Vaccination models and optimal control strategies to dengue[J].Mathematical Biosciences,2014,247(1):1-12.
[4] HU K,THOENS C,BIANCO S,et al.The effect of antibody-dependent enhancement,cross immunity,and vector population on the dynamics of dengue fever[J].Journal of Theoretical Biology,2013,319(5):62-74.
[5] GUO S M,LI X Z,GHOSH M.Analysis of a dengue disease model with nonlinear incidence[J].Discrete Dynamics in Nature and Society,2013(2013):1-10.
[6] ZHANG X,TANG S,ZHU H A,et al.Modeling the effects of augmentation strategies on the control of dengue fever with an impulsive differential equation[J].Bulletin of Mathematical Biology,2016,78(10):1968-2010.
[7] TANG B,XIAO Y,TANG S,et al.Modelling weekly vector control against dengue in the Guangdong province of China[J].Journal of Theoretical Biology,2016,410(2016):65-76.
[8] GARBA S M,GUMEL A B,ABU BAKAR M R.Backward bifurcations in dengue transmission dynamics[J].Mathematical Biosciences,2008,215(1):11-25.
[9] AMAKU M,COUTINHO F A,RAIMUNDO S M.A comparative analysis of the relative efficacy of vector-control strategies against dengue fever[J].Bulletin of Mathematical Biology,2014,76(3):697-717.
[10] WANG Z,ZHAO X.Global dynamics of a time-delayed dengue transmission model[J].Canadian Applied Mathematics Quarterly,2012,20(1):89-113.
[11] RUAN S,XIAO D,BEIER J C.On the delayed Ross-Macdonald model for malaria transmission[J].Bulletin of Mathematical Biology,2008,70(4):1098-1114.
[12] VAN D P,WATMOUGH J.Reproduction numbers and sub-threshold endemic equilibria for compartmental models of disease transmission[J].Mathematical Biosciences,2002,180(1):29-48.
[13] CHITNIS N,HYMAN J M,CUSHING J M.Determining important parameters in the spread of malaria through the sensitivity analysis of a mathematical model[J].Bulletin of Mathematical Biology,2008,70(5):1272-1296.
[14] CHITNIS N,HYMAN J M,CUSHING J M.Bifurcation analysis of a mathematical model for malaria transmission[J].Siam Journal on Applied Mathematics,2006,67(1):1107-1133.