
Identification and biological characteristics of the pathogen causing samara brown spot disease on Acer truncatum Bunge in Chuzhou
-
摘要:
为了明确安徽省滁州市元宝槭(
Acer truncatum Bunge)油用栽培试验基地发生的翅果褐斑病的病原,本研究通过组织分离法获得病原菌菌株,结合形态学特征、多基因系统发育分析与致病性测定进行种类鉴定,并系统研究了病原菌的生物学特性。结果表明引起滁州元宝槭翅果褐斑病的病原为链格孢(Alternaria alternata )和眼生空泡茎点霉(Vacuiphoma oculihominis ),二者在适宜温度下(25~30 ℃)单独或复合侵染均能致病,且复合侵染表现出明显的协同增效作用,病斑扩展更快、更严重。生物学特性研究表明:2种病原菌均在25 ℃、pH=7.0、黑暗条件下生长最佳;链格孢最适碳源、氮源分别为蔗糖和蛋白胨,而眼生空泡茎点霉对应为麦芽糖和牛肉膏;二者在胡萝卜琼脂培养基上生长最为旺盛。本研究首次报道了眼生空泡茎点霉侵染元宝槭,并明确了2种病原的协同致病效应及关键生物学特性,为该病害的田间监测与综合防控提供了理论依据。Abstract:To identify the pathogen causing samara brown spot in an oil cultivation trial base of
Acer truncatum Bunge in Chuzhou City, Anhui Province, this study isolated pathogenic strains through tissue separation. Species identification was conducted by integrating morphological characteristics, multi-gene phylogenetic analysis and pathogenicity tests. The biological characteristics of the pathogens were systematically investigated. The results showed that the pathogens responsible for samara brown spot ofAcer truncatum in Chuzhou wereAlternaria alternata andVacuiphoma oculihominis . Both pathogens could cause disease through single or co-infection under suitable temperatures (25-30 ℃), with co-infection exhibiting a significant synergistic effect, leading to faster and more severe lesion expansion. Studies on biological characteristics revealed that both pathogens grew optimally at 25 ℃, pH=7.0, and under dark conditions. The optimal carbon and nitrogen sources forAlternaria alternata were sucrose and peptone, respectively, while forVacuiphoma oculihominis , they were maltose and beef extract. Both pathogens thrived most vigorously on carrot agar medium. This study reports for the first timeVacuiphoma oculihominis infectingAcer truncatum and clarifies the synergistic pathogenic effects and key biological characteristics of the two pathogens, providing a theoretical foundation for field monitoring and integrated management of this disease. -
0. 引言
元宝槭(Acer truncatum Bunge)又名元宝枫、华北五角槭、五角枫,高8~10 m,是无患子科(Sapidaceae Juss.)槭属(Acer)的落叶乔木,为我国特有树种,多生长在海拔为400~1 000 m的疏林中,在我国分布范围较广,在华北、华东以及华中等地区均有分布。元宝槭不仅树姿优美、叶形秀丽,是优良的观赏树种,其种子还可榨油,具有较高的经济价值[1]。元宝槭翅果含有丰富的油脂和蛋白质等营养成分,具有一定的开发利用潜力,在食品、医药等领域展现出广阔的应用前景[2-4]。
元宝槭生长过程中,经常遭受各种病原的危害,常见有褐斑病、白粉病、溃疡病和锈病等,而病症主要集中发生在叶片和枝条,翅果的病害报道较少[5-7]。近年来,随着元宝槭种植范围向南方扩展,贵州等省份受当地天气与气候条件影响[8],翅果病害频发,导致其产量与品质下降,对相关产业的健康发展造成了不利影响。
近年来,安徽省滁州市林木种苗发展研究中心元宝槭油用栽培试验基地多次出现了种实褐化绝收的现象,初步推断是元宝槭翅果褐斑病造成的。元宝槭翅果褐斑病通常在6—7月进入发病初期,此时翅果端部褪绿并出现褐色斑点;约15~20 d后,病斑逐渐扩展为褐色斑块并蔓延至翅果基部,最终导致翅果枯死、种子干瘪失去活力。进一步调查表明,该病害主要发生在夏季,发病率约为40.0%,对元宝槭的产量和品质造成了严重威胁;10月后病原进入越冬准备期,病果逐渐脱落,成为次年春季的初侵染源。
因此,为明确安徽省滁州市元宝槭油用栽培试验基地翅果褐斑病的病原及其生物学特性,本研究将开展以下工作:分离纯化元宝槭翅果病害的病原菌,通过形态学观察与系统发育分析相结合的方法,明确其准确的分类地位和种类;系统研究病原菌的生物学特性,涵盖不同温度、光照条件、pH和培养基类型等因素对其生长的影响。
1. 材料方法
1.1 试剂和材料
75.0%酒精购自山东名德医疗科技有限公司;NaClO溶液购自山东科源生化有限公司;36.0%~38.0%HCl溶液购自成都金山化学试剂有限公司;96.0%NaOH固体、蔗糖、葡萄糖、甘油和(NH4)2SO4均购自天津市致远化学试剂有限公司;马铃薯葡萄糖琼脂培养基(potato dextrose agar,PDA)、燕麦琼脂培养基(oatmeal agar,OA)、山梨醇和半乳糖均购自阿勒山(广州)生物科技有限公司;2 × MasterMix和M5 Plant Genomic DNA Kit试剂盒均购自北京聚合美生物科技有限公司;聚合酶链式反应(polymerase chain reaction,PCR)扩增引物购自生工生物工程科技(北京)有限公司;察氏培养基(czapek dox agar,Czapek)和沙氏葡萄糖琼脂培养基(sabouraud dextrose agar,SDA)均购自山东拓普生物工程有限公司;马铃薯蔗糖琼脂培养基(potato sucrose agar,PSA)、马丁琼脂培养基(martin agar,Martin)购自青岛高科技工业园海博生物技术有限公司;麦芽糖购自天津市鼎盛鑫化工有限公司;甘露醇购自国药集团化学试剂有限公司;NaNO3购自安徽金粤冠新材料科技有限公司;NH4NO3购自杭州盛利化工有限公司;牛肉膏、蛋白胨和酵母膏均购自北京奥博星生物技术有限责任公司。实验用水包括无菌水和灭菌水(sterile ddH2O),无菌水通过灭菌器灭菌后所得,灭菌水购自北京聚合美生物科技有限公司。
马铃薯胡萝卜琼脂培养基(potato carrot agar,PCA)为实验室配置,含200 g土豆、200 g胡萝卜、20 g琼脂和1 L蒸馏水;胡萝卜琼脂培养基(carrot agar,CA)为实验室配置,含200 g去皮胡萝卜、20 g琼脂和1 L蒸馏水。
1.2 仪器
使用日本尼康公司生产的SMZ1000型连续变倍体视显微镜观察标本;使用日本奥林巴斯公司生产的BX51型正置显微镜和DP71型数码显微镜观察和拍照微观结构;使用雅马拓科技贸易(上海)有限公司生产的立式压力蒸汽灭菌器对实验耗材灭菌处理;使用宁波江南仪器厂生产的GXZ型智能光照培养箱控制环境,研究病原菌的培养特性与生物学特征;使用美国伯乐生命科学研究公司生产的S1000型PCR仪扩增序列。
1.3 标本采集
标本采集自安徽省滁州市林木种苗发展研究中心元宝槭油用栽培试验基地。分别于2024年1、6和11月与2025年3月调查,并采集标本,共4次,共采集标本46份。
1.4 病原菌分离培养和纯化
从病健交界处切取5 mm×5 mm组织块,依次置于75.0%酒精20 s、10.0% NaClO溶液150 s消毒;再置于无菌水中漂洗3次,置于滤纸晾干;之后将组织块插入PDA平板中并标记,25 ℃培养3~5 d;从长出的菌落边缘切取大小为5 mm × 5 mm的菌丝块,分别转移至新PDA平板并标记,25 ℃继续培养7 d。
1.5 病原菌形态学分析
采用显微镜观察标本,并记录与拍照其翅果病斑的形态特征。使用游标卡尺测量培养7 d后菌株,记录菌落的直径、颜色及质地等特征,每个菌株重复3次。不易产孢的菌株,采用燕麦琼脂松针培养基诱导产孢,镜检观察微观结构,各测量30组数据;易产孢的菌株,直接挑取PDA平板上的微观结构,镜检观察并测量相同指标。
1.6 DNA提取及序列扩增
参照试剂盒说明书步骤提取DNA,所获得DNA样品置于−20 ℃冰箱中保存备用。PCR的反应体系为25.0 μL,包含12.5 μL 2 × MasterMix、8.5 μL灭菌水、2.0 μL 10 μmol/L引物,2.0 μL DNA模板。PCR产物送至生工生物工程科技(北京)有限公司纯化和测序。
1.6.1 链格孢属的菌株[9]
(1)使用Alt-for/Alt-rev引物[10]扩增Alt a1区域。PCR条件为:首先初始变性94 ℃ 5 min;然后40个循环,94 ℃变性30 s,55 ℃退火30 s,72 ℃延长60 s;最后72 ℃保持7 min。
(2)使用PG3/PG2b引物[11]扩增内切多聚半乳糖醛酸酶(endopolygalacturonase,endoPG)区域。PCR条件为:首先初始变性95 ℃ 1 min;然后35个循环,95 ℃变性30 s,62 ℃退火30 s,72 ℃延长30 s;最后72 ℃保持7 min。
(3)使用gpd1/gpd2引物[12]扩增甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)区域。PCR条件为:首先初始变性94 ℃ 5 min;然后40个循环,94 ℃变性30 s,55 ℃退火30 s,72 ℃延长60 s;最后72 ℃保持7 min。
(4)使用V9G/ITS4引物[13-14]扩增内转录间隔区(internal transcribed spacer,ITS)区域。PCR条件为:首先初始变性94 ℃ 5 min;然后35个循环,94 ℃变性30 s,48 ℃退火30 s,72 ℃延长90 s;最后72 ℃保持7 min。
(5)使用OPA10-2R/OPA10-2L引物[11]扩增OPA10-2区域。PCR条件为:首先初始变性95 ℃ 1 min;然后35个循环,95 ℃变性30 s,62 ℃退火30 s,72 ℃延长30 s;最后72 ℃保持7 min。
(6)使用RPB2-5F2/fRPB2-7cR引物[15-16]扩增RNA聚合酶Ⅱ第二大亚基(RNA polymerase Ⅱ second largest subunit,RPB2)区域。PCR条件为:首先初始变性94 ℃ 5 min;然后5个循环,94 ℃变性45 s,60 ℃退火45 s,72 ℃延长2 min;再进行5个循环,94 ℃变性45 s,58 ℃退火45 s,72 ℃延长2 min;之后进行30个循环,94 ℃变性45 s,54 ℃退火45 s,72 ℃延长2 min;最后72 ℃保持7 min。
(7)使用EF1-728F/EF1-986R引物[17]扩增翻译延伸因子1-α(translation elongation factor 1-alpha,TEF1)区域。PCR条件为:首先初始变性94 ℃ 5 min;然后40个循环,94 ℃变性30 s,52 ℃退火30 s,72 ℃延长45 s;最后72 ℃保持7 min。
1.6.2 空泡茎点霉属的菌株[18]
(1)使用ITS5/ITS4引物[13-14]扩增ITS区域。PCR条件为:首先初始变性95 ℃ 5 min;然后35个循环,95 ℃变性30 s,48 ℃退火30 s,72 ℃延长80 s;最后72 ℃保持10 min。
(2)使用LR0R/LR5引物[19-20]扩增核糖体大亚基(large subunit,LSU)区域。PCR条件为:首先初始变性95 ℃ 5 min;然后35个循环,95 ℃变性45 s,48 ℃退火45 s,72 ℃延长2 min;最后72 ℃保持10 min。
(3)使用RPB2-5F2/RPB2-7cR引物[15-16]扩增RPB2区域。PCR条件为:首先初始变性94 ℃ 5 min;然后35个循环,95 ℃变性45 s,56 ℃退火80 s,72 ℃延长2 min;最后72 ℃保持10 min。
(4)使用Btub2Fd/Btub4Rd引物[21]扩增β-微管蛋白(beta-tubulin,TUB2)区域。PCR条件为:首先初始变性95 ℃ 5 min;然后35个循环,95 ℃变性30 s,52 ℃退火30 s,72 ℃延长80 s;最后72 ℃保持10 min。
1.7 系统发育树的构建
参考Woudenberg等[9]的相关序列,根据序列号从GenBank中下载链格孢属的序列(表 1);参考Hou等[18]的相关序列,根据序列号从GenBank中下载空泡茎点霉属的序列(表 2)。将下载序列及自测序列使用基于快速傅里叶变换的多序列比对方法(multiple alignment using fast Fourier transform,MAFFT)(https://mafft.cbrc.jp/alignment/server/)对齐,然后在Se-Al v.2.03a(Rambaut 2000)中校正,模糊区域不用于后续分析。基于多基因组合数据集,为确保结论可靠,采用最大似然法(maximum likelihood,ML)、最大简约法(maximum parsimony,MP)和贝叶斯推断法(Bayesian inference,BI)3种方式构建系统发育树,确保3种方法所得到的拓扑结果基本一致。
表 1 链格孢属系统发育分析所用序列信息Table 1 sequence information used for the phylogenetic analysis of Alternaria物种 国家 菌株号 寄主或分离来源 Alt a1 GAPDH endoPG OPA10-2 TEF1 RPB2 ITS 六出花链格孢Alternaria alstroemeriae 美国 CBS 118808 Alstroemeriasp. KP123845 KP124153 KP123993 KP124601 KP125071 KP124764 KP124296 澳大利亚 CBS 118809T Alstroemeriasp. MH084526 KP124154 KP123994 KP124602 KP125072 KP124765 KP124297 链格孢Alternaria alternata 美国 CBS 102.47 甜橙Citrus sinensis KP123855 KP124161 KP124002 KP124610 KP125080 KP124773 KP124304 — CBS 106.34 亚麻Linum usitatissimum KP123853 JQ646308 KP124000 KP124608 KP125078 KP124771 Y17071 日本 CBS 107.53 沙梨Pyrus pyrifolia KP123858 KP124162 KP124005 KP124613 KP125081 KP124774 KP124305 美国 CBS 154.31 美国省沽油Staphylea trifolia KP123851 KP124158 KP123998 KP124606 KP125076 KP124769 KP124301 美国 CBS 175.52 Juncus mertensianus KP123857 KC584151 KP124004 KP124612 KC584703 KC584445 KC584227 意大利 CBS 175.80 —— KP123866 JQ646324 KP124013 KP124620 KP125089 KP124781 KP124313 日本 CBS 595.93 沙梨 JQ646399 KP124175 KP124020 KP124627 KP125096 KP124788 KP124320 美国 CBS 603.78 空气 KP123865 KP124169 KP124012 KP124619 KP125088 KP124780 KP124312 德国 CBS 612.72 Senecio cineraria KP123861 KP124165 KP124008 KP124615 KP125084 KP124777 KP124308 美国 CBS 620.83 烟草Nicotiana tabacum KP123868 KP124171 KP124015 KP124622 KP125091 KP124783 KP124315 美国 CBS 795.72 Plantago aristida KP123862 KP124166 KP124009 KP124616 KP125085 KP124778 KP124309 德国 CBS 826.68 Lolium sp. KP123860 KP124164 KP124007 — KP125083 KP124776 KP124307 印度 CBS 916.96T 落花生Arachis hypogaea AY563301 AY278808 JQ811978 KP124632 KC584634 KC584375 AF347031 美国 CBS 102600CBS 柑橘Citrus reticulata KP123880 KP124186 KP124033 KP124640 KP125107 KP124799 KP124331 加拿大 CBS 109455 人体手臂组织 KP123883 KP124189 KP124036 KP124644 KP125111 KP124803 KP124335 德国 CBS 109803 人体皮肤 KP123884 KP124190 KP124037 KP124645 KP125112 KP124804 KP124336 — CBS 112251 — KP123887 KP124193 KP124040 KP124649 KP125115 KP124807 KP124339 — CBS 112252 — KP123888 KP124194 KP124041 KP124650 KP125116 KP124808 KP124340 南非 CBS 113025 Citrus clementina KP123893 KP124199 KP124046 KP124655 KP125121 KP124813 KP124345 中国 CBS 115152 蔓九节Psychotria serpens KP123896 KP124202 KP124049 KP124658 KP125124 KP124816 KP124348 美国 CBS 118811 野甘蓝Brassica oleracea KP123904 KP124210 KP124057 KP124667 KP125132 KP124824 KP124356 美国 CBS 118812 野胡萝卜Daucus carota KP123905 KC584112 KP124058 KP124668 KC584652 KC584393 KC584193 美国 CBS 118818 Vaccinium sp. KP123908 KP124213 KP124061 KP124671 KP125135 KP124827 KP124359 中国 CBS 121348 桔梗Platycodon grandiflorus KP123915 KP124219 KP124070 KP124679 KP125144 KP124836 KP124367 中国 CBS 121455 构树Broussonetia papyrifera KP123916 KP124220 KP124072 KP124681 KP125146 KP124838 KP124368 中国 CBS 121456 地榆Sanguisorba officinalis KP123917 KP124221 KP124073 KP124682 KP125147 KP124839 KP124369 美国 CBS 126908 土壤 KP123926 KP124230 KP124082 KP124691 KP125156 KP124848 KP124378 中国 YZU 171499 鸢尾Iris tectorum OP293708 OP352295 OP293719 OP352271 OP374448 OP352283 OP341534 中国 YZU 171916 新疆梨Pyrus sinkiangensis MK391585 MK391582 MK415955 MK391584 MK415954 MK391583 MK391581 中国 CNUCC2 270A-1-1 元宝槭Acer truncatum 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-1-2 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-4-2 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-4-3 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-4-5 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-5-2 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-5-3 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-5-4 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 Alternaria betaekenyensis 肯尼亚 CBS 118810T 蒼茇菜Beta vulgaris var.cicla KP123966 KP124270 KP124123 KP124733 KP125197 KP124888 KP124419 巴斯基链格孢Alternaria burnsii 印度 CBS 107.38T 孜然芹Cuminum cyminum KP123967 JQ646305 KP124124 KP124734 KP125198 KP124889 KP124420 — CBS108.27 千日红Gomphrena globosa KP123850 KC584162 KP123997 KP124605 KC584727 KC584468 KC584236 Alternaria eichhorniae 印度尼西亚 CBS119778 Eichhornia crassipes —— KP124277 KP124131 KP124741 KP125205 KP124896 KP124426 梨黑斑链格孢Alternaria gaisen 日本 CBS118488 沙梨 KP123975 KP124278 KP124132 KP124743 KP125206 KP124897 KP124427 日本 CBS632.93 沙梨 KP123974 KC584116 AY295033 KP124742 KC584658 KC584399 KC584197 棉链格孢Alternaria gossypina 津巴布韦 CBS 104.32T Gossypium sp. JQ646395 JQ646312 KP124135 KP124746 KP125209 KP124900 KP124430 印度尼西亚 CBS107.36 土壤 JQ646393 JQ646310 KP124136 KP124747 KP125210 KP124901 KP124431 Alternaria iridaustralis 澳大利亚 CBS 118486T Iris sp. KP123981 KP124284 KP124140 KP124751 KP125214 KP124905 KP124435 澳大利亚 CBS118487 Iris sp. KP123982 KP124285 KP124141 KP124752 KP125215 KP124906 KP124436 鸢尾生链格孢Alternaria iridicola 中国 YZU161051 鸢尾 OP293713 OP352302 OP293725 OP352278 OP374455 OP352290 OP341633 中国 YZU161119 鸢尾 OP293712 OP352301 OP293724 OP352277 OP374454 OP352289 OP341632 Alternaria jacinthicola 马里 CBS 133751T Eichhornia crassipes KP123984 KP124287 KP124143 KP124754 KP125217 KP124908 KP124438 毛里求斯 CBS878.95 落花生 KP123983 KP124286 KP124142 KP124753 KP125216 KP124907 KP124437 烟草赤星病菌Alternaria longipes — CBS113.35 烟草 KP123986 KP124289 KP124145 KP124756 KP125219 KP124910 KP124440 美国 CBS539.94 烟草 KP123987 KP124290 KP124146 KP124757 KP125220 KP124911 KP124441 美国 CBS540.94 烟草 AY563304 AY278811 KP124147 KP124758 KC584667 KC584409 AY278835 Alternaria setosa 中国 YZU191076 蝴蝶花Iris japonica OP293716 OP352305 OP293728 OP352279 OP374458 OP352293 OP341739 中国 YZU 191101T 蝴蝶花 OP293717 OP352306 OP293729 OP352280 OP374459 OP352294 OP341770 Alternaria tectorum 中国 YZU 161050T 鸢尾 OP293714 OP352303 OP293726 OP352281 OP374456 OP352291 OP341728 中国 YZU161052 鸢尾 OP293715 OP352304 OP293727 OP352282 OP374457 OP352292 OP341817 Alternaria tomato — CBS103.30 番茄Solanum lycopersicum KP123991 KP124294 KP124151 KP124762 KP125224 KP124915 KP124445 — CBS114.35 番茄 KP123992 KP124295 KP124152 KP124763 KP125225 KP124916 KP124446 注:—表示无数据,信息或序列缺失;T为模式菌株;GAPDH为甘油醛-3-磷酸脱氢酶;endoPG为内切多聚半乳糖醛酸酶;TEF1为翻译延伸因子1-α;RPB2为核糖核酸(RNA)聚合酶Ⅱ第二大亚基;ITS为内转录间隔区。 表 2 空泡茎点霉属系统发育分析所用序列信息Table 2 sequence information used for the phylogenetic analysis of Vacuiphoma物种 国家 菌株号 寄主 ITS LSU RPB2 TUB2 Vacuiphoma astragalicola 伊朗 IRAN4859CT Astragalus sarcocolla OR286123 — OR286202 OR286204 Vacuiphoma bulgarica 保加利亚 CBS 124515 东方圣仙草Trachystemon orientalis MN973057 MN973446 MN983696 MN984069 保加利亚 CBS357.84T 紫草科Boraginaceae GU237837 GU238050 LT623256 GU237589 Vacuiphoma ferulae 意大利 CBS353.71T Ferula communis MN973552 MN943759 MT018196 MT005655 Vacuiphoma laurina 土耳其 CBS119636T 月桂Laurus nobilis MN973551 MN943758 MT018195 MT005654 眼生空泡茎点霉Vacuiphoma oculihominis 美国 FMR13801T 人眼临床样本 LT592954 LN907451 LT593093 LT593023 中国 CNUCC 2270 B-2-3 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-1 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-2 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-3 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-4 元宝槭 本研究 本研究 本研究 本研究 Leptosphaerulina saccharicola 泰国 ICMP19875T 甘蔗Saccharum officinarum KF670717 KF670716 KF670714 — Nothophoma infossa 阿根廷 CBS123395T 美国红梣Fraxinus pennsylvanica FJ427025 GU238089 KT389659 FJ427135 注:LSU为核糖体大亚基;TUB2为β-微管蛋白。 使用IQ-TREE 2.2.0软件分析ML[22],在IQ-TREE中使用快速引导分析(rapid bootstrap analysis),将自助法重复样本值(bootstrap replicates)设置为1 000,获得的自举检验值以ML Bootstrap(MLB)表示。
使用PAUP*4.0b10软件分析MP[23],maxtrees设置为1 000,random sequence additions设置为1 000,通过1 000个bootstrap replicates评估分支稳定性,每个replicates有10个分类群随机逐步加入。对生成的指数统计了树长(tree length,TL)、一致性指数(consistency index,CI)、保留指数(retention index,RI)、致性指数(rescaled consistency index,RC)和相似性指数(homoplasy index,HI)。分析各个节点的置信度得到自举检验值(bootstrap,BP)。
使用MrModeltest v.2.3[24]和MrBayes v.3.2.6软件分析BI[25-26],使用Modeltest v.2.3软件为每个基因选择最适合的核苷酸替代模型及参数,之后运行马尔可夫链蒙特卡罗(Markov chain Monte Carlo,MCMC)分析,对4条独立的马尔可夫链(Markov chains,MC)设置了10 000 000代的分析,每100代采样1次,在分裂频率(split frequencies)的平均标准偏差为0.01时停止分析,舍弃作为老化样本的前25.0%的树,并基于剩余的树获得后验概率(Bayesain posterior probablities,PP)。
本研究仅考虑MLB≥60.0%、MPB≥60.0%和PP≥ 90.0%支持的类群。构建完成的系统发育树使用FigTree v1.4.3可视化,并通过CorelDRAW X4优化排版。
1.8 致病性鉴定
在无菌条件下,用已消毒的针刺伤已消毒的翅果左扇和右扇,用直径为5 mm的灭菌打孔器从培养7 d的菌落边缘截取新鲜菌饼,将截取的菌饼(菌丝面朝下)贴附在左扇的刺伤部位作为实验组,右扇刺伤位置接种同样大小的PDA饼作为对照组,每组实验设置10个重复。将接种后的翅果分别放置于20、25、30、35和38 ℃恒温培养箱培养,并于第2、4、6和8天观察记录翅果的发病情况,发病后分离和鉴定病原菌。
1.9 病原菌的生物学特性研究
用打孔器截取直径为5 mm的供试菌株制作菌饼,接种到培养基上。按照不同培养条件在培养箱中培养7 d后,观察菌落形态,并采用十字交叉法测量菌落直径,从而计算病原菌的菌落平均直径,实验重复5次。
(1)温度。将菌饼接种于PDA培养基,分别置于5、10、15、20、25、30和35 ℃的恒温培养箱内培养7 d,待测。
(2)光照。将菌饼接种于PDA培养基,分别置于光照条件为24 h全光照、12 h/12 h光暗交替和24 h全黑暗的恒温光照培养箱内培养7 d,待测。
(3)pH。用1 mol/L HCl溶液和1 mol/L NaOH溶液调节PDA培养基的pH,分别调节为pH=4、5、6、7、8、9、10和11后,将菌饼接种于培养基上,在恒温培养箱内培养7 d,待测。
(4)培养基。将菌饼分别接种于PDA、Czapek、PSA、PCA、CA、SDA、Martin和OA共8种培养基上,在恒温培养箱内培养7 d,待测。
(5)碳源。以Czapek为基础培养基,用等质量的葡萄糖、甘油、麦芽糖、山梨醇、甘露醇和半乳糖分别置换原有的碳源蔗糖,得到7种碳源的培养基(含Czapek),同时以无碳源为空白组,将菌饼分别接种于上述培养基上,在恒温培养箱内培养7 d,待测。
(6)氮源。以Czapek为基础培养基,用等质量的硝酸铵、硫酸铵、牛肉膏、蛋白胨和酵母膏分别置换原有的氮源硝酸钠,得到6种氮源的培养基(含Czapek),同时以无氮源为空白组,将菌饼分别接种于上述培养基上,在恒温培养箱内培养7 d,待测。
1.10 统计学处理
数据以 x±s形式表示。使用Excel 2019统计数据,使用IBM SPSS 27.0软件进行数据的方差分析、独立样本t检验与显著性分析。P < 0.05为差异有统计学意义。
2. 实验结果
2.1 分离结果
对采集的46份标本,通过分离培养共获得133株菌株,经过DNA提取、PCR扩增和序列对比后,初步鉴定79株菌株为链格孢属(Alternaria spp.),54株菌株为空泡茎点霉属(Vacuiphoma spp.)。根据不同采集时间和ITS序列比对的结果,共选取13株代表性菌株进行其他基因扩增及后续分析,其中8株为链格孢属、5株为空泡茎点霉属。
2.2 系统发育分析
基于组合的Alt a1、GAPDH、endoPG、OPA10-2、TEF1、RPB2和ITS rDNA矩阵,系统发育分析链格孢属的62个物种,以Alternaria iridiaustralis(菌株号为CBS 118486和CBS 118487)作为外类群,删除无法比对的区域后,组合矩阵共包含3 500个碱基位点。序列的最大简约法分析得到了1个最简约树(图 1),TL为737,CI为0.590,RI为0.836,HI为0.410,重新缩放的RC为0.493。单个位点的系统发育树具有类似的拓扑结构。本研究所获得的菌株序列与链格孢以高支持聚在一支,MLB为91,PP为1.00。因此,该菌被鉴定为链格孢Alternaria alternata(Fr.)Keissl.
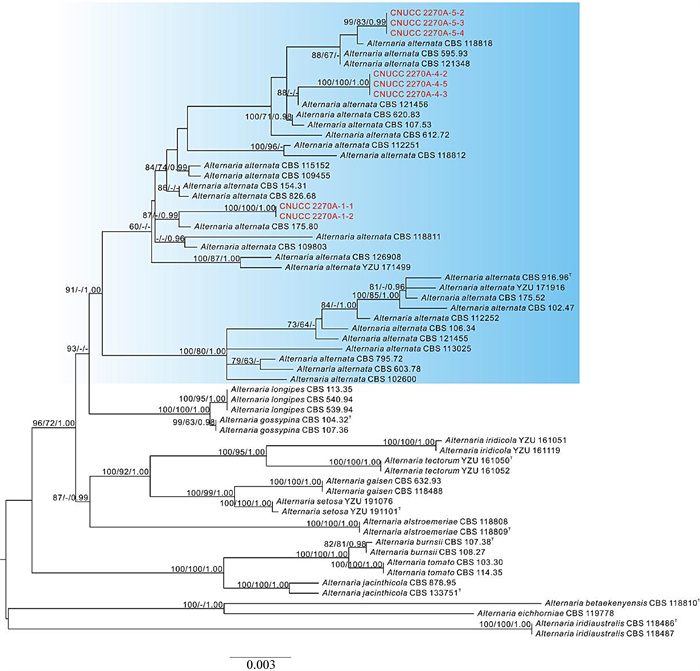 图 1 基于7种基因序列构建的系统发育树注:红色字体代表本研究所获得的菌株;蓝色背景区域为本研究中菌株序列所在的分支。Fig. 1 phylogenetic tree constructed from the combined sequences of seven genes
 下载:
全尺寸图片
基于组合的ITS、LSU、RPB2和TUB2 rDNA矩阵,系统发育分析空泡茎点霉属的13个物种,以Nothophoma infossa(菌株号为CBS 123395)和Leptosphaerulina saccharicola(菌株号为ICMP 19875)作为外类群,删除无法比对的区域后,组合矩阵共包含2 414个碱基位点。序列的最大简约法分析得到了1个最简约树(图 2),TL为341,CI为0.798,RI为0.752,HI为0.202,重新缩放的RC为0.600。单个位点的系统发育树具有类似的拓扑结构。本研究所获得的菌株序列与眼生空泡茎点霉以高支持聚在一支,MLB为99,MPB为100,PP为1.00。因此,该菌被鉴定为眼生空泡茎点霉Vacuiphoma oculihominis Valenz.-Lopez,Stchigel,Guarro & Cano。
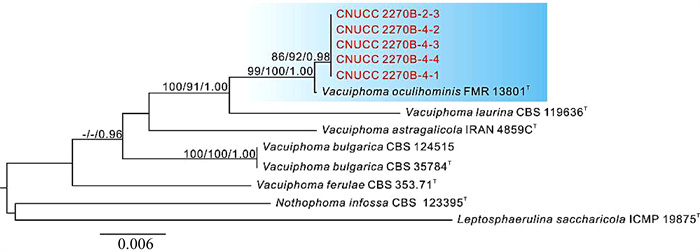 图 2 基于4种基因序列构建的系统发育树Fig. 2 phylogenetic tree constructed from the combined sequences of four genes下载:
全尺寸图片
2.3 形态学鉴定
对于分离得到的链格孢菌株,选取菌株号为CNUCC 2270A-1-1观察形态学,相关结果如图 3所示。培养7 d后,PDA上的菌落直径达到68.0~72.0 mm,气生菌丝较稀疏,菌落正面中央深褐色至边缘淡褐色,反面中央深褐色至黄色,边缘呈白色;培养9~12 d后,覆盖整个培养基。在PDA培养基上,菌丝通常呈现出细长透明的丝状结构,偶有分枝。分生孢子卵圆形、倒棍棒状或圆锥型,浅褐色至深褐色,大小为(18.71~29.2)μm ×(8.5~16.8)μm,有2~4个横膈膜,0~3个纵膈膜或斜隔膜,具长圆锥型喙或短圆锥型喙或无喙。
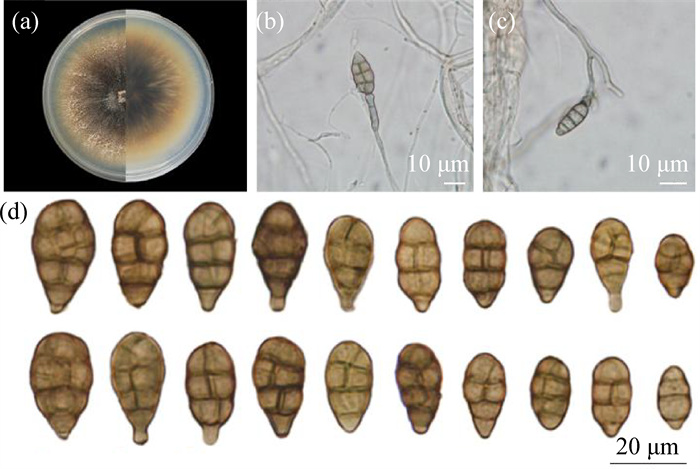 图 3 链格孢菌株形态(菌株号为CNUCC 2270A-1-1)(a)菌落正面和反面;(b、c)分生孢子梗;(d)分生孢子Fig. 3 morphology of Alternaria alternata (NO. CNUCC 2270A-1-1)(a)front and back of colony;(b,c)conidial sporophore; (d)conidia下载:
全尺寸图片
对分离得到的眼生空泡茎点霉菌株,选取菌株号为CNUCC 2270B-2-3观察形态学,相关结果如图 4所示。培养7 d后,PDA上的菌落直径达到62~65 mm,菌丝绒毛状,气生菌丝发达,菌落正面呈白色,反面中央淡褐色至淡黄色,菌落边缘整齐且呈白色;培养10~15 d后,覆盖整个培养基。用OA培养基和松针培养诱导产孢,培养14 d后,可以观察到暗黑色、椭圆形的分生孢子器,挑取分生孢子器制成临时玻片,分生孢子器的大小为(195.0~351.0)μm ×(121.0~240.0)μm;按压盖玻片、挤破分生孢子器,可以观察到大量分生孢子涌出,分生孢子呈椭圆形或长椭圆形,大小为(4.6~7.3)μm×(2.6~4.1)μm。
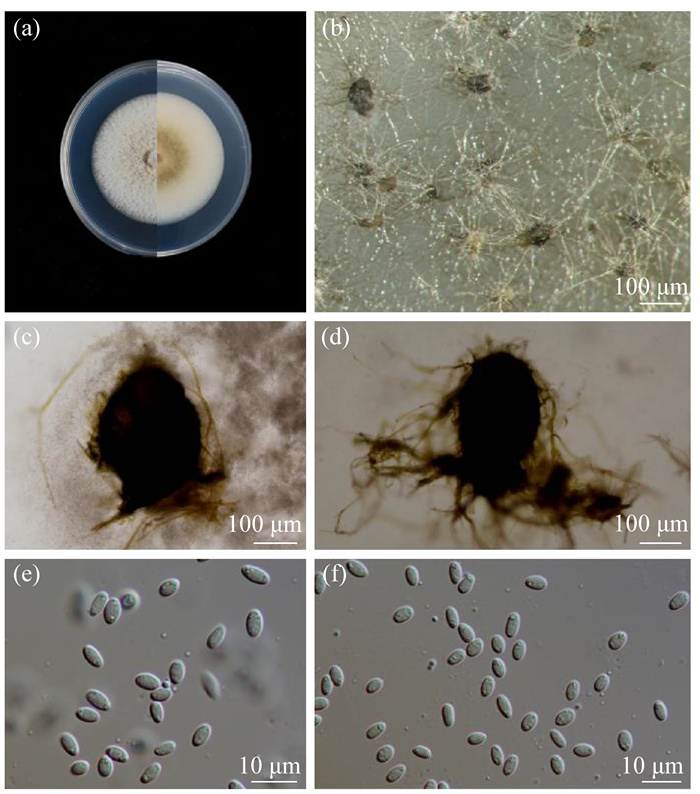 图 4 眼生空泡茎点霉菌株形态(菌株号为CNUCC 2270B-2-3)(a)菌落正面和反面;(b~d)分生孢子器;(e、f)分生孢子Fig. 4 morphology of Vacuiphoma oculihominis (NO. CNUCC 2270B-2-3)(a) front and back of colony; (b-d) pycnidium; (e, f) conidia下载:
全尺寸图片
2.4 致病性鉴定
分别接种链格孢菌株、眼生空泡茎点霉菌株、复合链格孢菌株和眼生空泡茎点霉菌株8 d后,元宝枫翅果左扇的接种部位均表现出与田间症状相似的褐色病斑,右扇的对照部位8 d后未出现病斑。对发病的部位再分离培养,从中分离得到的病原菌菌株与原接种病原菌菌株形态一致,并且ITS序列相似性高度一致,验证了柯赫氏法则,证实链格孢是引起元宝枫翅果褐斑病的致病菌。不同温度接种实验结果显示(图 5),温度不同菌株的侵染能力亦不同。(1)接种链格孢、复合菌株后:2组均在25和30 ℃培养温度下,病原菌侵染能力最强,翅果接种部位形成的褐色病斑迅速蔓延,色泽深褐,病斑面积明显大于其他培养温度;其余温度病原菌的侵染能力均受到明显抑制,所形成的病斑面积显著减小,多局限于接种点附近,扩展范围有限。(2)接种眼生空泡茎点霉菌株后:培养温度为30 ℃时,病原菌侵染能力最强,翅果接种部位形成的褐色病斑迅速蔓延,病斑面积最大;培养温度为38 ℃时,病原菌几乎丧失侵染能力,接种部位未出现明显病斑扩展现象;其余温度病原菌的侵染能力均受到抑制,所形成的病斑面积减小,多局限于接种点附近,扩展范围有限。不同菌株接种的侵染结果比较表明:在相同培养温度与时间的条件下,采用复合接种所形成的病斑扩展面积明显大于单一菌株单独接种处理;尤其在培养温度为25和30 ℃时,复合接种所形成的病斑融合更早、色泽更深,表现出明显的协同侵染效应,能够共同促进对翅果的侵染能力与病害严重程度。
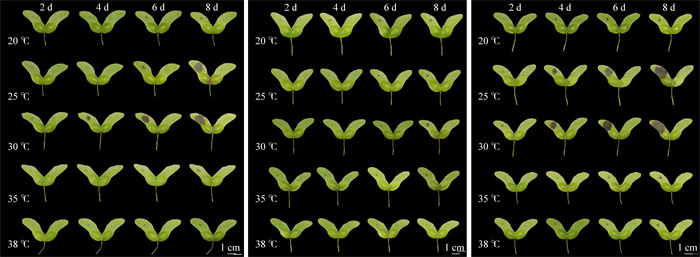 图 5 不同培养温度条件下接种不同菌株引起的翅果病害症状(a)链格孢;(b)眼生空泡茎点霉;(c)复合链格孢和眼生空泡茎点霉Fig. 5 disease symptoms on samara caused by inoculation with different strains under different temperatures(a) A.alternata; (b) V. oculihominis; (c) A. alternata and V.oculihominis下载:
全尺寸图片
2.5 生物学特性研究
2.5.1 温度
不同温度条件下,链格孢和眼生空泡茎点霉培养7 d后的菌落生长情况如图 6所示。褐斑病病原菌在5~35 ℃的条件下均能生长,但存在生长差异。随着温度的升高,在5~25 ℃时,菌落直径逐渐增大;而在30~35 ℃时,菌落直径逐渐减小。培养7 d后病原菌的平均菌落直径数据列于表 3。链格孢和眼生空泡茎点霉7 d平均菌落直径分别为9.94~70.83和6.19~63.29 mm,二者均在温度为25 ℃的条件下直径最大;链格孢在5 ℃时菌落最小,眼生空泡茎点霉在35 ℃时菌落最小;与25 ℃相比,链格孢在5 ℃时直径显著缩小了86.0%(t=−161.988,P < 0.05),眼生空泡茎点霉在35 ℃时直径显著缩小了90.2%(t= −306.577,P < 0.05)。
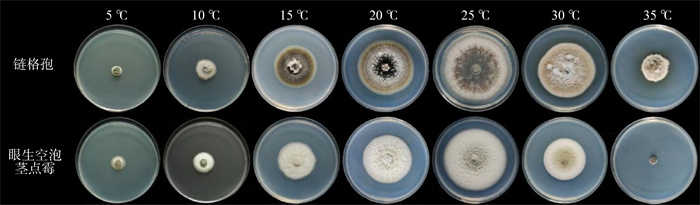 图 6 不同温度对病原菌菌丝生长的影响Fig. 6 effect of different temperatures on mycelial growth of the pathogen下载:
全尺寸图片
表 3 不同温度条件下病原菌菌丝培养 7 d后平均菌落直径统计
单位:mm Table 3 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture under different temperature conditionsunit: mm 培养温度/℃ 链格孢 眼生空泡茎点霉 5 9.94±0.86a 14.23±1.20 10 20.29±1.06 22.11±0.31 15 44.56±0.73 40.60±0.48 20 55.12±0.40 48.60±0.54 25 70.83±0.82 63.29±0.58 30 58.53±0.54 51.31±0.53 35 28.70±0.72 6.19±0.12a 注:a与25 ℃相比,t=−161.988、−306.577,P < 0.05。 2.5.2 光照条件
不同光照条件下,链格孢和眼生空泡茎点霉培养7 d后的菌落生长情况如图 7所示。褐斑病病原菌在24 h全光照、12 h/12 h光暗交替和24 h全黑暗的条件下均能生长,但存在生长差异。培养7 d后病原菌的平均菌落直径数据列于表 4。链格孢和眼生空泡茎点霉7 d平均菌落直径分别为53.16~66.03和56.13~63.89 mm。二者均在光照条件为24 h全黑暗时直径最大;与24 h全黑暗条件相比,链格孢在12 h/12 h光暗交替条件下直径显著缩小了19.5%(t=−53.597,P < 0.05),眼生空泡茎点霉在24 h全光照条件下直径显著缩小了12.1%(t=−27.493,P < 0.05)。
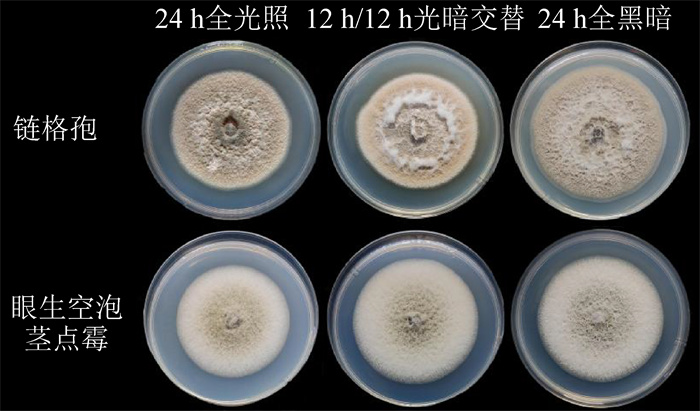 图 7 不同光照条件对病原菌菌丝生长的影响Fig. 7 effect of different light conditions on mycelial growth of the pathogen下载:
全尺寸图片
表 4 不同光照条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 4 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture under different light conditionsunit: mm 光照 链格孢 眼生空泡茎点霉 24 h全光照 64.85±0.37 56.13±0.43b 12 h/12 h光暗交替 53.16±0.47b 62.58±0.42 24 h全黑暗 66.03±0.60 63.89±0.78 注:b与24 h全黑暗相比,t=−53.597、−27.493,P < 0.05。 2.5.3 酸碱度
不同pH时,链格孢和眼生空泡茎点霉培养7 d后的菌落生长情况如图 8所示。褐斑病病原菌在pH=4~11时均能生长,但存在生长差异。随着pH增加,在pH=4~7时,菌落直径逐渐增大;在pH=8~11时,菌落直径逐渐减小。培养7 d后病原菌的平均菌落直径数据列于表 5。链格孢和眼生空泡茎点霉7 d平均菌落直径分别为37.18~73.02和35.64~61.82 mm。二者均在pH=7时直径最大,pH=4时直径最小;与pH=7相比,pH=4时链格孢和眼生空泡茎点霉直径显著缩小了49.1%和42.3%(t=−259.524和−72.951,P < 0.05)。
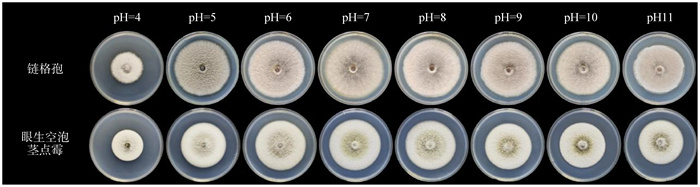 图 8 不同pH对病原菌菌丝生长的影响Fig. 8 effect of different pH values on mycelial growth of the pathogen下载:
全尺寸图片
表 5 不同pH时病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 5 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture under different pH levelsunit: mm pH值 链格孢 眼生空泡茎点霉 4 37.18±0.37c 35.64±1.07c 5 66.66±1.03 55.64±0.74 6 68.75±0.32 59.55±0.41 7 73.02±0.23 61.82±0.38 8 69.60±0.36 59.14±0.60 9 67.45±0.30 55.65±0.58 10 65.47±0.42 54.13±0.50 11 60.44±0.47 53.18±0.59 注:c与pH=7相比,t=−259.524、−72.951,P < 0.05。 2.5.4 培养基
不同培养基条件下,链格孢和眼生空泡茎点霉培养7 d后的菌落生长情况如图 9所示。褐斑病病原菌在各种供试培养基上均能生长,但存在差异。培养7 d后病原菌的平均菌落直径数据列于表 6。链格孢和眼生空泡茎点霉7 d平均菌落直径分别为37.99~76.99和49.73~63.28 mm,均在CA上直径最大。与CA相比,链格孢在Martin上直径显著缩小了50.7%(t=−104.182,P < 0.05),眼生空泡茎点霉在SDA上直径显著缩小了21.4%(t=−50.551,P < 0.05)。
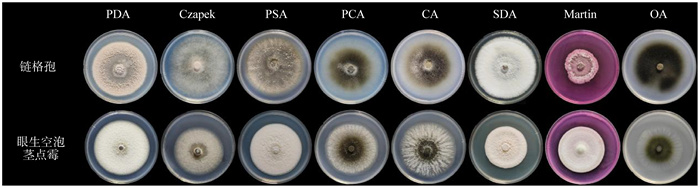 图 9 不同培养基对病原菌菌丝生长的影响注:PDA为马铃薯葡萄糖琼脂培养基;Czapek为察氏培养基;PSA为马铃薯蔗糖琼脂培养基;PCA为马铃薯胡萝卜琼脂培养基;CA为胡萝卜琼脂培养基;SDA为沙氏葡萄糖琼脂培养基;Martin为马丁琼脂培养基;OA为燕麦琼脂培养基。Fig. 9 effect of different culture media on mycelial growth of the pathogen下载:
全尺寸图片
表 6 不同培养基条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 6 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture on different mediaunit: mm 培养基 链格孢 眼生空泡茎点霉 PDA 69.37±0.62 61.72±0.45 Czapek 73.82±0.61 55.38±0.38 PSA 74.33±0.44 58.97±0.47 PCA 73.47±0.31 59.53±0.32 CA 76.99±0.44 63.28±0.52 SDA 73.98±0.33 49.73±0.67d Martin 37.99±1.10d 50.93±0.68 OA 70.94±0.21 51.50±0.43 注:d与CA相比,t=−104.182、−50.551,P < 0.05。 2.5.5 碳源
不同碳源条件下,链格孢和眼生空泡茎点霉培养7 d后的菌落生长情况如图 10所示。褐斑病病原菌在各种供试碳源上均能生长,但存在差异。培养7 d后病原菌的平均菌落直径数据列于表 7。有碳源时,链格孢和眼生空泡茎点霉7 d平均菌落直径分别为67.16~76.28和49.74~55.80 mm。链格孢在以蔗糖和葡萄糖为碳源时直径最大,以甘露醇为碳源时直径最小,与无碳源相比,上述3种碳源对应的直径分别显著增加了121.0%、119.5%和94.6%(t= 165.491、184.851和132.752,P < 0.05);眼生空泡茎点霉在以麦芽糖为碳源时直径最大,甘露醇和半乳糖为碳源时直径最小,与无碳源相比,上述3种碳源对应的直径分别显著增加了183.1%、154.9%和152.4%(t= 149.892、189.294和183.182,P < 0.05)。
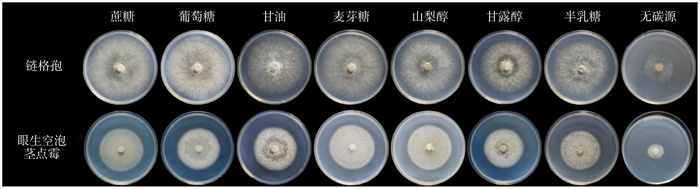 图 10 不同碳源对病原菌菌丝生长的影响Fig. 10 effect of different carbon sources on mycelial growth of the pathogen下载:
全尺寸图片
表 7 不同碳源条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 7 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture with different carbon sourcesunit: mm 碳源 链格孢 眼生空泡茎点霉 蔗糖 76.28±0.58e 54.28±0.60c 葡萄糖 75.75±0.44e 54.29±0.57c 甘油 70.17±0.56c 52.01±0.37c 麦芽糖 73.87±0.40c 55.80±0.61e 山梨醇 70.37±0.40c 54.12±0.27c 甘露醇 67.16±0.55e 50.24±0.23e 半乳糖 70.47±0.48c 49.74±0.25e 无碳源 34.51±0.55 19.71±0.45 注:e与无碳源相比,t=165.491、184.851、143.490、183.824、167.337、132.752、155.817、145.307、150.453、173.403、149.892、206.661、189.294和183.182,P < 0.05。 2.5.6 氮源
不同氮源条件下,链格孢和眼生空泡茎点霉培养7 d后的菌落生长情况如图 11所示。褐斑病病原菌在各种供试氮源上均能生长,但存在差异。培养7 d后病原菌的平均菌落直径数据列于表 8。有氮源时,链格孢和眼生空泡茎点霉7 d平均菌落直径分别为36.96~81.97和26.03~56.45 mm。链格孢在以蛋白胨为氮源时直径最大,以硫酸铵为氮源时直径最小,与无氮源相比,上述2种氮源对应的直径分别显著增加了130.8%和4.0%(t=366.293和6.424,P < 0.05);眼生空泡茎点霉在以牛肉膏为氮源时直径最大,以硫酸铵为氮源时直径最小,与无氮源相比,上述2种氮源对应的直径分别显著增加了180.1% 和29.2%(t=244.946和38.808,P < 0.05)。
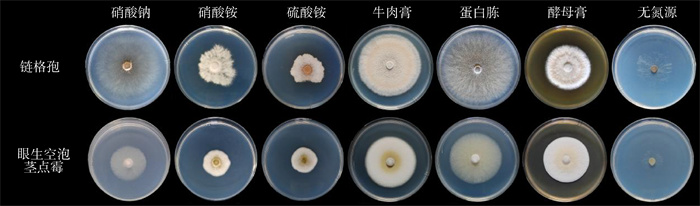 图 11 不同氮源对病原菌菌丝生长的影响Fig. 11 effect of different nitrogen sources on mycelial growth of the pathogen下载:
全尺寸图片
表 8 不同氮源条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 8 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture with different nitrogen sourcesunit: mm 氮源 链格孢 眼生空泡茎点霉 硝酸钠 72.67±0.40f 39.93±0.41f 硝酸铵 43.72±0.36f 29.88±0.45f 硫酸铵 36.96±0.66f 26.03±0.34f 牛肉膏 68.03±0.33f 56.45±0.32f 蛋白胨 81.97±0.32f 55.51±0.27f 酵母膏 50.45±0.21f 48.92±0.33f 无氮源 35.55±0.24 20.15±0.34 注:f与无氮源相比,t=250.291、60.082、366.293、253.14、6.424、149.747、118.230、54.559、244.946、38.808、255.622和191.467,P < 0.05。 3. 讨论
链格孢属是在全球范围内极其重要的一种真菌,作为病原菌,能够引发多种植物作物出现病害,例如茄子叶斑病、杉木梢枯病、核桃黑斑病、绣球花叶枯病和古侧柏叶枯病等[27-31]。早期,研究者主要依据形态学特征鉴定链格孢属真菌,因该属真菌的形态特征容易受环境影响而发生变化,并且该属内部不同物种之间的界限也不明晰,造成鉴定结果准确度低。但随着分子生物学领域的不断发展,多基因系统发育分析为链格孢属真菌的鉴定工作提供了切实可行的方法[9, 32]。本研究采用Alt a1、endoPG、GAPDH和ITS等7个基因片段联合分析,较好解决了该病原菌分类问题。
空泡茎点霉属由Valenz.-Lopez等于2018年建立,目前已报道该属真菌可能会引起紫草科(Boraginaceae Juss.)、豆科(Fabaceae Lindl.)和樟科(Lauraceae Juss.)等植物出现病害[18-19, 33]。其中,眼生空泡茎点霉最初分离自人眼样本,后被报道可引发甜橙果腐病[34]。
2024年,王学文和于存[8]证实链格孢能够引起元宝枫翅果褐斑病。本研究进一步证实:在单独菌株侵染翅果时,链格孢菌株的致病力较强,形成的病斑较大,且在25和30 ℃下更有利于病斑的扩展;眼生空泡茎点霉菌株的致病力较弱,形成的病斑较小,在30 ℃下更有利于病斑的扩展;当2个菌株复合侵染时,病斑面积显著大于任一单独菌株侵染的处理,尤其在25和30 ℃的适宜病原菌生长的温度区间内,病斑融合更早、色泽更深。表明了链格孢与眼生空泡茎点霉在致病过程中可能存在协同效应,能够共同促进元宝枫翅果褐斑病的发生与病斑扩展。
对病原菌生物学特性的研究,是阐明其致病害发生规律的关键基础。本研究明确了链格孢和眼生空泡茎点霉菌株在温度、光照及pH等方面的最适范围。结果显示,2株菌株的最适生长温度均与田间病害高发期——春、夏季节的日均温高度重叠,这从生理生态角度直接解释了该病害呈现显著季节性流行的内在原因。由此可见,揭示病原菌的生物学特性,有助于掌握病害的发生规律及与环境的关系,这为通过调控环境条件实现田间病害的生态防控提供了理论依据。如:通过优化灌溉与通风管理降低林间温度,构建不利于病原菌繁殖而有利于寄主健康的微生态环境,最终推动病害治理向绿色、可持续方向发展。
4. 结束语
本研究通过形态学结合分子系统学以及接种实验,明确了滁州市元宝槭翅果褐斑病的致病菌为链格孢与眼生空泡茎点霉,其中眼生空泡茎点霉侵染元宝槭系首次报道。进一步的混合接种试验揭示了二者在侵染过程中存在显著的协同效应,可导致病斑扩展速度加快、危害程度加重,此外,还阐明了病原菌的关键生物学特性。上述研究结果可为科学预测病害的发生与流行、田间环境调控措施以及综合防控策略的制定提供了重要理论依据。
© The editorial department of Journal of Capital Normal University (Natural Science Edition) 2026.This is an open access article under the CC BY-NC-ND 4.0 license (https://creativecommons.org/licenses/by-nc-nd/4.0/). -
图 1 基于7种基因序列构建的系统发育树
注:红色字体代表本研究所获得的菌株;蓝色背景区域为本研究中菌株序列所在的分支。
Fig. 1 phylogenetic tree constructed from the combined sequences of seven genes
下载:
全尺寸图片
图 2 基于4种基因序列构建的系统发育树
Fig. 2 phylogenetic tree constructed from the combined sequences of four genes
下载:
全尺寸图片
图 3 链格孢菌株形态(菌株号为CNUCC 2270A-1-1)
(a)菌落正面和反面;(b、c)分生孢子梗;(d)分生孢子
Fig. 3 morphology of Alternaria alternata (NO. CNUCC 2270A-1-1)
(a)front and back of colony;(b,c)conidial sporophore; (d)conidia
下载:
全尺寸图片
图 4 眼生空泡茎点霉菌株形态(菌株号为CNUCC 2270B-2-3)
(a)菌落正面和反面;(b~d)分生孢子器;(e、f)分生孢子
Fig. 4 morphology of Vacuiphoma oculihominis (NO. CNUCC 2270B-2-3)
(a) front and back of colony; (b-d) pycnidium; (e, f) conidia
下载:
全尺寸图片
图 5 不同培养温度条件下接种不同菌株引起的翅果病害症状
(a)链格孢;(b)眼生空泡茎点霉;(c)复合链格孢和眼生空泡茎点霉
Fig. 5 disease symptoms on samara caused by inoculation with different strains under different temperatures
(a) A.alternata; (b) V. oculihominis; (c) A. alternata and V.oculihominis
下载:
全尺寸图片
图 6 不同温度对病原菌菌丝生长的影响
Fig. 6 effect of different temperatures on mycelial growth of the pathogen
下载:
全尺寸图片
图 7 不同光照条件对病原菌菌丝生长的影响
Fig. 7 effect of different light conditions on mycelial growth of the pathogen
下载:
全尺寸图片
图 8 不同pH对病原菌菌丝生长的影响
Fig. 8 effect of different pH values on mycelial growth of the pathogen
下载:
全尺寸图片
图 9 不同培养基对病原菌菌丝生长的影响
注:PDA为马铃薯葡萄糖琼脂培养基;Czapek为察氏培养基;PSA为马铃薯蔗糖琼脂培养基;PCA为马铃薯胡萝卜琼脂培养基;CA为胡萝卜琼脂培养基;SDA为沙氏葡萄糖琼脂培养基;Martin为马丁琼脂培养基;OA为燕麦琼脂培养基。
Fig. 9 effect of different culture media on mycelial growth of the pathogen
下载:
全尺寸图片
图 10 不同碳源对病原菌菌丝生长的影响
Fig. 10 effect of different carbon sources on mycelial growth of the pathogen
下载:
全尺寸图片
图 11 不同氮源对病原菌菌丝生长的影响
Fig. 11 effect of different nitrogen sources on mycelial growth of the pathogen
下载:
全尺寸图片
表 1 链格孢属系统发育分析所用序列信息
Table 1 sequence information used for the phylogenetic analysis of Alternaria
物种 国家 菌株号 寄主或分离来源 Alt a1 GAPDH endoPG OPA10-2 TEF1 RPB2 ITS 六出花链格孢Alternaria alstroemeriae 美国 CBS 118808 Alstroemeriasp. KP123845 KP124153 KP123993 KP124601 KP125071 KP124764 KP124296 澳大利亚 CBS 118809T Alstroemeriasp. MH084526 KP124154 KP123994 KP124602 KP125072 KP124765 KP124297 链格孢Alternaria alternata 美国 CBS 102.47 甜橙Citrus sinensis KP123855 KP124161 KP124002 KP124610 KP125080 KP124773 KP124304 — CBS 106.34 亚麻Linum usitatissimum KP123853 JQ646308 KP124000 KP124608 KP125078 KP124771 Y17071 日本 CBS 107.53 沙梨Pyrus pyrifolia KP123858 KP124162 KP124005 KP124613 KP125081 KP124774 KP124305 美国 CBS 154.31 美国省沽油Staphylea trifolia KP123851 KP124158 KP123998 KP124606 KP125076 KP124769 KP124301 美国 CBS 175.52 Juncus mertensianus KP123857 KC584151 KP124004 KP124612 KC584703 KC584445 KC584227 意大利 CBS 175.80 —— KP123866 JQ646324 KP124013 KP124620 KP125089 KP124781 KP124313 日本 CBS 595.93 沙梨 JQ646399 KP124175 KP124020 KP124627 KP125096 KP124788 KP124320 美国 CBS 603.78 空气 KP123865 KP124169 KP124012 KP124619 KP125088 KP124780 KP124312 德国 CBS 612.72 Senecio cineraria KP123861 KP124165 KP124008 KP124615 KP125084 KP124777 KP124308 美国 CBS 620.83 烟草Nicotiana tabacum KP123868 KP124171 KP124015 KP124622 KP125091 KP124783 KP124315 美国 CBS 795.72 Plantago aristida KP123862 KP124166 KP124009 KP124616 KP125085 KP124778 KP124309 德国 CBS 826.68 Lolium sp. KP123860 KP124164 KP124007 — KP125083 KP124776 KP124307 印度 CBS 916.96T 落花生Arachis hypogaea AY563301 AY278808 JQ811978 KP124632 KC584634 KC584375 AF347031 美国 CBS 102600CBS 柑橘Citrus reticulata KP123880 KP124186 KP124033 KP124640 KP125107 KP124799 KP124331 加拿大 CBS 109455 人体手臂组织 KP123883 KP124189 KP124036 KP124644 KP125111 KP124803 KP124335 德国 CBS 109803 人体皮肤 KP123884 KP124190 KP124037 KP124645 KP125112 KP124804 KP124336 — CBS 112251 — KP123887 KP124193 KP124040 KP124649 KP125115 KP124807 KP124339 — CBS 112252 — KP123888 KP124194 KP124041 KP124650 KP125116 KP124808 KP124340 南非 CBS 113025 Citrus clementina KP123893 KP124199 KP124046 KP124655 KP125121 KP124813 KP124345 中国 CBS 115152 蔓九节Psychotria serpens KP123896 KP124202 KP124049 KP124658 KP125124 KP124816 KP124348 美国 CBS 118811 野甘蓝Brassica oleracea KP123904 KP124210 KP124057 KP124667 KP125132 KP124824 KP124356 美国 CBS 118812 野胡萝卜Daucus carota KP123905 KC584112 KP124058 KP124668 KC584652 KC584393 KC584193 美国 CBS 118818 Vaccinium sp. KP123908 KP124213 KP124061 KP124671 KP125135 KP124827 KP124359 中国 CBS 121348 桔梗Platycodon grandiflorus KP123915 KP124219 KP124070 KP124679 KP125144 KP124836 KP124367 中国 CBS 121455 构树Broussonetia papyrifera KP123916 KP124220 KP124072 KP124681 KP125146 KP124838 KP124368 中国 CBS 121456 地榆Sanguisorba officinalis KP123917 KP124221 KP124073 KP124682 KP125147 KP124839 KP124369 美国 CBS 126908 土壤 KP123926 KP124230 KP124082 KP124691 KP125156 KP124848 KP124378 中国 YZU 171499 鸢尾Iris tectorum OP293708 OP352295 OP293719 OP352271 OP374448 OP352283 OP341534 中国 YZU 171916 新疆梨Pyrus sinkiangensis MK391585 MK391582 MK415955 MK391584 MK415954 MK391583 MK391581 中国 CNUCC2 270A-1-1 元宝槭Acer truncatum 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-1-2 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-4-2 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-4-3 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-4-5 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-5-2 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-5-3 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 中国 CNUCC2 270A-5-4 元宝槭 本研究 本研究 本研究 本研究 本研究 本研究 本研究 Alternaria betaekenyensis 肯尼亚 CBS 118810T 蒼茇菜Beta vulgaris var.cicla KP123966 KP124270 KP124123 KP124733 KP125197 KP124888 KP124419 巴斯基链格孢Alternaria burnsii 印度 CBS 107.38T 孜然芹Cuminum cyminum KP123967 JQ646305 KP124124 KP124734 KP125198 KP124889 KP124420 — CBS108.27 千日红Gomphrena globosa KP123850 KC584162 KP123997 KP124605 KC584727 KC584468 KC584236 Alternaria eichhorniae 印度尼西亚 CBS119778 Eichhornia crassipes —— KP124277 KP124131 KP124741 KP125205 KP124896 KP124426 梨黑斑链格孢Alternaria gaisen 日本 CBS118488 沙梨 KP123975 KP124278 KP124132 KP124743 KP125206 KP124897 KP124427 日本 CBS632.93 沙梨 KP123974 KC584116 AY295033 KP124742 KC584658 KC584399 KC584197 棉链格孢Alternaria gossypina 津巴布韦 CBS 104.32T Gossypium sp. JQ646395 JQ646312 KP124135 KP124746 KP125209 KP124900 KP124430 印度尼西亚 CBS107.36 土壤 JQ646393 JQ646310 KP124136 KP124747 KP125210 KP124901 KP124431 Alternaria iridaustralis 澳大利亚 CBS 118486T Iris sp. KP123981 KP124284 KP124140 KP124751 KP125214 KP124905 KP124435 澳大利亚 CBS118487 Iris sp. KP123982 KP124285 KP124141 KP124752 KP125215 KP124906 KP124436 鸢尾生链格孢Alternaria iridicola 中国 YZU161051 鸢尾 OP293713 OP352302 OP293725 OP352278 OP374455 OP352290 OP341633 中国 YZU161119 鸢尾 OP293712 OP352301 OP293724 OP352277 OP374454 OP352289 OP341632 Alternaria jacinthicola 马里 CBS 133751T Eichhornia crassipes KP123984 KP124287 KP124143 KP124754 KP125217 KP124908 KP124438 毛里求斯 CBS878.95 落花生 KP123983 KP124286 KP124142 KP124753 KP125216 KP124907 KP124437 烟草赤星病菌Alternaria longipes — CBS113.35 烟草 KP123986 KP124289 KP124145 KP124756 KP125219 KP124910 KP124440 美国 CBS539.94 烟草 KP123987 KP124290 KP124146 KP124757 KP125220 KP124911 KP124441 美国 CBS540.94 烟草 AY563304 AY278811 KP124147 KP124758 KC584667 KC584409 AY278835 Alternaria setosa 中国 YZU191076 蝴蝶花Iris japonica OP293716 OP352305 OP293728 OP352279 OP374458 OP352293 OP341739 中国 YZU 191101T 蝴蝶花 OP293717 OP352306 OP293729 OP352280 OP374459 OP352294 OP341770 Alternaria tectorum 中国 YZU 161050T 鸢尾 OP293714 OP352303 OP293726 OP352281 OP374456 OP352291 OP341728 中国 YZU161052 鸢尾 OP293715 OP352304 OP293727 OP352282 OP374457 OP352292 OP341817 Alternaria tomato — CBS103.30 番茄Solanum lycopersicum KP123991 KP124294 KP124151 KP124762 KP125224 KP124915 KP124445 — CBS114.35 番茄 KP123992 KP124295 KP124152 KP124763 KP125225 KP124916 KP124446 注:—表示无数据,信息或序列缺失;T为模式菌株;GAPDH为甘油醛-3-磷酸脱氢酶;endoPG为内切多聚半乳糖醛酸酶;TEF1为翻译延伸因子1-α;RPB2为核糖核酸(RNA)聚合酶Ⅱ第二大亚基;ITS为内转录间隔区。 表 2 空泡茎点霉属系统发育分析所用序列信息
Table 2 sequence information used for the phylogenetic analysis of Vacuiphoma
物种 国家 菌株号 寄主 ITS LSU RPB2 TUB2 Vacuiphoma astragalicola 伊朗 IRAN4859CT Astragalus sarcocolla OR286123 — OR286202 OR286204 Vacuiphoma bulgarica 保加利亚 CBS 124515 东方圣仙草Trachystemon orientalis MN973057 MN973446 MN983696 MN984069 保加利亚 CBS357.84T 紫草科Boraginaceae GU237837 GU238050 LT623256 GU237589 Vacuiphoma ferulae 意大利 CBS353.71T Ferula communis MN973552 MN943759 MT018196 MT005655 Vacuiphoma laurina 土耳其 CBS119636T 月桂Laurus nobilis MN973551 MN943758 MT018195 MT005654 眼生空泡茎点霉Vacuiphoma oculihominis 美国 FMR13801T 人眼临床样本 LT592954 LN907451 LT593093 LT593023 中国 CNUCC 2270 B-2-3 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-1 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-2 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-3 元宝槭 本研究 本研究 本研究 本研究 中国 CNUCC 2270 B-4-4 元宝槭 本研究 本研究 本研究 本研究 Leptosphaerulina saccharicola 泰国 ICMP19875T 甘蔗Saccharum officinarum KF670717 KF670716 KF670714 — Nothophoma infossa 阿根廷 CBS123395T 美国红梣Fraxinus pennsylvanica FJ427025 GU238089 KT389659 FJ427135 注:LSU为核糖体大亚基;TUB2为β-微管蛋白。 表 3 不同温度条件下病原菌菌丝培养 7 d后平均菌落直径统计
单位:mm Table 3 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture under different temperature conditions
unit: mm 培养温度/℃ 链格孢 眼生空泡茎点霉 5 9.94±0.86a 14.23±1.20 10 20.29±1.06 22.11±0.31 15 44.56±0.73 40.60±0.48 20 55.12±0.40 48.60±0.54 25 70.83±0.82 63.29±0.58 30 58.53±0.54 51.31±0.53 35 28.70±0.72 6.19±0.12a 注:a与25 ℃相比,t=−161.988、−306.577,P < 0.05。 表 4 不同光照条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 4 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture under different light conditions
unit: mm 光照 链格孢 眼生空泡茎点霉 24 h全光照 64.85±0.37 56.13±0.43b 12 h/12 h光暗交替 53.16±0.47b 62.58±0.42 24 h全黑暗 66.03±0.60 63.89±0.78 注:b与24 h全黑暗相比,t=−53.597、−27.493,P < 0.05。 表 5 不同pH时病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 5 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture under different pH levels
unit: mm pH值 链格孢 眼生空泡茎点霉 4 37.18±0.37c 35.64±1.07c 5 66.66±1.03 55.64±0.74 6 68.75±0.32 59.55±0.41 7 73.02±0.23 61.82±0.38 8 69.60±0.36 59.14±0.60 9 67.45±0.30 55.65±0.58 10 65.47±0.42 54.13±0.50 11 60.44±0.47 53.18±0.59 注:c与pH=7相比,t=−259.524、−72.951,P < 0.05。 表 6 不同培养基条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 6 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture on different media
unit: mm 培养基 链格孢 眼生空泡茎点霉 PDA 69.37±0.62 61.72±0.45 Czapek 73.82±0.61 55.38±0.38 PSA 74.33±0.44 58.97±0.47 PCA 73.47±0.31 59.53±0.32 CA 76.99±0.44 63.28±0.52 SDA 73.98±0.33 49.73±0.67d Martin 37.99±1.10d 50.93±0.68 OA 70.94±0.21 51.50±0.43 注:d与CA相比,t=−104.182、−50.551,P < 0.05。 表 7 不同碳源条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 7 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture with different carbon sources
unit: mm 碳源 链格孢 眼生空泡茎点霉 蔗糖 76.28±0.58e 54.28±0.60c 葡萄糖 75.75±0.44e 54.29±0.57c 甘油 70.17±0.56c 52.01±0.37c 麦芽糖 73.87±0.40c 55.80±0.61e 山梨醇 70.37±0.40c 54.12±0.27c 甘露醇 67.16±0.55e 50.24±0.23e 半乳糖 70.47±0.48c 49.74±0.25e 无碳源 34.51±0.55 19.71±0.45 注:e与无碳源相比,t=165.491、184.851、143.490、183.824、167.337、132.752、155.817、145.307、150.453、173.403、149.892、206.661、189.294和183.182,P < 0.05。 表 8 不同氮源条件下病原菌菌丝培养7 d后平均菌落直径统计
单位:mm Table 8 statistics on the average colony diameter of pathogenic fungi mycelia after 7 d of culture with different nitrogen sources
unit: mm 氮源 链格孢 眼生空泡茎点霉 硝酸钠 72.67±0.40f 39.93±0.41f 硝酸铵 43.72±0.36f 29.88±0.45f 硫酸铵 36.96±0.66f 26.03±0.34f 牛肉膏 68.03±0.33f 56.45±0.32f 蛋白胨 81.97±0.32f 55.51±0.27f 酵母膏 50.45±0.21f 48.92±0.33f 无氮源 35.55±0.24 20.15±0.34 注:f与无氮源相比,t=250.291、60.082、366.293、253.14、6.424、149.747、118.230、54.559、244.946、38.808、255.622和191.467,P < 0.05。 -
[1] 王性炎. 元宝枫, 极具新质生产力潜力的树种[J]. 中国林业产业, 2025(6): 3-4. Wang Xingyan. Acer truncatum, a tree species with great potential for new quality productivity[J]. China Forestry Industry, 2025(6): 3-4. [2] 程甜甜, 玄锦, 褚敏, 等. 6个元宝枫种仁含油率及脂肪酸组分分析[J]. 山东林业科技, 2024, 54(5): 66-70, 83. DOI: 10.3969/j.issn.1002-2724.2024.05.011. Cheng Tiantian, Xuan Jin, Chu Min, et al. Analysis of oil content and fatty acid fractions of six Acer truncatum seed kernels[J]. Journal of Shandong Forestry Science and Technology, 2024, 54(5): 66-70, 83. doi: 10.3969/j.issn.1002-2724.2024.05.011 [3] 王琨, 刘少波, 张娜, 等. 元宝枫研究进展[J]. 西北林学院学报, 2021, 36(3): 152-157, 280. DOI: 10.3969/j.issn.1001-7461.2021.03.23. Wang Kun, Liu Shaobo, Zhang Na, et al. Research progress on Acer truncatum[J]. Journal of Northwest Forestry University, 2021, 36(3): 152-157, 280. doi: 10.3969/j.issn.1001-7461.2021.03.23 [4] 魏晶晶, 赵善廷. 元宝枫有效成分及其应用研究进展[J]. 动物医学进展, 2021, 42(1): 100-105. DOI: 10.16437/j.cnki.1007-5038.2021.01.017. Wei Jingjing, Zhao Shanting. Progress on active ingredients and application of Acer truncatum Bunge[J]. Progress in Veterinary Medicine, 2021, 42(1): 100-105. doi: 10.16437/j.cnki.1007-5038.2021.01.017 [5] 梁丽, 靳涛, 田迎军. 元宝枫育苗技术及病虫害防治研究[J]. 种子科技, 2025, 43(14): 109-111. DOI: 10.19904/j.cnki.cn14-1160/s.2025.14.037. Liang Li, Jin Tao, Tian Yingjun. Study on seedling raising techniques and pest control of Acer truncatum[J]. Seed Science & Technology, 2025, 43(14): 109-111. doi: 10.19904/j.cnki.cn14-1160/s.2025.14.037 [6] 张辉专, 张学龙, 党兴国. 元宝枫育苗与造林技术应用[J]. 新农民, 2025(6): 110-112. Zhang Huizhuan, Zhang Xuelong, Dang Xingguo. Application of seedling raising and afforestation technology of Acer truncatum[J]. New Farmers, 2025 (6): 110-112. [7] 李超. 霍州七里峪元宝枫良种育苗技术研究[J]. 园艺与种苗, 2025, 45(3): 28-30. DOI: 10.16530/j.cnki.cn21-1574/s.2025.03.011. Li Chao. Study on seedling technology of Acer truncatum in Qiliyu of Huozhou[J]. Horticulture & Seed, 2025, 45(3): 28-30. doi: 10.16530/j.cnki.cn21-1574/s.2025.03.011 [8] 王学文, 于存. 元宝枫翅果褐斑病病原鉴定、生物学特性及室内药剂毒力测定[J]. 植物病理学报, 2024, 54(1): 26-35. DOI: 10.13926/j.cnki.apps.001616. Wang Xuewen, Yu Cun. Identification and biological characterization of the pathogen causing brown spot on samara of Acer truncatum Bunge and screening of effective fungicides[J]. Acta Phytopathologica Sinica, 2024, 54(1): 26-35. doi: 10.13926/j.cnki.apps.001616 [9] Woudenberg J H C, Seidl M F, Groenewald J Z, et al. Alternaria section Alternaria: species, formae speciales or pathotypes?[J]. Studies in Mycology, 2015, 82: 1-21. DOI: 10.1016/j.simyco.2015.07.001. [10] Hong S G, Cramer R A, Lawrence C B, et al. Alt a1 allergen homologs from Alternaria and related taxa: analysis of phylogenetic content and secondary structure[J]. Fungal Genetics and Biology, 2005, 42(2): 119-129. DOI: 10.1016/j.fgb.2004.10.009. [11] Andrew M, Peever T L, Pryor B M. An expanded multilocus phylogeny does not resolve morphological species within the small-spored Alternaria species complex[J]. Mycologia, 2009, 101(1): 95-109. DOI: 10.3852/08-135. [12] Berbee M L, Pirseyedi M, Hubbard S. Cochliobolus phylogenetics and the origin of known, highly virulent pathogens, inferred from ITS and glyceraldehyde-3-phosphate dehydrogenase gene sequences[J]. Mycologia, 1999, 91(6): 964-977. DOI: 10.1080/00275514.1999.12061106. [13] de Hoog G S, van den Ende A H G G. Molecular diagnostics of clinical strains of filamentous Basidiomycetes[J]. Mycoses, 1998, 41 (5/6): 183-189. DOI: 10.1111/j.1439-0507.1998.tb00321.x. [14] White T J, Bruns T, Lee S, et al. Amplification and direct sequencing of fungal ribosomal RNA genes for phylogenetics[M]//Innis M A, Gelfand D H, Sninsky J J, et al. PCR protocols. SanDiego: Academic Press, 1989: 315-322. DOI: 10.1016/b978-0-12-372180-8.50042-1. [15] Sung G H, Sung J M, Hywel-Jones N L, et al. A multi-gene phylogeny of Clavicipitaceae (Ascomycota, Fungi): identification of localized incongruence using a combinational bootstrap approach[J]. Molecular Phylogenetics and Evolution, 2007, 44(3): 1204-1223. DOI: 10.1016/j.ympev.2007.03.011. [16] Liu Y J, Whelen S, Hall B D. Phylogenetic relationships among ascomycetes: evidence from an RNA polymerse Ⅱ subunit [J]. Molecular Biology and Evolution, 1999, 16(12): 1799-1808. DOI: 10.1093/oxfordjournals.molbev.a026092. [17] Carbone I, Kohn L M. A method for designing primer sets for speciation studies in filamentous ascomycetes[J]. Mycologia, 1999, 91(3): 553-556. DOI: 10.1080/00275514.1999.12061051. [18] Hou L W, Groenewald J Z, Pfenning L H, et al. The Phoma-like dilemma[J]. Studies in Mycology, 2020, 96: 309-396. DOI: 10.1016/j.simyco.2020.05.001. [19] Vilgalys R, Hester M. Rapid genetic identification and mapping of enzymatically amplified ribosomal DNA from several Cryptococcus species[J]. Journal of Bacteriology, 1990, 172(8): 4238-4246. DOI: 10.1128/jb.172.8.4238-4246.1990. [20] Rehner S A, Samuels G J. Taxonomy and phylogeny of Gliocladium analysed from nuclear large subunit ribosomal DNA sequences[J]. Mycological Research, 1994, 98(6): 625-634. DOI: 10.1016/S0953-7562(09)80409-7. [21] Woudenberg J H C, Aveskamp M M, de Gruyter J, et al. Multiple Didymella teleomorphs are linked to the Phoma clematidina morphotype[J]. Persoonia Molecular Phylogeny and Evolution of Fungi, 2009, 22(1): 56-62. DOI: 10.3767/003158509x427808. [22] Minh B Q, Schmidt H A, Chernomor O, et al. IQ-TREE 2: new models and efficient methods for phylogenetic inference in the genomic era[J]. Molecular Biology and Evolution, 2020, 37(5): 1530-1534. DOI: 10.1093/molbev/msaa015. [23] Swofford D L. PAUP*: phylogenetic analysis using parsimony (and other methods) [M]. Sunderland, Massachusetts: Sinauer Associates, 1998. [24] Nylander J A A. MrModeltest v2. Program distributed by the author[M]. Uppsala: Evolutionary Biology Centre, Uppsala University, 2004. [25] Huelsenbeck J P, Ronquist F, Nielsen R, et al. Bayesian inference of phylogeny and its impact on evolutionary biology[J]. Science, 2001, 294(5550): 2310-2314. DOI: 10.1126/science.1065889. [26] Ronquist F, Huelsenbeck J P. MrBayes 3: Bayesian phylogenetic inference under mixed models[J]. Bioinformatics, 2003, 19(12): 1572-1574. DOI: 10.1093/bioinformatics/btg180. [27] 苏海川, 陈泽源, 李冠龙, 等. 茄子叶斑病病原的分离鉴定及防控研究[J]. 河南科技学院学报(自然科学版), 2025, 53(6): 28-34. DOI: 10.3969/j.issn.2096-9473.2025.06.004. Su Haichuan, Chen Zeyuan, Li Guanlong, et al. Study of isolation, identification of the pathogen of eggplant leaf spot and its chemical control [J]. Journal of Henan Institute of Science and Technology (Natural Sciences Edition), 2025, 53(6): 28-34. doi: 10.3969/j.issn.2096-9473.2025.06.004 [28] 何姣, 李宁, 黄金华, 等. 杉木梢枯病相关的链格孢属一新种[J]. 树木医学, 2025, 2(4): 30-41. DOI: 10.3969/j.issn.1004-4183.2025.10.028. He Jiao, Li Ning, Huang Jinhua, et al. A novel species of Alternaria associated with Chinese fir shoot blight [J]. Tree Health, 2025, 2(4): 30-41. doi: 10.3969/j.issn.1004-4183.2025.10.028 [29] 赵恒, 辛国, 秦楷, 等. 陇南核桃黑斑病病原链格孢菌农药敏感性测定[J]. 西北园艺, 2025(10): 65-67. Zhao Heng, Xin Guo, Qin Kai, et al. Determination of pesticide sensitivity of Alternaria alternata, the pathogen of walnut black spot in Longnan[J]. Northwest Horticulture, 2025(10): 65-67. [30] 陈慧杰, 毛俊丹, 邓喆, 等. 绣球花叶枯病病原菌鉴定、生物学特性及杀菌剂室内毒力测定[J]. 江苏农业学报, 2025, 41(8): 1499-1507. DOI: 10.3969/j.issn.1000-4440.2025.08.006. Chen Huijie, Mao Jundan, Deng Zhe, et al. Identification and biological characterization of the pathogen causing leaf blight on Hydrangea macrophylla and in vitro toxicity bioassay of fungicides[J]. Jiangsu Journal of Agricultural Sciences, 2025, 41(8): 1499-1507. doi: 10.3969/j.issn.1000-4440.2025.08.006 [31] 焦宁, 张哲, 王婧妍, 等. 引起北京古侧柏叶枯病的四种链格孢属真菌[J]. 菌物学报, 2025, 44(9): 4-18. DOI: 10.13346/j.mycosystema.250085. Jiao Ning, Zhang Zhe, Wang Jingyan, et al. Four Alternaria species causing leaf blight of ancient Platycladus orientalis in Beijing[J]. Mycosystema, 2025, 44(9): 4-18. doi: 10.13346/j.mycosystema.250085 [32] Woudenberg J H C, Groenewald J Z, Binder M, et al. Alternaria redefined[J]. Studies in Mycology, 2013, 75: 171-212. DOI: 10.3114/sim0015. [33] Crous P W, Costa M M, Kandemir H, et al. Fungal planet description sheets: 1550-1613[J]. Persoonia-Molecular Phylogeny and Evolution of Fungi, 2023, 51(1): 280-417. DOI: 10.3767/persoonia.2023.51.08. [34] Lin L P, Han S P, Yang X Z, et al. First report of Vacuiphoma oculihominis causing fruit rot on navel orange (Citrus sinensisi) in China[J]. Plant Disease, 2024, 108(4): 1096. DOI: 10.1094/PDIS-09-23-1970-PDN.
