
Seasonal differentiation in dietary composition of Przewalskium albirostris in Subei Alpine Meadow: an empirical study based on fecal DNA metabarcoding
-
摘要:
为揭示祁连山国家公园肃北片区白唇鹿(
Przewalskium albirostris )食性组成的季节性变化及其对高寒环境的适应机制,本研究于2024年冬、秋2个季节采集研究区域内白唇鹿粪便样本18份,利用叶绿体基因ribulose-1,5-bisphosphate carboxylase/oxygenase large subunit(rbcL)区域的脱氧核糖核酸(DNA)宏条形码技术解析其植物性食物组成。结果表明,白唇鹿食性呈显著季节性分异,冬季食性复杂,涵盖6纲22目30科48属50种、单样本平均39属,其中:蔷薇科(Rosaceae)和禾本科(Poaceae)占据优势,分别占比27.71%和16.29%;属级别中委陵菜属(Potentilla )和禾本科某属是属级别最关键食物,分别占比18.60%和11.03%。秋季食性则简化为5纲9目11科19属19种、单样本平均11属,其中:禾本科(Poaceae)和蔷薇科(Rosaceae)占据优势,分别占比44.43%和21.06%;属级别中禾本科某属和金露梅属(Dasiphora )是属级别最关键的食物,占比分别为44.07%和19.61%。白唇鹿通过“冬季食谱拓宽、秋季食谱简化”的食性分化来应对高寒草甸资源的季节性波动。据此,本研究提出了针对性的管理建议,为祁连山国家公园濒危物种保护与草畜平衡管理提供科学依据。Abstract:To investigate the seasonal variation in diet composition of the white-lipped deer (
Przewalskium albirostris ) in the alpine environment of the Subei area of Qilian Mountain National Park and to understand its adaptive foraging strategies, we collected 18 fecal samples during the winter and autumn of 2024. Plant-derived dietary components were identified using deoxyribonucleic acid (DNA) metabarcoding targeting the chloroplast ribulose-1, 5-bisphosphate carboxylase/oxygenase large subunit (rbcL) region. The results revealed pronounced seasonal differentiation in diet composition. In winter, the deer exhibited a broadened and complex diet, comprising 50 species from 48 genera, 30 families, 22 orders and 6 classes, with an average of 39 genera detected per sample. At the family level, Rosaceae and Poaceae were dominant, accounting for 27.71% and 16.29% of the total relative abundance, respectively. At the genus level,Potentilla and an unidentified genus of Poaceae were the most important food resources, representing 18.60% and 11.03% of the total relative abundance, respectively. In contrast, the autumn diet was markedly simplified, comprising 19 species from 19 genera, 11 families, 9 orders and 5 classes, with an average of 11 genera per sample. Poaceae and Rosaceae remained dominant, accounting for 44.43% and 21.06%, respectively. At the genus level, an unidentified genus of Poaceae andDasiphora were the key dietary components, accounting for 44.07% and 19.61%, respectively. These results demonstrate that white-lipped deer adopt a "winter diet-broadening and autumn diet-narrowing" strategy to cope with the seasonal fluctuations of alpine meadow resources. Based on these findings, we propose targeted management recommendations to support endangered species conservation and grassland-herbivore balance within Qilian Mountain National Park. -
0. 引言
白唇鹿(Przewalskium albirostris)作为青藏高原特有的国家一级重点保护动物,在高寒草甸生态系统的能量流动及物质循环过程中具有重要生态功能。近年来,随着气候变暖和放牧强度增加,高寒草甸生产力呈显著季节性波动,白唇鹿正面临冬季食物匮乏与栖息地退化的双重压力。现有研究表明,鹿科动物食性存在显著季节分异[1],贺兰山马鹿(Cervus elaphus)冬季依赖乔灌木[2],而西藏马鹿(Cervus canadensis wallichi)在资源匮乏期转向草本植物[3]。然而,关于白唇鹿的相关研究虽揭示其广食性特征[4],但其跨季节的食性分异模式、关键食物类群的季节性依赖以及对资源波动的响应机制仍缺乏系统化、精细化的量化研究。传统食性分析方法主要基于植物显微特征或植被组成推断,难以实现属级或种级的准确鉴定,且易受样本形态退化与观察经验限制。随着脱氧核糖核酸(deoxyribonucleic acid,DNA)宏条形码技术的发展,该方法凭借高通量、多物种同步鉴定和高灵敏度等优势,已成为解析野生动物的植物性食物组成的重要手段[5]。该技术能够从复杂粪便样本中可靠重建真实的食物组成,如Sun等[6]利用宏条形码技术解析梅花鹿亚种食物组成,揭示其对主要植物类群的季节性选择。通过比较ribulose-1,5-bisphosphate carboxylase/oxygenase large subunit(rbcL)和叶绿体转运核糖核酸-Leu基因内含子(transfer RNA-Leu intron,trnL)条形码片段的鉴定性能,表明trnL在粪便样本中具有更高的灵敏度[7];而rbcL mini-barcode在鹿类食性解析中更具有效性[8],这些研究证实宏条形码能够显著提升鹿科动物食性的分类解析能力。现有研究在跨季节尺度的关键类群依赖、属级多样性与均匀度等结构指标的深入量化仍较为不足;而关于白唇鹿的研究尤其缺乏基于分子证据的跨季节、精细尺度的系统比较。基于此,本研究利用肃北地区白唇鹿秋、冬季粪便样本的rbcL宏条形码数据,比较不同季节的食物组成、优势类群及属级均匀度指数,以探讨白唇鹿是否通过“食谱拓宽或简化”等策略应对高寒草甸资源的季节性变化,为其栖息地保护与草地生态系统管理提供科学依据。
1. 研究方法
1.1 研究区概况与样品采集
甘肃省肃北县盐池湾国家级自然保护区位于祁连山国家公园肃北片区,坐标39°15′N,96°48′E,海拔为3 200~3 500 m,属于高寒草甸生态系统,该区域植被以垂穗披碱草(Elymus nutans)和金露梅(Dasiphora fruticosa)等高寒草甸优势植物为主。秋季生长季末期,草本植物地上生物量较高,可食植物资源相对丰富;冬季受低温和积雪覆盖影响,草本植物凋萎,地上生物量显著降低,白唇鹿可利用的食物资源明显受限,仅取食部分灌木及残存枯草。
为确保白唇鹿主要活动区域采集粪便样本的独立性,避免重复采集同一只个体的粪便,遵循以下原则采样:(1)空间间隔,相邻2个采样点间距$ \ge $500 m,并扩大在开阔草甸地带的采样间距;(2)新鲜度判断,仅采集表面湿润、外形完整、气味新鲜的粪便(通常为24~48 h内排出);(3)集群规避,在发现多个粪便聚集的情况下,仅从中采集1~2份最具代表性的新鲜样本。遵循上述原则,研究团队于2024年1月(冬季)在盐池湾国家级自然保护区内沿固定巡护路线采集了8份粪便样本,作为冬季样本;随后,在2024年9月底至10月初(秋季),在同一区域再次采集了10份白唇鹿粪便样本,作为秋季样本。所有粪便样本均冷冻保存,待测。
1.2 测序方法
本研究委托北京百迈客生物科技有限公司完成植物DNA扩增与高通量测序。根据检测报告,植物来源的DNA扩增采用叶绿体基因rbcL区域,使用特异性引物F和R,对应序列为CTTACCAGYCT TGATCGTTACAAAGG和GTAAAATCAAGTCCA CCRCG,定向扩增粪便样品中植物DNA。扩增产物经纯化、定量和均一化处理后构建文库,并使用Illumina NovaSeq 6000平台进行双末端测序(paired-end sequencing,PE),以获取用于植物分类鉴定的序列数据。测序序列(reads)经标准流程进行拼接、过滤与去噪处理,并基于序列特征进行植物分类群注释与相对丰度分析。鉴于粪便DNA宏条形码分析对外源污染高度敏感,样品处理、DNA提取及PCR扩增过程均由百迈客公司在物理隔离的实验区域内完成。DNA提取和PCR扩增过程中均设置阴性对照(无模板对照),用于监测潜在的环境污染和交叉污染。后续生物信息学分析中,过滤低丰度序列(测序序列数 < 2),以进一步降低背景噪声和潜在污染序列对结果的影响。
1.3 建库测序流程
在提取样本总DNA后,依据rbcL区域设计的特异性引物进行植物DNA的聚合酶链式反应(polymerase chain reaction,PCR)扩增。扩增产物经纯化、定量与均一化后用于建库,文库经Agilent或相关平台品质检测,通过质检后在Illumina NovaSeq 6000平台上进行高通量测序。测序过程中生成的原始图像文件经碱基识别转换为FASTQ格式的原始测序序列(raw reads)。原始序列包含测序碱基和品质值,为后续生物信息分析提供基础数据。
1.4 数据处理
首先使用Trimmomatic v0.33品质过滤原始序列测序数据,以去除低品质序列;随后使用Cutadapt 1.9.1去除引物序列以获得高品质测序序列(clean reads)。使用QIIME2 2020.6平台中DADA2管道对高品质测序序列去噪处理、双端序列拼接、错误模型校正和嵌合体移除,获得高品质、非嵌合体的扩增子序列变异体(amplicon sequence variant,ASV),ASV表示了真实存在的生物学序列,可以在单核苷酸的精度上区分序列之间的差异,能够实现样本中真实物种的鉴定。后续统一采用ASV作为基本分析单元。ASV能够在单核苷酸分辨率上区分序列差异,有助于提高食性分析的分类精度。
分类学注释基于FunGene rbcL植物参考数据库,使用朴素贝叶斯分类器对特征序列分类学注释,可得到每个特征对应的物种分类信息,进而在各水平,包括门(phylum)、纲(class)、目(order)、科(family)、属(genus)和种(species),统计各样品群落组成。在白唇鹿食物物种分析中,因内转录间隔区(internal transcribed spacer,ITS)序列数据库覆盖不全,导致个别植物属级未定,对于无法注释至属级的ASV,仅保留其可识别的最高分类层级,并以“未识别+科名”的方式标注(如unidentified Poaceae),以避免分类不确定性对结果解释的干扰。
食性相对丰度按样本内各植物类群ASV的测序序列数计算为
$$ {R}_{i,j}=\frac{{N}_{i,j}}{{\sum }_{k=1}^{n}{N}_{k,j}} \text{,} $$ 式中:Ri,j表示样本j中植物类群$ i $的相对丰度;Ni,j表示样本j中植物类群i的ASV测序序列数;$ {\sum }_{k=1}^{n}{N}_{k,j} $表示样本j中全部植物ASV测序序列数之和;n为该样本中植物类群总数, k=1, 2, 3, …, n。
最终获得门、纲、目、科、属和种共6个层级的食物组成及丰度分布,进而统计各季节食物类群的数量(纲、目、科、属和种数)及单样本平均属数。科级、属级优势类群占比均通过上述相对丰度公式计算后,按占比从高到低排序确定。本研究中科级与属级相对丰度主要用于刻画白唇鹿在季节尺度上的总体食物组成格局,考虑到样本量有限及样品间ASV组成差异较大,未对所有分类单元计算样品层面的均值与标准差,而采用箱线图方式展示属级相对丰度的分布特征,以反映样品间差异。
1.5 植物属级相对丰度箱线图分析
基于属级相对丰度计算结果绘制其箱线图,直观展示白唇鹿冬季与秋季的植物食谱差异。箱线图的箱体显示四分位距(interquartile range,IQR),须线(whiskers)表示1.5×IQR的范围,超出该范围的点视为离群值并单独标注。通过箱线图直观呈现冬、秋季属级相对丰度的分布差异及样本间变异情况,为分析白唇鹿季节性食性选择提供可视化依据。
1.6 统计学数据分析
数据以x±s形式表示。为比较白唇鹿不同季节的食物组成差异,对粪便样品中获得的植物ASV分类学注释,并在科级和属级水平统计各分类单元的相对丰度。基于ASV测序序列数计算相对丰度。具体而言,在季节尺度上将同一季节内所有样品的序列合并,计算各植物类群序列数占该季节植物序列总数的比例,以获得总体相对丰度,用于反映白唇鹿在不同季节对各植物类群的整体利用格局。同时,为描述样品间的变异程度,在单个样品尺度上计算各分类单元的相对丰度。
为评估不同季节食物组成的多样性,在属水平计算食物组成的Shannon-Wiener多样性指数(H'),用于衡量食物组成的丰富度与均匀度,计算公式为
$$ H^{\prime}=-\sum\limits_{i=1}^S p_i \ln p_i, $$ 式中:pi为第i个植物属在样品中的相对丰度;S为检测到的植物属数。
为检验不同季节之间食物多样性的差异,采用Mann-Whitney U检验比较冬季与秋季样本的属水平Shannon-Wiener指数。该方法为非参数检验,适用于样本量较小且不满足正态分布假设的数据。所有统计分析均在显著性水平α=0.05下进行,P < 0.05表示差异显著,P < 0.001表示差异极显著。
为评估当前采样量对白唇鹿食性组成多样性估计的充分性,本研究计算了样本覆盖度(sample coverage),用于衡量样本中已被观测到的类群在群落总体中的代表程度。样本覆盖度计算公式为
$$ C=1–\frac{{F}_{1}}{N} \text{,} $$ 式中:C为样本覆盖度;F1为仅出现1次的类群数(singletons);N为样本中的序列总数。C越接近1,说明当前采样量能够覆盖群落中绝大多数类群。
2. 实验结果
2.1 测序数据品质评估
共采集18份粪便样本,冬季粪便样本编号为B01~B08,共8份;秋季编号为B101~B110,共10份。委托北京百迈客生物科技有限公司完成叶绿体rbcL区域高通量测序,所有样本测序数据品质优异,冬季样本原始测序序列数为79 900~80 028条,经质控后获得71 799~75 357条高品质测序序列,去噪、拼接及去嵌合体后,最终有效序列(non-chimeric reads)为24 126~45 478条;秋季样本原始测序序列数为74 120~80 090条,高品质测序序列数为65 201~70 442条,最终有效序列为32 709~57 726条。
冬季和秋季样本覆盖度分别为0.999 99和0.999 97,所有样本coverage指数均≥0.999 7,均接近1,说明采样量已覆盖群落中绝大多数食物类群,测序深度充分,能较好地反映白唇鹿食性组成特征。
2.2 白唇鹿食物组成的分类阶元特征
基于FunGene rbcL植物参考数据库的分类学注释显示,白唇鹿的食物组成完全来源于被子植物门(Angiospermae)。在剔除未能注释至物种层级的序列后,白唇鹿的食性具有高度的物种丰富度和分类阶元跨度,其取食对象覆盖了被子植物门下多个不同层级的植物类群(表 1)。在所有样本中,鉴定出的植物类群在分类学上表现出广泛的多样性, 纲、目、科、属和种的数量范围分别为3~6纲、6~22目、6~30科、7~48属和7~50种。冬季白唇鹿食性复杂,涵盖6纲22目30科48属50种,单样本平均检出39属,ASV数量范围为192~322个,8份冬季粪便样品对应的ASV数量分别为203、262、322、274、267、299、287和192个;秋季白唇鹿食性则简化为5纲9目11科19属19种,单样本平均检出11属,ASV数量范围为21~39个,10份秋季粪便样品的ASV数量分别为23、37、33、28、34、21、26、31、29和39个。ASV数量反映的是样本中检测到的序列多样性水平,而非实际摄食植物物种数量,其结果可能受到环境DNA、PCR扩增效率及样本量等因素的影响。冬季样本中检测到的ASV数量明显高于秋季样本,冬季粪便样本中植物DNA序列组成更为复杂。在剔除低丰度及非植物来源序列后,最终在冬季、秋季粪样中获得了2 407个植物ASV,用于后续的食性组成分析。
表 1 白唇鹿粪便样品中植物性食物在不同分类阶元上的统计结果Table 1 statistical summary of plant diet composition at different taxonomic levels in white-lipped deer fecal samples样品 纲数 目数 科数 属数 种数 B01 5 16 23 36 40 B02 5 18 22 39 44 B03 6 16 22 36 39 B04 5 14 17 26 28 B05 6 22 30 48 50 B06 6 18 26 45 49 B07 5 17 25 42 48 B08 6 21 26 41 44 B101 4 7 7 7 7 B102 5 9 9 13 15 B103 5 8 11 19 19 B104 3 6 6 7 7 B105 5 7 7 9 9 B106 4 6 7 8 8 B107 5 7 7 10 10 B108 4 6 7 10 10 B109 5 7 8 9 9 B110 5 7 8 15 15 2.3 食物组成的季节差异
白唇鹿在冬季、秋季的食性组成在科级水平对比结果列于表 2。冬季食物组成的前5科为蔷薇科(Rosaceae)、禾本科(Poaceae)、豆科(Fabaceae)、千屈菜科(Lythraceae)和伞形科(Apiaceae),占比分别为27.71%、16.29%、7.26%、4.40%和2.93%,累计占比达58.59%。秋季对应前5科为禾本科、蔷薇科、苋科(Amaranthaceae)、豆科和石蒜科(Amaryllidaceae),占比分别为44.43%、21.06%、14.71%、13.34%和3.66%,累计占比高达97.20%。
表 2 白唇鹿在不同季节不同科食物成分对比Table 2 comparison of food composition of white-lipped deer by family in different seasons科 拉丁名 冬季/% 秋季/% 蔷薇科 Rosaceae 27.71±16.45 21.06±12.15 禾本科 Poaceae 16.29±5.95 44.43±19.13 豆科 Fabaceae 7.26±9.79 13.34±13.22 千屈菜科 Lythraceae 4.40±4.52 — 伞形科 Apiaceae 2.93±3.11 — 苋科 Amaranthaceae — 14.71±16.05 石蒜科 Amaryllidaceae — 3.66±4.61 其他 — 15.40±9.12 2.08±2.94 未识别 — 26.01±8.08 0.79±2.03 注:—为无数据。 白唇鹿在冬季、秋季的食性组成在属级水平的对比结果列于表 3。表中属级相对丰度为各季节内所有样品合并后基于ASV序列数计算的总体相对丰度,用以识别季节尺度上的优势植物属。冬季,白唇鹿采食的植物属更为多样,前5大优势属为委陵菜属(Potentilla sp.)、未识别禾本科A属、未识别蔷薇科A属、黄芪属(Astragalus sp.)和芦苇属(Phragmites sp.),比例分别为18.60%、11.03%、7.76%、4.47%和4.28%,累计占比仅为46.14%。而秋季白唇鹿采食的植物属更为集中,前5大优势属为未识别禾本科A属、金露梅属(Dasiphora sp.)、豆属(Glycine sp.)、麻叶藜属(Chenopodium sp.)和葱属(Allium sp.),占比分别为44.07%、19.61%、13.23%、12.82%和3.66%,累计占比高达93.39%。
表 3 白唇鹿在不同季节不同属食物成分对比Table 3 comparison of food composition of white-lipped deer by genus in different seasons属 拉丁名 冬季/% 秋季/% 委陵菜属 Potentilla sp. 18.60 1.46 未识别禾本科A属a Unidentified Poaceae genus A 11.03 44.07 未识别蔷薇科A属a Unidentified Rosaceae genus A 7.76 — 黄芪属 Astragalus sp. 4.47 — 芦苇属 Phragmites sp. 4.28 — 柳叶菜属 Epilobium sp. 4.25 — 未识别伞形科A属a Unidentified Apiaceae genus A 2.88 0.93 柳属 Salix sp. 2.70 — 驴食豆属 Onobrychis sp. 2.23 — 蒿属 Artemisia sp. 2.14 — 山芥属 Barbarea sp. 1.85 — 鼠李属 Rhamnus sp. 1.71 — 金露梅属 Dasiphora sp. 1.13 19.61 豆属 Glycine sp. — 13.23 麻叶藜属 Chenopodium sp. — 12.82 葱属 Allium sp. — 3.66 未识别苋科A属a Unidentified Amaranthaceae genus A — 1.86 薹草属 Carex sp. — 0.62 针茅属 Stipa sp. — 0.27 车前属 Plantago sp. — 0.18 未识别菊科A属a Unidentified Asteraceae genus A — 0.13 其他 — 8.97 0.44 未识别 — 26.00 0.72 注:a表示该类群未能注释至属级,仅能确定至科水平。 食物丰度在属水平的Shannon-Wiener指数表明,冬季H'=2.360,秋季H'=1.531,表明白唇鹿在食物匮乏的冬季采取广谱取食策略,在资源丰富的秋季则集中取食少数高品质植物。对18个样本的Mann-Whitney U检验表明,白唇鹿冬季食性组成属水平香农多样性指数显著高于秋季(U=4.0,P < 0.001)。
基于白唇鹿冬季与秋季采食植物属水平相对丰度及离散程度如图 1所示,其特异性资源利用呈现显著的季节变化。冬季,采食植物属级中位相对丰度为4.25%,IQR为2.14%~8.97%,表明白唇鹿在冬季的取食谱较为分散,资源利用更为均衡;秋季,采食植物属级中位相对丰度仅为1.20%,IQR为0.44%~12.82%,IQR明显增大,表明其秋季对少数高丰度植物属的依赖性更强,食谱结构趋于集中。
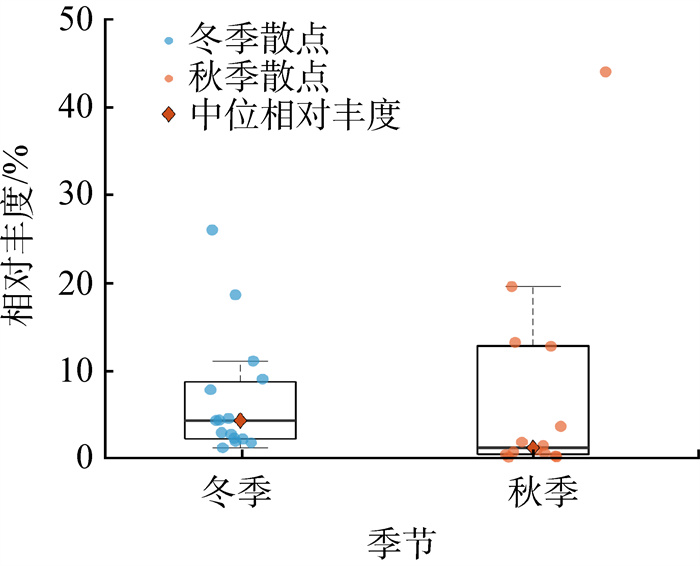 图 1 白唇鹿冬季与秋季采食植物属水平相对丰度分布箱线图Fig. 1 boxplot of the distribution of genus-level relative abundance of foraged plants by white-lipped deer in winter and autumn
 下载:
全尺寸图片
3. 讨论
本研究通过对祁连山国家公园肃北片区白唇鹿秋冬2季食性的系统分析,揭示了白唇鹿食性存在显著的季节性分异特征:冬季食物组成更为丰富,属级均匀度较高,呈现“冬季食谱拓宽”分布格局,主要依赖蔷薇科、禾本科和豆科植物,其中属级以委陵菜属、未识别禾本科和未识别蔷薇科为主;秋季则转变为高度集中的“秋季食谱简化”模式,禾本科占据绝对优势,蔷薇科保持稳定贡献,苋科作为高优质蛋白质草本[9]成为季节特化资源,属级表现为未识别禾本科、金露梅属和豆属主导。
与传统的显微组织学分析和直接观察法相比,DNA宏条形码技术在解析粪便样本中植物食物组成方面表现出更高的分辨率和灵敏度,能够有效识别高降解样本中的多级分类单元,从而为揭示白唇鹿精细化的季节性取食策略提供了分子层面的证据支持。然而,本研究样本量有限,可能对低频食物类群的检出率以及个体间食性差异的刻画产生一定影响。此外,rbcL区域在部分植物类群中的分辨率受限,以及高寒草甸植物参考数据库的不完善,亦可能导致部分序列未能注释至属级或种级。未来结合多标记宏条形码技术并构建区域性植物参考数据库,将有助于进一步提升白唇鹿食性研究的解析精度。从生态学角度看,白唇鹿的食性组成特点鲜明,主要依赖于草本植物资源。与同域分布的贺兰山马鹿主要依赖乔灌木、较少取食禾本科植物形成对比[1],白唇鹿对禾本科表现出高度依赖性,尤其在秋季禾本科相对丰富度高达44.43%。这一特点与更高海拔地区的西藏马鹿[3, 10]及念青唐古拉山脉白唇鹿[4]的研究结果一致,共同揭示了白唇鹿作为高寒草甸特化物种,其食物种类虽具多样性,但对优质草本,尤其是禾本科牧草具有显著偏好。研究区域内白唇鹿采食的禾本科主要包括披碱草属(Elymus spp.)、早熟禾属(Poa spp.)、针茅属(Stipa spp.)和赖草属(Leymus spp.)等有蹄类喜食的优良牧草;该类牧草春季萌发,秋季叶量丰富、穗长、结实多,适口性良好,成为白唇鹿秋季的集中食物群类[11]。蔷薇科植物在食物组成中占比稳定,冬季和秋季食物成分占比为27.71%和21.06%,研究区域内白唇鹿采食的蔷薇科主要为小叶金露梅(Dasiphora parvifolia)、委陵菜属和毛莓草属(Sibbaldianthe spp.)等灌木或多年生草本。其属级优势种由冬季的委陵菜属更替为秋季的金露梅属,这些植物地上部分在秋冬季节相对稳定,可持续为白唇鹿提供可利用的生物量,使得蔷薇科成为跨季节的关键资源。豆科植物作为重要的蛋白质来源持续存在,冬季和秋季食物成分占比为7.26%和13.34%,其属级由冬季的驴食豆属向秋季的豆属更替,体现了蛋白质获取策略的持续性及食物的季节性调整。
白唇鹿食物组成中特异性资源的季节性更替呈现从“冬季食谱拓宽”到“秋季食谱简化”的转变,反映了白唇鹿应对高寒环境资源波动的适应性策略[12]。与传统生态学观察中“广食性动物在资源匮乏期拓宽食谱”的经典理论[13]相符,本研究通过分子数据定量验证了这一策略在白唇鹿中的具体体现,并进一步以统计分析验证:秋季锁定高生产力禾草实现能量摄入最大化,冬季则通过拓宽食谱以应对资源匮乏,降低生存风险,这是白唇鹿对不同季节环境条件的适应性选择,是生态系统内生物与环境长期相互作用的结果。此外,有研究表明,白唇鹿肠道微生物群的组成、多样性和群落结构均呈现显著的季节性变化[14],这可解释其季节性食物的变化,也是其食性季节性差异的进化响应。
基于上述分析,特提出以下关键管理建议:(1)建立“禾本科核心保护区”并实施季节性草地管理。鉴于禾本科作为白唇鹿核心能量来源的关键作用,在秋季禾本科丰度超44.43%的区域划定不低于栖息地20%面积的“禾本科核心保护区”[15],实施季节性休牧,保障禾本科结实期的生长和能量储备[16]。禾本科作为高寒草甸建群种,其根系网络可固土防蚀,白唇鹿的适度取食通过解除顶端优势和资源再分配刺激禾草分蘖再生,形成生产力正向反馈[17]。基于此,过度放牧会导致禾本科植物(如针茅属)衰退,进而使白唇鹿在秋季的食性变得单一,或会加剧种群波动风险。对因过度放牧导致禾本科衰退的区域,需采取补播优质禾草和围栏封育等措施促进恢复,维持其生物量和在白唇鹿秋季食谱中的主导地位[18]。(2)开展冬季精准补饲与越冬期生境调控。针对冬季食物短缺导致的食谱拓宽,应在草甸植被覆盖率低于30%[19]或极端气候预警时,在关键越冬区域启动精准补饲,如盐池湾保护区海拔为3 200~3 500 m,拓宽白唇鹿冬季的觅食区域,缓解草本层的生态压力[20]。补饲方案应模拟其冬季食性特点,以高纤维为主,如委陵菜属干草、抗寒禾草干料,并适当添加高蛋白豆科成分,如黄芪属、驴食豆属粉末,以弥补冬季天然食物中豆科蛋白的不足[21]。补饲点应分散设置,并考虑全球山地鹿科动物,如梅花鹿(Cervus nippon)[22]、原麝(Moschus moschiferus)[23]、马鹿(Cervus elaphus)和麋鹿(Cervus canadensis)[24]等,普遍遵循季节性垂直迁移规律(seasonal vertical migration),即冬季倾向于向低海拔区域移动以规避严寒胁迫,应显著加强对岩羊、藏野驴等同域分布有蹄类活动频繁的低海拔区域的补饲力度,缓解多物种间的冬季食物竞争。同时,加强对白唇鹿食物组成及其季节变化的持续监测,重点关注禾本科、委陵菜属等关键类群丰度变化,为评估补饲效果和草地管理成效提供科学支撑[25]。
4. 结论
本研究系统揭示了祁连山国家公园肃北片区内的白唇鹿在高寒草甸的植物性食物组成存在“冬季食谱拓宽、秋季食谱简化”显著季节性差异。冬季通过扩大可利用植物类群形成“食谱拓宽”模式,秋季则依赖高丰度、高品质资源表现为“食谱简化”模式。这一取食策略体现了白唇鹿对高寒草甸季节性资源波动的适应机制。研究结果不仅为理解其生态策略提供重要证据,也为栖息地管理、冬季补饲策略和国家公园草畜平衡管理提供科学依据。
© The editorial department of Journal of Capital Normal University (Natural Science Edition) 2025.This is an open access article under the CC BY-NC-ND 4.0 license (https://creativecommons.org/licenses/by-nc-nd/4.0/). -
图 1 白唇鹿冬季与秋季采食植物属水平相对丰度分布箱线图
Fig. 1 boxplot of the distribution of genus-level relative abundance of foraged plants by white-lipped deer in winter and autumn
下载:
全尺寸图片
表 1 白唇鹿粪便样品中植物性食物在不同分类阶元上的统计结果
Table 1 statistical summary of plant diet composition at different taxonomic levels in white-lipped deer fecal samples
样品 纲数 目数 科数 属数 种数 B01 5 16 23 36 40 B02 5 18 22 39 44 B03 6 16 22 36 39 B04 5 14 17 26 28 B05 6 22 30 48 50 B06 6 18 26 45 49 B07 5 17 25 42 48 B08 6 21 26 41 44 B101 4 7 7 7 7 B102 5 9 9 13 15 B103 5 8 11 19 19 B104 3 6 6 7 7 B105 5 7 7 9 9 B106 4 6 7 8 8 B107 5 7 7 10 10 B108 4 6 7 10 10 B109 5 7 8 9 9 B110 5 7 8 15 15 表 2 白唇鹿在不同季节不同科食物成分对比
Table 2 comparison of food composition of white-lipped deer by family in different seasons
科 拉丁名 冬季/% 秋季/% 蔷薇科 Rosaceae 27.71±16.45 21.06±12.15 禾本科 Poaceae 16.29±5.95 44.43±19.13 豆科 Fabaceae 7.26±9.79 13.34±13.22 千屈菜科 Lythraceae 4.40±4.52 — 伞形科 Apiaceae 2.93±3.11 — 苋科 Amaranthaceae — 14.71±16.05 石蒜科 Amaryllidaceae — 3.66±4.61 其他 — 15.40±9.12 2.08±2.94 未识别 — 26.01±8.08 0.79±2.03 注:—为无数据。 表 3 白唇鹿在不同季节不同属食物成分对比
Table 3 comparison of food composition of white-lipped deer by genus in different seasons
属 拉丁名 冬季/% 秋季/% 委陵菜属 Potentilla sp. 18.60 1.46 未识别禾本科A属a Unidentified Poaceae genus A 11.03 44.07 未识别蔷薇科A属a Unidentified Rosaceae genus A 7.76 — 黄芪属 Astragalus sp. 4.47 — 芦苇属 Phragmites sp. 4.28 — 柳叶菜属 Epilobium sp. 4.25 — 未识别伞形科A属a Unidentified Apiaceae genus A 2.88 0.93 柳属 Salix sp. 2.70 — 驴食豆属 Onobrychis sp. 2.23 — 蒿属 Artemisia sp. 2.14 — 山芥属 Barbarea sp. 1.85 — 鼠李属 Rhamnus sp. 1.71 — 金露梅属 Dasiphora sp. 1.13 19.61 豆属 Glycine sp. — 13.23 麻叶藜属 Chenopodium sp. — 12.82 葱属 Allium sp. — 3.66 未识别苋科A属a Unidentified Amaranthaceae genus A — 1.86 薹草属 Carex sp. — 0.62 针茅属 Stipa sp. — 0.27 车前属 Plantago sp. — 0.18 未识别菊科A属a Unidentified Asteraceae genus A — 0.13 其他 — 8.97 0.44 未识别 — 26.00 0.72 注:a表示该类群未能注释至属级,仅能确定至科水平。 -
[1] Latham J, Staines B W, Gorman M L. Comparative feeding ecology of red (Cervus elaphus) and roe deer (Capreolus capreolus) in Scottish plantation forests[J]. Journal of Zoology, 1999, 247(3): 409-418. DOI: 10.1111/j.1469-7998.1999.tb01003.x. [2] 崔多英, 刘振生, 王小明, 等. 贺兰山马鹿冬季食性分析[J]. 动物学研究, 2007, 28(4): 383-388. DOI: 10.3321/j.issn:0254-5853.2007.04.007. Cui Duoying, Liu Zhensheng, Wang Xiaoming, et al. Winter food-habits of red deer (Cervus elaphus Alxaicus) in Helan Mountains, China[J]. Zoological Research, 2007, 28(4): 383-388. doi: 10.3321/j.issn:0254-5853.2007.04.007 [3] Liang X P, Wei K L, Li Q F, et al. Tibetan red deer (Cervus canadensis wallichi) diet composition patterns and associations during lean seasons in Tibet, China[J]. PeerJ, 2024, 12: e18614. DOI: 10.7717/peerj.18614. [4] Luo Z W, Pei C, Zhang H N, et al. Nutritional partitioning among sympatric ungulates in eastern Tibet[J]. Animals, 2024, 14(15): 2205. DOI: 10.3390/ani14152205. [5] da Silva L P, Mata V A, Lopes P B, et al. Advancing the integration of multi-marker metabarcoding data in dietary analysis of trophic generalists[J]. Molecular Ecology Resources, 2019, 19(6): 1420-1432. DOI: 10.1111/1755-0998.13060. [6] Sun X, Lü F Y, Hu X Q, et al. Geographical variation of diet composition of Cervus nippon kopschi in Jiangxi, China based on DNA metabarcoding[J]. Animals, 2025, 15(7): 940. DOI: 10.3390/ani15070940. [7] Mallott E K, Garber P A, Malhi R S. trnL outperforms rbcL as a DNA metabarcoding marker when compared with the observed plant component of the diet of wild white-faced capuchins (Cebus capucinus, Primates)[J]. PLoS One, 2018, 13(6): e0199556. DOI: 10.1371/journal. pone.0199556. [8] Erickson D L, Reed E, Ramachandran P, et al. Reconstructing a herbivore's diet using a novel rbcL DNA mini-barcode for plants[J]. AoB Plants, 2017, 9(3): plx015. DOI: 10.1093/aobpla/plx015. [9] 王建丽, 尤佳, 牟林林, 等. 苋属植物营养成分和应用价值研究进展[J]. 现代畜牧科技, 2023(6): 18-22. DOI: 10.19369/j.cnki.2095-9737.2023.06.005. Wang Jianli, You Jia, Mu Linlin, et al. Research progress on the nutritional componentsand application value of Amaranthus[J]. Modern Animal Husbandry Science & Technology, 2023(6): 18-22. doi: 10.19369/j.cnki.2095-9737.2023.06.005 [10] 吕忠海, 张玮琪, 刘浩, 等. 西藏马鹿与同域野生有蹄类、家畜草青期食性比较[J]. 应用生态学报, 2020, 31(2): 651-658. DOI: 10.13287/j.1001-9332.202002.002. Lü Zhonghai, Zhang Weiqi, Liu Hao, et al. Comparison on feeding habits of Cervus wallichii and sympatric ungulates and domestic animals in green grass period[J]. Chinese Journal of Applied Ecology, 2020, 31(2): 651-658. doi: 10.13287/j.1001-9332.202002.002 [11] Schaller G B. Chiru (Tibetan Antelope) [M] // Schaller G B. Wildlife of the Tibetan steppe. Chicago: University of Chicago Press, 1998: 41-45. [12] Mysterud A. Seasonal migration pattern and home range of roe deer (Capreolus capreolus) in an altitudinal gradient in southern Norway[J]. Journal of Zoology, 1999, 247(4): 479-486. DOI: 10.1111/j.1469-7998.1999.tb01011.x. [13] Llano C. On optimal use of a patchy environment: archaeobotany in the Argentinean Andes (Argentina)[J]. Journal of Archaeological Science, 2015, 54: 182-192. DOI: 10.1016/j.jas.2014.12.002. [14] You Z Q, Deng J, Liu J L, et al. Seasonal variations in the composition and diversity of gut microbiota in white-lipped deer (Cervus albirostris)[J]. PeerJ, 2022, 10: e13753. DOI: 10.7717/peerj.13753. [15] Miranda M, Cristóbal I, Díaz L, et al. Ecological effects of game management: does supplemental feeding affect herbivory pressure on native vegetation?[J]. Wildlife Research, 2015, 42(4): 353-361. DOI: 10.1071/wr15025. [16] Gan J H, Wang X L, Zhang G H. Impacts of the duration and intensity of grazing cycle on vegetation population dynamics in semi-arid ecosystems with seasonal succession[PP/OL]. V2. arXiv (2026-03-10)[2025-11-12]. https://doi.org/10.48550/arXiv.2508.09760. [17] McNaughton S J. Grazing as an optimization process: grass-ungulate relationships in the serengeti[J]. The American Naturalist, 1979, 113(5): 691-703. [18] Cooper S M, Owens M K, Cooper R M, et al. Effect of supplemental feeding on spatial distribution and browse utilization by white-tailed deer in semi-arid rangeland[J]. Journal of Arid Environments, 2006, 66(4): 716-726. DOI: 10.1016/j.jaridenv.2005.11.015. [19] 高清竹, 李玉娥, 林而达, 等. 藏北地区草地退化的时空分布特征[J]. 地理学报, 2005, 60(6): 965-973. DOI: 10.3321/j.issn: 0375-5444.2005.06.009. Gao Qingzhu, Li Yu'e, Lin Erda, et al. Temporal and spatial distribution of grassland degradation in northern Tibet[J]. Acta Geographica Sinica, 2005, 60(6): 965-973. doi: 10.3321/j.issn:0375-5444.2005.06.009 [20] Ratkiewicz M, Coissac E, Świsłocka M, et al. Winter diet overlap among moose, roe deer and red deer in coniferous and mixed forests depends on snow cover depth[J]. Forest Ecology and Management, 2024, 556: 121710. DOI: 10.1016/j.foreco.2024.121710. [21] Li B, Liang C B, Xu B, et al. Extreme winter environment dominates gut microbiota and metabolome of white-lipped deer[J]. Microbiological Research, 2025, 297: 128182. DOI: 10.1016/j.micres.2025.128182. [22] Yabe T, Takatsuki S. Migratory and sedentary behavior patterns of Sika deer in Honshu and Kyushu, Japan[M]//McCullough D R, Takatsuki S, Kaji K. Sika deer: biology and management of native and introduced populations. Tokyo: Springer, 2009: 273-283. [23] Jiang F, Zhang J J, Gao H M, et al. Musk deer (Moschus spp. ) face redistribution to higher elevations and latitudes under climate change in China[J]. Science of the Total Environment, 2020, 704: 135335. DOI: 10.1016/j.scitotenv.2019.135335. [24] Mumme S, Middleton A D, Ciucci P, et al. Wherever I may roam: human activity alters movements of red deer (Cervus elaphus) and elk (Cervus canadensis) across two continents[J]. Global Change Biology, 2023, 29(20): 5788-5801. DOI: 10.1111/gcb.16769. [25] Li R F, Wang D D, Cao Z M, et al. DNA metabarcoding reveals diet diversity and niche partitioning by two sympatric herbivores in summer[J]. PeerJ, 2024, 12: e18665. DOI: 10.7717/peerj.18665.
