
Actin-binding protein Villin 1 participates in ABA-induced stomatal closure in Arabidopsis
-
摘要:
为了探究微丝结合蛋白Villin 1(VLN1)在脱落酸(ABA)诱导气孔关闭中的作用,本文以拟南芥野生型和
vln1 突变体(vln1-1 和vln1-2 )为实验材料,通过反向遗传学的方法,从植株土壤干旱、离体叶片失水率以及气孔开度的药理学实验等方面观察了植株生理表型,并探讨VLN1在ABA诱导气孔关闭过程中的作用。实验结果表明,拟南芥在持续6周的土壤干旱胁迫后,与野生型相比,vln1-1 和vln1-2 突变体的存活率分别下降了13.33%和16.55%(t =-4.244和-6.634,P < 0.05);离体叶片失水率结果表明,与野生型相比,相同干燥条件下,180 min时vln1-1 和vln1-2 突变体叶片失水率高达46.17%和48.24%,叶片干瘪萎蔫更严重(t =2.438和2.561,P < 0.01);气孔开度实验中,50 μmol/L的ABA处理30 min,野生型气孔快速关闭,其平均气孔孔径大小较初始状态缩小了近44.98%,而突变体的气孔关闭程度仅有33.43%和35.56%,明显滞后于野生型(t =-24.051和-27.240,P < 0.05);微丝的特异性药物与ABA共同处理叶片结果表明,与ABA单独处理相比,微丝稳定剂Jas的加入可抑制ABA诱导的气孔关闭过程。相同条件下,野生型的气孔开度关闭被抑制了14.75%(t =-7.813,P < 0.01),2个突变体的抑制达到了16.70%和17.53%(t =-9.969和-11.251,P < 0.01),抑制程度更高,对微丝稳定剂更敏感;Lat B和ABA共同处理,野生型的平均气孔孔径大小比ABA单独处理又进一步显著缩小了14.25%(t =-7.717,P < 0.01),而2个突变体仅加剧关闭8.77%和9.52%(t =-4.315和-4.811,P < 0.01)。综合以上结果,初步表明微丝结合蛋白VLN1参与ABA诱导的气孔关闭信息传递途径,影响植株叶片的蒸腾失水及干旱耐受性。本研究为深入理解气孔运动调节机制及增强农作物抗旱性提供了新的角度和思路。-
关键词:
- 微丝结合蛋白VLN1 /
- 脱落酸 /
- 气孔关闭 /
- 保卫细胞 /
- 植物抗旱性
Abstract:To investigate the role of the actin-binding protein Villin 1(VLN1) in abscisic acid (ABA)-induced stomatal closure, this study utilized a reverse genetics approach with
Arabidopsis wild-type andvln1 mutants (vln1-1 andvln1-2 ). Plant physiological phenotypes were examined through soil drought stress trials, detached leaf water loss assays, and pharmacological experiments on stomatal aperture. Following six weeks of soil drought stress, the survival rates of thevln1-1 andvln1-2 mutants decreased significantly by 13.33% and 16.55%, respectively, compared to the wild-type (t =-4.244 and -6.634,P < 0.05). Detached leaf water loss results indicated that after 180 minutes of desiccation, the water loss rates of thevln1-1 andvln1-2 mutant leaves reached 46.17% and 48.24%, respectively, exhibiting more severe wilting than the wild-type under the same conditions (t =2.438 and 2.561,P < 0.01). In stomatal aperture experiments, treatment with 50 μmol/L ABA for 30 minutes triggered rapid stomatal closure in the wild-type, reducing the average stomatal aperture by nearly 44.98%. In contrast, the stomatal closure in the mutants was only 33.43% and 35.56%, markedly lagging behind the wild-type (t =-24.051 and -27.240,P < 0.05). Pharmacological experiments combining actin-specific drugs with ABA revealed that the application of jasplakinolide (Jas), an actin stabilizer, inhibited ABA-induced stomatal closure. Under the same conditions, stomatal closure in the wild-type was inhibited by 14.75% (t =-7.813,P < 0.01), while inhibition in the two mutants reached 16.70% and 17.53% (t =-9.969 and -11.251,P < 0.01), indicating a higher sensitivity to the actin stabilizer. Conversely, combined treatment with Latrunculin B (Lat B) and ABA further reduced the average stomatal aperture in the wild-type by 14.25% compared to ABA treatment alone (t =-7.717,P < 0.01), whereas the two mutants showed only an additional 8.77% and 9.52% reduction (t =-4.315 and -4.811,P < 0.01). Collectively, these findings suggest that VLN1 participates in the ABA signaling pathway that mediates stomatal closure, thereby influencing leaf transpirational water loss and drought tolerance. This study provides new perspectives and insights for understanding the regulatory mechanisms of stomatal movement and for enhancing the drought resistance of crops.-
Keywords:
- actin-binding protein VLN1 /
- ABA /
- stomatal closure /
- guard cells /
- plant drought tolerance
-
0. 引言
植物叶表面气孔复合体主要是由成对保卫细胞构成的结构,能够感应环境变化并调节开闭,从而调控光合作用中的碳同化与水分蒸腾[1],显著影响碳循环与水循环。成熟叶片的气孔不仅是胁迫信号的感知与转导中心,还在植物应对干旱胁迫中起到了至关重要的作用[2]。在水分胁迫下,气孔密度常显著增加,同时气孔也作为植物免疫的第一道防线,通过关闭以限制病原菌入侵[3]。
微丝,又称肌动蛋白纤维,作为细胞骨架的主要组分之一,为细胞提供机械支持,参与细胞内物质运输、细胞分裂及运动等多种生命过程。微丝结合蛋白在维持细胞形态、调控气孔运动中具有重要作用[4],尤其是在光信号、盐胁迫和生物胁迫等条件下,通过调节保卫细胞微丝的形态与动态,影响气孔开闭。脱落酸(abscisic acid,ABA)作为重要的逆境激素,在干旱等胁迫下积累并通过受体信号通路调控微丝结合蛋白的活性与表达,从而介导细胞结构重塑与气孔运动响应[5-6]。
现有研究表明气孔开放时,微丝呈辐射状径向排列,而关闭时则以纵向排列为主,显示微丝骨架的动态重构对气孔运动至关重要。已有研究揭示了多个微丝结合蛋白在气孔运动中的作用。例如:Ruzicka等[7]表明植物特异性肌动蛋白结合蛋白(stomatal closure-related actin-binding protein1,SCAB1)、肌动蛋白解聚因子(actin-depolymerizing factors,ADF)等通过调控肌动蛋白纤维的动态重组,参与ABA信号通路及干旱胁迫响应,影响气孔关闭过程;Zhang等[8]认为SCAB1通过促进微丝成束,维持其稳定性,其表达异常会导致气孔关闭延迟和干旱敏感表型;Dong等[9]和Tholl等[10]表明ADF蛋白家族在进化中功能出现分化,其中,ADF5和ADF9以帮助微丝成束取代了家族成员保守的切割和解聚微丝的活性;Qian等[11]证实拟南芥(Arabidopsis)中ADF5受到ABA诱导,通过微丝捆绑活性调控气孔关闭,显著影响植株的抗旱性。
Villins(VLNs)是一种特殊的微丝结合蛋白家族,可促进微丝成束[12],在植物中高度保守。如有丝分裂原活化蛋白激酶3/6(mitogen-activated protein kinase,MPK3/MPK6)对VLN3的磷酸化调节肌动蛋白重塑以激活拟南芥中的气孔防御,进而限制细菌感染[13]。通过免疫荧光蛋白等技术可确定VLN1定位于细胞质与细胞骨架上[14]。研究表明,VLN1能够以高亲和力与微丝结合并促进其成束,如Khurana等[15]证实其与VLN3在微丝束形成中具有协同作用;Huang等[16]证实VLN1可生成抗解聚的微丝电缆,从而负调控微丝解聚过程。早期研究亦支持其微丝结合功能。如:Yokota等[17]从花粉管中分离的微丝成束蛋白;McCurdy等[18]则系统总结了植物中微丝及其结合蛋白的特性。VLN1通过影响微丝动态,参与根毛伸长调控,并在渗透胁迫中可能通过限制细胞伸长以增强水分吸收适应性,先前研究多集中在根毛发育中的作用[19-20],而在气孔运动及抗旱性调控方面的潜在功能仍有待阐明。本研究以转移DNA(transfer DNA,T-DNA)插入突变体为材料,通过反向遗传学的方法,从植株土壤干旱处理、离体叶片失水率测定以及ABA和微丝特异性药物处理下的气孔开度测量与分析3个方面观察植株生理表型。从不同方面与层次探究微丝结合蛋白VLN1在ABA诱导气孔关闭中的作用,从整体植株到细胞水平系统评估VLN1在气孔关闭及抗旱反应中的功能。观察不同实验材料在土壤干旱耐受性、叶片失水率、气孔开度等各方面的不同表现,以期拓宽对气孔运动机制的理解和对微丝结合蛋白VLN1在植物中生理功能的认识,为深入理解气孔运动调控机制和植物抗旱响应提供新的理论依据,并为作物抗逆育种提供潜在靶点。
1. 实验部分
1.1 材料与试剂
哥伦比亚(Col-0)野生型(wild type,WT)拟南芥为本实验室繁种;SALK_133579C(vln1-1)与SALK_020027C(vln1-2)突变体种子购自爱若沙突变体生物公司。
蔗糖、Murashige and Skoog medium(MS)粉、2-吗啉乙磺酸(2-morpholinoethanesulphonic acid,MES)、乙醇、NaClO、异丙醇、琼脂和ABA等均购自北京江晨生物公司;脱氧核糖核酸(deoxyribonucleic acid,DNA)提取试剂盒、2×Taq聚合酶链式反应(polymerase chain reaction,PCR)master mix、D5000 DNA marker均购自天根公司;双蒸水(double distilled water,dd H2O)、GelRed染色剂均购自北京全式金公司;引物由生工生物提供;Jasplakinolide(Jas)和Latrunculin B(Lat B)均购自sigma公司。实验用水均为无菌水。
1.2 实验仪器
使用德国艾本德公司生产的固定量程移液器移取溶液;使用瑞士莱卡公司生产的LEICA KL300 LED型冷光源照射拟南芥叶片;使用日本三洋公司生产的SANYO MLS-3780型高压灭菌锅对实验器材和试剂灭菌处理;使用上海Bio-Rad生命医学产品有限公司生产的Gel Doc 1000型凝胶分析系统采集和分析电泳凝胶图像;使用德国艾本德公司生产的Eppendorf 5430/5430R型小型高速离心机离心微量样品;使用美国赛默飞公司生产的ABI9700型PCR仪进行聚合酶链式反应;使用美国奥豪斯公司生产的CP153型电子天平称量样品;使用日本三洋公司生产的MDF-U53V型超低温冰箱储存实验样品;使用上海Bio-Rad生命医学产品有限公司生产的PowerPacTM HC型电泳仪进行琼脂糖凝胶电泳;使用德国蔡司公司生产的ZEISS Imager. M 2型正置荧光显微镜观察样品。
1.3 培养基和相关溶液配置
(1)1/2 MS固体培养基配置,称量2.50 g蔗糖、0.55 g MS粉加入200 mL dd H2O中充分溶解,并定容至250 mL,用1 mol/L KOH溶液调溶液酸碱度至pH=5.6后,加入2.00 g琼脂,灭菌后分装至培养皿中,待凝固后加盖并密封储存;(2)表皮条缓冲液配置,取500 μL 100 mmol/L CaCl2溶液、25 mL 1 mol/L KCl溶液与1.07 g MES粉末,加入500 mL水溶解,调至pH=6.1,待用;(3)ABA溶液配置,取50 mL表皮条缓冲液溶解132.00 mg ABA粉,得到ABA母液,再由50 mL表皮条缓冲液与50 μL ABA母液混合,稀释至50 μmol/L ABA工作液待用;(4)ABA+Jas溶液配置,取1 mL 10 μmol/L的Jas溶液(微丝稳定剂),加499 mL表皮条缓冲液稀释至20 nmol/L后,再与50 μmol/L ABA溶液按体积比为1∶1混合,待用;(5)ABA+Lat B溶液配置,取1 mL 10 μmol/L的Lat B溶液(微丝解聚剂),加999 mL表皮条缓冲液稀释至10 nmol/L后,与50 μmol/L ABA溶液体积比为1∶1混合,待用。
1.4 拟南芥培养
(1)用移液器吸头将表面消毒后的野生型和vln1突变体(vln1-1和vln1-2)种子均匀接种于1/2 MS培养基表面,置于4 ℃条件下处理72 h;再将培养基移至光照培养箱中萌发14 d;取状态健康的幼苗移栽至湿润土壤中,光照培养室继续培养,培养条件光照强度为120 μmol/(m2·s)、光周期为光照16 h/黑暗8 h交替、光照/黑暗温度为22 ℃/18 ℃、相对湿度为57%,持续3~4周后,用于后续实验。
(2)筛选VLN1基因纯合突变体拟南芥植株。为鉴定植株基因型,本实验分别提取了野生型与vln1突变体拟南芥的基因组DNA,PCR扩增后采用LB、LP和RP三引物法进行琼脂糖凝胶电泳分析。其中:LB为左边界引物,位于插入片段本身的左边界区域;LP为左翼引物,位于待插入片段左侧的基因组序列上;RP为右翼引物,位于待插入片段右侧的基因组序列上。平行实验8组。据此结果,将拟南芥植株分为野生型、vln1-1突变体和vln1-2突变体共3种类型,并进行后续实验。
1.5 土壤干旱处理
将14日龄的拟南芥幼苗移栽至装有相同量湿润土壤中,光照培养室继续培养,光照条件同1.4节,相对湿度为57%,并保持土壤湿润培养4周后,对托盘充分灌水,待土壤饱和后排出多余水分,持续培养6周,不再添加水分;干旱处理持续6周后,命名为干旱组,观察植株表型;以培养周期中保持充足水分的植株为对照组。上述实验独立重复3次,每组数据至少统计60棵植株。
1.6 离体叶片失水率测定
分别从12株植株中选取3~4周龄、叶位与形态相近、生长状况良好的野生型与vln1突变体拟南芥叶片各12片,25 ℃下自然失水;自离体起,每隔30 min称量叶片质量,监测持续180 min,以初始鲜质量为基准计算失水率。上述实验独立重复3次。
1.7 气孔开度测定
作为植物响应干旱胁迫的关键激素信号,ABA通过诱导气孔关闭以抑制水分过度蒸腾。鉴于ABA在植物响应环境胁迫的过程中所起到的关键作用,本实验进一步研究了野生型与vln1突变体的气孔开度变化。分别取培养于土壤的12株4周龄植株,剪取生长状况良好的莲座叶,叶背向上放置在MES缓冲液中,在光强为500 μmol/(m2·s)的冷光源下室温照射180 min,诱导气孔充分开放;随后将叶片转移至含有3 mL的ABA、ABA+Jas、ABA+Lat B溶液的培养皿中,叶面朝上,继续浸泡30 min;每组实验各从5株植株中选取5片叶位与形态相近、生长状况良好的叶片,使用正置显微镜观察并拍摄叶片保卫细胞图像,通过Image J软件定量测量气孔开度的图像(图 1)。每组实验重复3次,累计测量气孔数 > 80个。
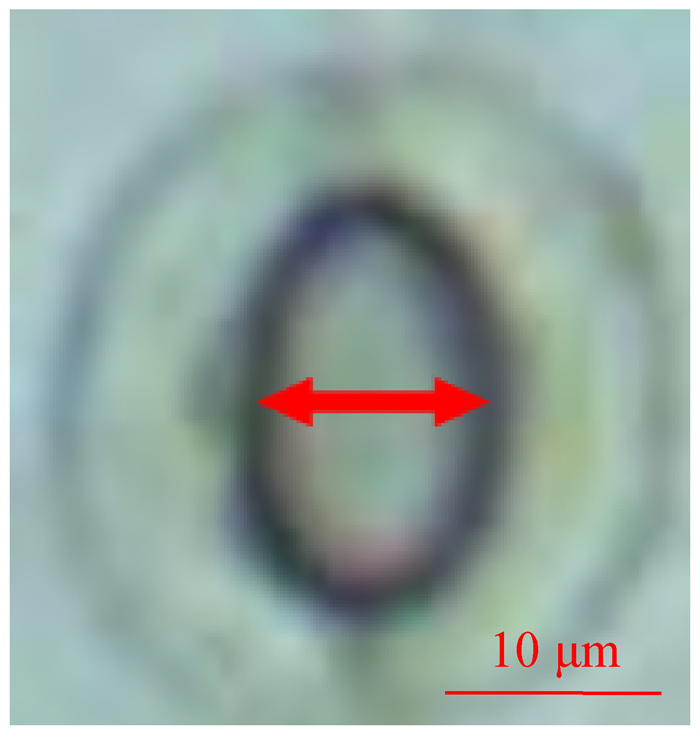 图 1 气孔开度测量示意Fig. 1 schematic diagram of stomatal aperture measurement
 下载:
全尺寸图片
1.8 数据统计分析
数据以 x±s表示。使用IBM SPSS Statistics软件统计数据,使用ZEN软件处理蔡司显微镜图像,使用GraphPad Prism软件绘制图表。采用双尾t检验比较2组间数据(如野生型与突变体的差异);采用单因素方差分析(one-way ANOVA)比较多组间数据差异,若总体差异显著,则进一步使用Turkey检验比较事后多重。P < 0.05为差异有统计学意义,P < 0.01为差异极显著有统计学意义。
2. 结果
2.1 突变体鉴定
vln1突变体鉴定结果如图 2所示。vln1-1和vln1-2突变体均为T-DNA插入类型,其插入位点示意如图 2(a)所示。琼脂糖凝胶电泳结果表明(图 2(b)):仅使用LP与RP引物组合时,可以扩增出野生型条带;仅使用LB与RP引物组合时,可以扩增出纯合突变体的条带;实验未检测到杂合突变体,且以H2O为模板的对照组无扩增产物。因此,所有后续实验均选用经鉴定并扩繁的纯合突变体植株为研究对象。
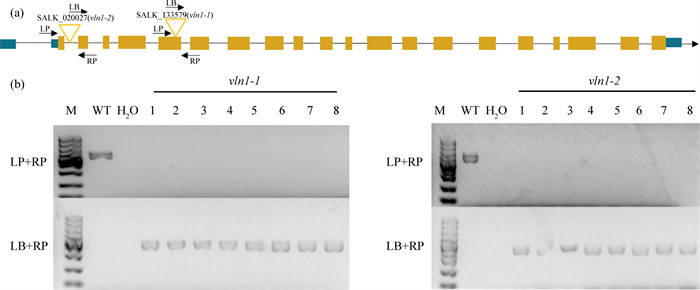 图 2 vln1突变体鉴定注:M为脱氧核糖核酸(DNA)marker;WT为野生型;vln1-1、vln1-2为突变体种子编号;LB为左边界引物;LP为左翼引物;RP为右翼引物;LP+RP、LB+RP分别为引物组合;1~8为平行突变体。
(a)转移DNA(T-DNA)插入位点示意;(b)琼脂糖凝胶电泳Fig. 2 identification of the vln1 mutant(a) schematic diagram of transfer DNA (T-DNA) insertion sites; (b) agarose gel electrophoresis下载:
全尺寸图片
2.2 土壤干旱表型
不同类型植株在土壤干燥条件下的存活差异结果如图 3所示。经过6周完全干旱处理后,野生型叶片大部分仍保持绿色,而2种突变体植株表现出严重的干旱表型,如出现了明显萎蔫、叶片皱缩与褶皱,出现了大面积的紫褐化甚至枯死现象。存活率统计结果表明:野生型、vln1-1突变体和vln1-2突变体拟南芥植株的存活率分别为42.22%±4.45%、28.89%±4.44%和25.47%±2.39%;与野生型相比,vln1-1和vln1-2突变体的存活率分别显著下降了13.33%和16.75%(t=-4.244和-6.634,P < 0.05)。由此表明VLN1基因功能缺失会导致植株抗旱性降低。
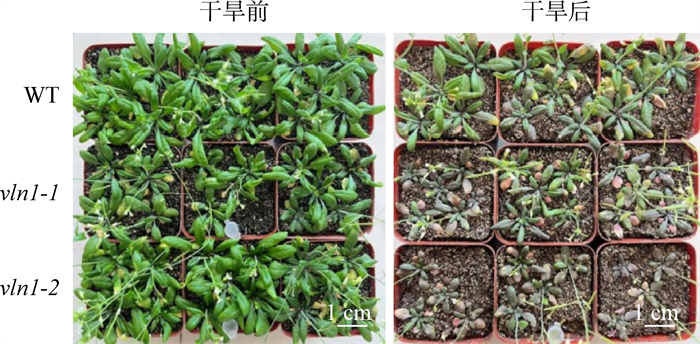 图 3 拟南芥土壤干旱实验表型Fig. 3 drought phenotypes of different Arabidopsis seedlings in soil下载:
全尺寸图片
2.3 离体叶片失水率
不同类型离体叶片失水实验结果如图 4所示。叶片离体180 min时(图 4(a)),3种类型叶片均有皱缩现象,其中2种突变体叶片的皱缩现象更为明显。失水率测定结果验证了在整个脱水过程中,突变体的失水速率均高于野生型(图 4(b));0~30 min时,失水率增长速率最快,且突变体的失水率增长速率明显高于野生型,推测该时段是VLN1基因响应干旱胁迫的主要时间段;180 min时,野生型、vln1-1突变体和vln1-2突变体叶片的失水率分别为23.45%、46.17%和48.24%;与野生型相比,vln1-1突变体和vln1-2突变体叶片的失水率极显著增加了22.72%和24.79%(t=2.438和2.561,P < 0.01)。说明微丝结合蛋白VLN1的缺失,导致保卫细胞对干旱胁迫的响应敏感力减弱,气孔关闭出现延迟,进而导致水分蒸腾量增加。
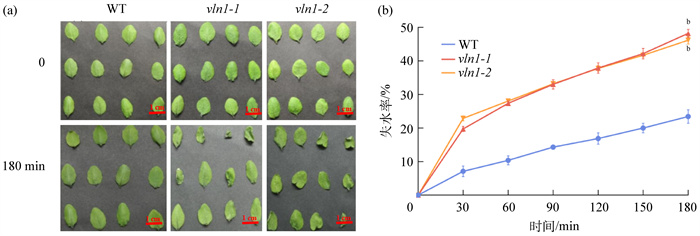 图 4 不同类型离体叶片失水表现注:b与WT相比,t=2.438和2.561,P < 0.01。
(a)叶片失水表型;(b)失水率Fig. 4 water loss in different types of detached leaves(a) leaf water loss phenotype; (b) water loss rate下载:
全尺寸图片
2.4 气孔关闭机制研究
ABA诱导气孔开度变化实验结果如图 5所示。ABA处理后,3种类型叶片的气孔开度均呈缩小状态,野生型与突变体拟南芥之间的气孔开度出现显著差异。与ABA溶液处理前相比,野生型、vln1-1突变体和vln1-2突变体的气孔开度分别缩小了3.27、2.40和2.55 μm,对应关闭程度为44.98%、33.43%和35.56%(t=-36.651、-24.051和-27.240,P < 0.05);vln1-1突变体和vln1-2突变体的气孔关闭程度占野生型的74.32%和79.06%(t=-9.661和-7.911,P < 0.05)。初步显示在ABA诱导气孔关闭过程中,vln1突变体的气孔关闭行为明显滞后于野生型,正常气孔关闭反应受阻。
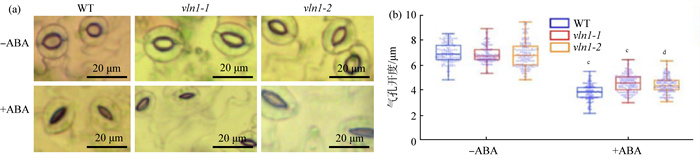 图 5 ABA诱导气孔开度变化注:-ABA、+ABA分别脱落酸代表处理前、后;c与ABA溶液处理前相比,t=-36.651、-24.051、-27.240,P < 0.05;d与WT相比,t=-9.661、-7.911,P < 0.05。
(a)气孔开度表型;(b)气孔开度大小Fig. 5 measurement of stomatal apertures in response to ABA(a) stomatal aperture phenotype; (b) quantification of stomatal aperture下载:
全尺寸图片
微丝稳定剂Jas对ABA诱导气孔关闭的影响如图 6所示。由表型图可知(图 6(a)),ABA所诱导的气孔关闭作用在一定程度上受到了抑制。在单独使用ABA处理30 min后,野生型的气孔开度约为4.00 μm,2个突变体分别为4.79和4.62 μm;而在ABA+Jas溶液诱导后,即ABA与Jas共同处理后,野生型气孔开度增至4.75 μm,突变体则分别升至5.34和5.02 μm。与单独ABA处理相比,微丝稳定剂Jas的加入使得野生型的气孔关闭作用被抑制了约14.75%(t=-7.813,P < 0.01),而突变体的抑制程度更高,分别达到16.70%和17.53%(t=-9.969和-11.251,P < 0.01),表现出对微丝稳定剂更加敏感。
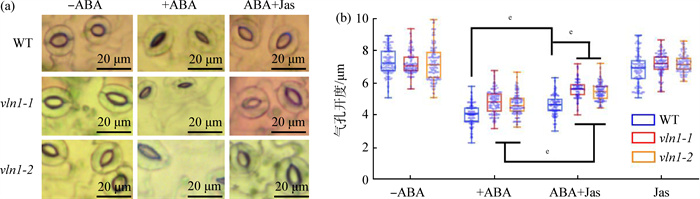 图 6 微丝稳定剂Jas对ABA诱导气孔关闭的影响注:Jas为Jasplakinolide;ABA+Jas指ABA和Jas共同处理;e与+ABA相比,t=-7.813、-9.969、-11.251,P < 0.01。
(a)气孔开度表型;(b)气孔开度大小分析Fig. 6 effect of the actin-stabilizing agent Jas on ABA-induced stomatal closure(a)representative images of stomatal aperture; (b)quantification of stomatal aperture下载:
全尺寸图片
微丝特异性解聚剂Lat B对ABA诱导气孔关闭的影响结果如图 7所示。当ABA+Lat B溶液诱导后,即ABA与Lat B共同处理时,会进一步加剧气孔的关闭。共同诱导30 min后,野生型的气孔开度降至约3.43 μm,2个突变体的气孔开度分别降至4.37和4.18 μm。此时,野生型的气孔开度与单独ABA处理时相比又缩小了14.25%(t=-7.717,P < 0.01),而突变体的气孔开度降幅仅为8.77%和9.52%(t=-4.315和-4.811,P < 0.01)。
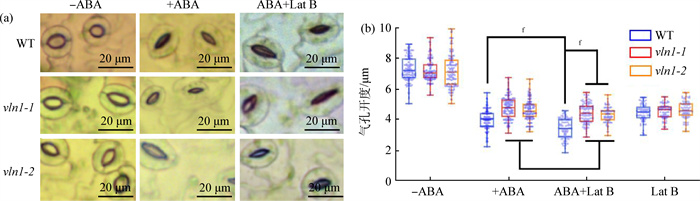 图 7 微丝特异性解聚剂Lat B对ABA诱导气孔关闭的影响注:Lat B为Latrunculin B;ABA+Lat B指ABA和Lat B共同处理。f与+ABA相比,t=-7.717、-4.315、-4.811,P < 0.01。
(a)气孔开度表型;(b)气孔开度大小分析Fig. 7 effect of the actin specific depolymerizing drug Lat B on ABA-induced stomatal closure(a) representative images of stomatal aperture; (b) quantification of stomatal aperture下载:
全尺寸图片
3. 讨论
3.1 保卫细胞中微丝结合蛋白VLN1参与干旱响应
近2年陆续有报道VLN1在植物根的生长发育,在渗透胁迫所带来的土壤水势变化的响应中发挥着重要作用[19],通过遗传分析表明,在渗透胁迫下,VLN1可能会负调控转录因子GLABRA2(GL2)介导的根毛伸长,从而抑制拟南芥根毛的形成[20]。这一作用可能是由于VLN1对纤丝状肌动蛋白(filamentous actin,F-actin)的捆绑作用限制了根毛细胞的伸长能力,因为F-actin的解聚和重排是根毛形成和伸长所必需的。VLN1在渗透胁迫下的功能变化对于植物的生存和适应具有重要意义。通过调节根毛的形成和伸长,VLN1可以帮助植物更好地吸收水分和养分,以应对渗透胁迫带来的挑战[20]。目前关于拟南芥中Villin蛋白的很多功能还不确定,需要进一步证实,特别是关于Villin对非生物逆境胁迫的响应。那么在地上部分叶片气孔运动蒸腾失水,调节水分的过程中,是否也有VLN1的参与呢?
根据本文实验结果可得,ABA处理可诱导拟南芥叶片保卫细胞中VLN1基因的表达,提示VLN1可能参与ABA介导的植物生理过程的信号转导途径。保卫细胞作为植物气孔结构的重要组成部分,在ABA调控气孔运动以响应干旱胁迫中发挥关键作用。本研究中观察到的VLN1在保卫细胞中对ABA的响应特征,进一步支持了该基因可能参与ABA诱导气孔关闭信号通路的推测。
3.2 VLN1通过调节微丝动态变化参与ABA诱导的气孔关闭
保卫细胞微丝骨架活跃的动态重排在气孔运动的过程中发挥着重要作用,在精准调控微丝时空动态组织行为的信息网络中,大量微丝结合蛋白的参与不容忽视。已知VLN1作为微丝结合蛋白,在植物根的生长发育,在渗透胁迫所带来的土壤水势变化的响应中发挥着重要作用。本研究以T-DNA插入的突变体vln1-1、vln1-2以及野生型拟南芥为材料,分析了ABA及微丝特异性药物处理对气孔开度的影响。表明ABA诱导30 min后,野生型与突变体拟南芥的气孔开度均有所减小,但突变体的气孔关闭速率显著慢于野生型,气孔关闭程度显著小于野生型,证实VLN1参与ABA介导的气孔关闭过程,并提示其可能作用于“ABA→VLN1→微丝动态→气孔运动”的信号通路中。可推测VLN1通过调控保卫细胞微丝的动态重组,影响ABA信号下微丝骨架的结构重构,从而正向调节气孔关闭,减少水分蒸腾损失。
基于VLN1作为微丝结合蛋白的特性,本研究在使用ABA处理的同时,分别施加了微丝解聚剂Lat B和稳定剂Jas以进行药理学分析。表明Lat B能增强ABA诱导的气孔关闭作用,显示气孔闭合过程中微丝解聚参与正向调节作用;而Jas则显著抑制ABA的气孔关闭作用,表明微丝动态聚合是ABA信号生效的必要条件。与野生型拟南芥相比,vln1突变体对Jas的敏感性更高,而对Lat B的响应较弱。以上结果进一步支持VLN1通过调节微丝动态性参与ABA信号转导,从而影响气孔运动,完善了“ABA→VLN1→微丝骨架重排→气孔运动”的调控路径。
4. 结束语
植物气孔是调控碳-水平衡及逆境响应的关键结构。微丝骨架及其结合蛋白(如SCAB1、ADF5)通过调节肌动蛋白动态参与ABA信号与气孔运动。Villin蛋白家族成员VLN1可促进微丝成束与稳定。本实验表明,VLN1功能缺失导致拟南芥抗旱性下降、气孔关闭延迟,并对微丝稳定剂与解聚剂的响应发生改变,进一步支持了VLN1通过调节微丝动态重组参与ABA信号转导的假设。未来可通过激光共聚焦显微镜与荧光漂白恢复技术进一步深入探究VLN1对于保卫细胞微丝动态转换速率的调节作用,以及ABA信号下微丝组织重排的响应,以微观视角进行更加详细的机制分析,为气孔运动机制增添新的理论依据,探索VLN1在作物中的功能保守性及其在抗旱育种中的应用潜力。
© The editorial department of Journal of Capital Normal University (Natural Science Edition) 2025.This is an open access article under the CC BY-NC-ND 4.0 license (https://creativecommons.org/licenses/by-nc-nd/4.0/). -
图 1 气孔开度测量示意
Fig. 1 schematic diagram of stomatal aperture measurement
下载:
全尺寸图片
图 2 vln1突变体鉴定
注:M为脱氧核糖核酸(DNA)marker;WT为野生型;vln1-1、vln1-2为突变体种子编号;LB为左边界引物;LP为左翼引物;RP为右翼引物;LP+RP、LB+RP分别为引物组合;1~8为平行突变体。
(a)转移DNA(T-DNA)插入位点示意;(b)琼脂糖凝胶电泳Fig. 2 identification of the vln1 mutant
(a) schematic diagram of transfer DNA (T-DNA) insertion sites; (b) agarose gel electrophoresis
下载:
全尺寸图片
图 3 拟南芥土壤干旱实验表型
Fig. 3 drought phenotypes of different Arabidopsis seedlings in soil
下载:
全尺寸图片
图 4 不同类型离体叶片失水表现
注:b与WT相比,t=2.438和2.561,P < 0.01。
(a)叶片失水表型;(b)失水率Fig. 4 water loss in different types of detached leaves
(a) leaf water loss phenotype; (b) water loss rate
下载:
全尺寸图片
图 5 ABA诱导气孔开度变化
注:-ABA、+ABA分别脱落酸代表处理前、后;c与ABA溶液处理前相比,t=-36.651、-24.051、-27.240,P < 0.05;d与WT相比,t=-9.661、-7.911,P < 0.05。
(a)气孔开度表型;(b)气孔开度大小Fig. 5 measurement of stomatal apertures in response to ABA
(a) stomatal aperture phenotype; (b) quantification of stomatal aperture
下载:
全尺寸图片
图 6 微丝稳定剂Jas对ABA诱导气孔关闭的影响
注:Jas为Jasplakinolide;ABA+Jas指ABA和Jas共同处理;e与+ABA相比,t=-7.813、-9.969、-11.251,P < 0.01。
(a)气孔开度表型;(b)气孔开度大小分析Fig. 6 effect of the actin-stabilizing agent Jas on ABA-induced stomatal closure
(a)representative images of stomatal aperture; (b)quantification of stomatal aperture
下载:
全尺寸图片
图 7 微丝特异性解聚剂Lat B对ABA诱导气孔关闭的影响
注:Lat B为Latrunculin B;ABA+Lat B指ABA和Lat B共同处理。f与+ABA相比,t=-7.717、-4.315、-4.811,P < 0.01。
(a)气孔开度表型;(b)气孔开度大小分析Fig. 7 effect of the actin specific depolymerizing drug Lat B on ABA-induced stomatal closure
(a) representative images of stomatal aperture; (b) quantification of stomatal aperture
下载:
全尺寸图片
-
[1] Wang Y J, Sperry J S, Anderegg W R L, et al. A theoretical and empirical assessment of stomatal optimization modeling[J]. New Phytologist, 2020, 227(2): 311-325. DOI: 10.1111/nph.16572. [2] Huntington T G. Evidence for intensification of the global water cycle: review and synthesis[J]. Journal of Hydrology, 2006, 319(1/2/3/4): 83-95. DOI: 10.1016/j.jhydrol.2005.07.003. [3] Chen J Y, Ham B K. Systemic signaling: a role in propelling crop yield[J]. Plants, 2022, 11(11): 1400. DOI: 10.3390/plants11111400. [4] Tomar A, George S P, Mathew S, et al. Differential effects of lysophosphatidic acid and phosphatidylinositol 4, 5-bisphosphate on actin dynamics by direct association with the actin-binding protein villin[J]. Journal of Biological Chemistry, 2009, 284(51): 35278-35282. DOI: 10.1074/jbc. C109.060830. [5] Wang X F, Mao T L. Understanding the functions and mechanisms of plant cytoskeleton in response to environmental signals[J]. Current Opinion in Plant Biology, 2019, 52: 86-96. DOI: 10.1016/j.pbi.2019.08.002. [6] Waadt R, Seller C A, Hsu P K, et al. Plant hormone regulation of abiotic stress responses[J]. Nature Reviews Molecular Cell Biology, 2022, 23(10): 680-694. DOI: 10.1038/s41580-022-00479-6. [7] Ruzicka D R, Kandasamy M K, McKinney E C, et al. The ancient subclasses of Arabidopsis actin depolymerizing factor genes exhibit novel and differential expression[J]. The Plant Journal, 2007, 52(3): 460-472. DOI: 10.1111/j.1365-313X. 2007.03257.x. [8] Zhang W, Zhao Y, Guo Y, et al. Plant actin-binding protein SCAB1 is dimeric actin cross-linker with atypical pleckstrin homology domain[J]. Journal of Biological Chemistry, 2012, 287(15): 11981-11990. DOI: 10.1074/jbc. M111.338525. [9] Dong C H, Xia G X, Hong Y, et al. ADF proteins are involved in the control of flowering and regulate F-actin organization, cell expansion, and organ growth in Arabidopsis[J]. The Plant Cell, 2001, 13(6): 1333-1346. DOI: 10.1105/tpc.13.6.1333. [10] Tholl S, Moreau F, Hoffmann C, et al. Arabidopsis actin-depolymerizing factors (ADFs) 1 and 9 display antagonist activities[J]. FEBS Letters, 2011, 585(12): 1821-1827. DOI: 10.1016/j.febslet.2011.05.019. [11] Qian D, Zhang Z, He J X, et al. Arabidopsis ADF5 promotes stomatal closure by regulating actin cytoskeleton remodeling in response to ABA and drought stress[J]. Journal of Experimental Botany, 2019, 70(2): 435-446. DOI: 10.1093/jxb/ery385. [12] Nakayasu T, Yokota E, Shimmen T. Purification of an actin-binding protein composed of 115-kDa polypeptide from pollen tubes of lily[J]. Biochemical and Biophysical Research Communications, 1998, 249(1): 61-65. DOI: 10.1006/bbrc.1998.9088. [13] Zou M X, Guo M M, Zhou Z Y, et al. MPK3- and MPK6-mediated VLN3 phosphorylation regulates actin dynamics during stomatal immunity in Arabidopsis[J]. Nature Communications, 2021, 12: 6474. DOI: 10.1038/s41467-021-26827-2. [14] Leffel S M, Mabon S A, Stewart C N Jr. Applications of green fluorescent protein in plants[J]. BioTechniques, 1997, 23(5): 912-918. DOI: 10.2144/97235bi01. [15] Khurana P, Henty J L, Huang S J, et al. Arabidopsis VILLIN1 and VILLIN3 have overlapping and distinct activities in actin bundle formation and turnover[J]. The Plant Cell, 2010, 22(8): 2727-2748. [16] Huang S J, Robinson R C, Gao L Y, et al. Arabidopsis VILLIN1 generates actin filament cables that are resistant to depolymerization[J]. The Plant Cell, 2005, 17(2): 486-501. DOI: 10.1105/tpc.104.028555. [17] Yokota E, Shimmen K T A T. Actin-bundling protein isolated from pollen tubes of lily[J]. Plant Physiology, 1998, 116(4): 1421-1429. DOI: 10.1104/pp.116.4. 1421. [18] McCurdy D W, Kovar D R, Staiger C J. Actin and actin-binding proteins in higher plants[J]. Protoplasma, 2001, 215(1): 89-104. DOI: 10.1007/BF01280306. [19] Bi S T, Li M Y, Liu C Y, et al. Actin depolymerizing factor ADF7 inhibits actin bundling protein VILLIN1 to regulate root hair formation in response to osmotic stress in Arabidopsis[J]. PLoS Genetics, 2022, 18(9): e1010338. DOI: 10.1371/journal. pgen.1010338. [20] Wang X L, Bi S T, Wang L, et al. GLABRA2 regulates actin bundling protein VILLIN1 in root hair growth in response to osmotic stress[J]. Plant Physiology, 2020, 184(1): 176-193. DOI: 10.1104/pp.20.00480.
