
Investigation into the activation of the auxin signaling pathway and transmembrane transport mechanism by phenylacetic acid via TIR1/AFB receptors
-
摘要:
为了进一步阐明生长素——苯乙酸(PAA)在植物生长发育过程中的作用机制及其功能特异性。本研究以3种突变体包括
tir1-1 afb1 ,2 ,3 、aux1-T 和pin2-T ,3种转基因包括DR5 :GUS 、DR5rev :GFP 和PIN2-GFP 与1种野生型的哥伦比亚生态型(Col-0)拟南芥为研究对象,综合运用分子生物学、遗传学及细胞生物学方法,系统研究了PAA的信号感知与运输机制,并统计分析相关结果。5日龄DR5 :GUS 和DR5rev :GFP 拟南芥幼苗中,PAA可显著诱导生长素响应报告基因的表达,表明其具有激活生长素信号通路的能力;与0相比,15.0 μmol/L PAA处理后AtYUC2 和AtYUC3 基因的表达量分别增加了1.57和1.52倍(P < 0.05)。PAA对不同类型拟南芥幼苗根长影响表明:在tir1-1 afb1 ,2 ,3 幼苗中PAA的生理效应明显减弱,说明其信号转导依赖于TIR1/AFB1~AFB3受体;在aux1-T 幼苗中,生长素内输载体突变体aux1-T 对PAA表现出一定的不敏感性,说明PAA可以通过内输载体进入细胞。分子对接预测进一步证实PAA能够与TIR1及AFB1~AFB5生长素受体特异性结合。BFA处理PIN2-GFP 幼苗结果显示,PAA可显著抑制PIN2蛋白的内吞作用。综上,PAA通过特异性结合TIR1和AFB1~AFB5受体激活生长素信号通路,并可能是AUX1生长素内输载体的底物,这些结果为揭示PAA的分子调控网络提供了新依据,为理解不同类型生长素调控植物生长发育的多样性机制提供了新见解。Abstract:To further elucidate the mechanism of action and functional specificity of the auxin phenylacetic acid (PAA) in plant growth and development, this study utilized three
Arabidopsis thaliana mutants (tir1-1 afb1 ,2 ,3 ,aux1-T ,pin2-T ), three transgenic lines (DR5 :GUS ,DR5rev :GFP ,PIN2-GFP ), and the wild-type Columbia (Col-0) as research models. By integrating molecular biology, genetics, and cell biology approaches, we systematically investigated the signal perception and transport mechanisms of PAA, with statistical analysis of the relevant results. In 5-day-oldDR5 :GUS andDR5rev :GFP Arabidopsis seedlings, PAA significantly induced the expression of auxin-responsive reporter genes, indicating its ability to activate the auxin signaling pathway. Compared to the control (0), treatment with 15.0 μmol/L PAA increased the expression levels ofAtYUC2 andAtYUC3 genes by 1.57 and 1.52 fold, respectively (P < 0.05). The effects of PAA on root length in differentArabidopsis genotypes revealed that its physiological impact was markedly reduced intir1-1 afb1 ,2 ,3 seedlings, suggesting that its signal transduction depends on TIR1/AFB1-AFB3 receptors. The auxin influx carrier mutantaux1-T exhibited reduced sensitivity to PAA, indicating that PAA may enter cells via influx carriers. Molecular docking predictions further confirmed that PAA can specifically bind to TIR1 and AFB1-AFB5 auxin receptors. Brefeldin A (BFA) treatment experiments inPIN2-GFP seedlings showed that PAA significantly inhibited the endocytosis of PIN2 protein. In conclusion, PAA activates the auxin signaling pathway through specific binding to TIR1 and AFB1-AFB5 receptors and is likely a substrate of the AUX1 auxin influx carrier. These findings provide new insights into the molecular regulatory network of PAA and enhance our understanding of the diverse mechanisms by which different types of auxins regulate plant growth and development.-
Keywords:
- phenylacetic acid /
- auxin /
- signal transduction /
- polar transport /
- Arabidopsis
-
0. 引言
生长素是植物体内一类重要激素,广泛参与植物生长发育及非生物胁迫响应过程[1-3]。在胚胎发育、根系形成、向重力性和向光性等关键生理活动中,生长素通过调控细胞分裂、扩展和分化,以及器官形态建成等过程发挥核心作用[4-8]。其中,生长素的极性运输对建立和维持其不对称分布与浓度梯度至关重要[9-12]。该过程主要由介导生长素外排和内运的蛋白家族协同调控[13],外排如生长素外流载体(PIN-FORMED,PIN)家族、腺苷三磷酸(adenosine triphosphate,ATP)结合盒B亚家族(ATP-binding Cassette subfamily B,ABCB)和P-糖蛋白(P-glycoprotein,PGP),内运如生长素转运蛋白1(auxin resistant 1,AUX1)和like-AUX1(LAX)家族。其中,PIN蛋白家族在生长素的定向运输与极性分布中发挥核心作用[14]。吲哚-3-乙酸(indole-3- acetic acid,IAA)是植物中最主要且研究最深入的内源生长素,其生物合成主要依赖于YUCCA(YUC)和拟南芥色氨酸转氨酶(tryptophan aminotransferase of Arabidopsis,TAA)2类酶家族。TAA家族酶催化色氨酸转化为吲哚-3-丙酮酸(indole-3-pyruvic acid,IPA),随后YUC家族酶进一步将吲哚丙酮酸(indolepropionic acid,IPA)转化为IAA。YUC是IAA合成途径中的限速酶,而YUC和TAA在时空上的共表达对维持植物正常生长发育具有关键作用[15-19]。现有研究表明,运输抑制剂响应蛋白1(transport inhibitor response 1,TIR1)和生长素信号F-Box蛋白(auxin signaling F-Box,AFB)家族蛋白作为生长素受体,在接受生长素信号后介导抑制蛋白Aux/IAA的降解,从而释放生长素响应(auxin response factor,ARF)转录因子,激活或抑制下游基因表达,最终参与调控植物多个生长发育过程[20-22]。
苯乙酸(phenylacetic acid,PAA)是植物中广泛存在的另一类内源生长素,但其活性显著低于IAA[23-24]。作为苯丙烷代谢途径的产物,PAA的生物合成可能同样依赖于TAA和YUC酶的催化。研究显示,TAA和YUC在体外可分别将苯丙氨酸转化为苯丙酮酸(phenylpyruvate,PPA),并进一步将PPA转化为PAA[25-26]。此外,IAA和PAA均可通过生长素-酰胺合成酶(gretchen hagen 3,GH3)代谢为相应的氨基酸偶联物,该酶还参与调节植物体内IAA与PAA的平衡[26-28]。尽管PAA在刺激愈伤组织生长方面与IAA效果相似,但在豌豆和金莲花中,PAA促进侧根生长的活性优于IAA,提示其在根系发育及细胞生长调控中可能具有独特功能[23]。体外实验证实,PAA能够增强生长素受体TIR1/AFB与共受体Aux/IAA的相互作用,表明其可能通过类似IAA的信号通路调控多种生长素响应基因的表达[29],但该机制尚需在植物体内进一步验证。与IAA不同,在重力改变刺激下PAA不会形成近地侧与远地侧的浓度梯度,说明其缺乏极性运输能力[29]。然而,PAA是否可被生长素内输载体转运仍待深入研究。总体而言,尽管PAA的生长素活性已获确认,但其在植物体内的作用机制与运输方式尚未完全明确。
本研究旨在系统探讨PAA在植物生长调控及极性运输中的作用机制与生物学功能。首先,分析PAA对生长素响应报告基因表达的影响及生长素受体突变体在PAA处理下的表型变化,明确其激活生长素信号通路的潜力,并验证PAA发挥作用是否依赖于TIR1/AFB1~AFB5受体;其次,比较不同突变体对PAA的敏感性,探究PAA进出细胞是否依赖生长素内输和外排载体蛋白;最后,分析PAA是否抑制PIN外排载体蛋白的内吞作用,进一步揭示其在生长素运输与分布调控中的功能。本研究为深入理解PAA在植物体内的信号传导路径及其跨膜转运机制提供了新视角,并为植物激素调控研究提供了重要数据支持。
1. 材料与方法
1.1 试剂
MS培养基购自武汉伯远生物科技有限公司;植物琼脂购自翌圣生物科技股份有限公司;分析纯无水乙醇购自天津津东天正精细化学试剂厂;分析纯NaClO溶液购自天津渤化化学试剂有限公司;β-葡萄糖苷酸酶基因染色试剂盒(GUS染液)购自北京索莱宝科技有限公司;Tris-HCl、MgCl2、NaCl、聚乙二醇辛基苯基醚(Triton X-100)、苯甲基磺酰氟(phenylmethanesulfonyl fluoride,PMSF)、十二烷基硫酸钠(SDS)、二甲基亚砜(DMSO)、β-巯基乙醇、甘油、溴酚蓝和二硫苏糖醇(DL-dithiothreitol,DTT)均购自上海生工生物工程有限公司;抗绿色荧光蛋白(GFP)单克隆抗体(Anti-GFP)、β-肌动蛋白单克隆抗体(Anti-Actin)和抗辣根过氧化物酶(Anti-HRP)均购自全式金生物技术有限公司;12.0% SDS-PAGE凝胶购自于上海雅酶生物医药科技有限公司;布雷菲尔德菌素A(Brefeldin A,BFA)购自上海蓝木化工有限公司。实验用水均为无菌水。
1.2 仪器
使用上海赛多利斯公司生产的PB-10 pH计测量MS固体培养基pH;使用苏静安泰HS-1800超净工作台配置培养基及播种;使用海尔BCD-551WDIEU1冰箱储存试剂;使用湖南湘仪TG16-WS台式高速离心机离心蛋白质溶液;使用伯乐公司生产的165800凝胶电泳仪测量蛋白质表达;使用宁波江南仪器厂生产的JNR型植物培养箱培养拟南芥,培养温度为22 ℃、光照和黑暗分别16和8 h交替培养;使用德国徕卡公司生产的M165FC型号体式显微镜观察染色信号,DM3000型号正置荧光显微镜和TCS SP5激光共聚焦显微镜观察荧光信号;使用湖南艾科瑞生物工程有限公司SteadyPure植物RNA提取、Evo M-MLV Plus cDNA合成和SYBR Green Pro Taq HS预混型qPCR试剂盒检测YUC基因相对表达量;使用上海雅酶生物医药科技有限公司生产的Omni-ECLTM Pico化学发光试剂盒检测蛋白质丰度。
1.3 实验材料组
3种拟南芥突变体种子tir1-1 afb1,2,3[30]、aux1-T[31]和pin2-T[32],分别对应四突变体、内输载体单突变体和外输载体单突变体;野生型为哥伦比亚生态型(Col-0)拟南芥;3种转基因拟南芥种子DR5:GUS、DR5rev:GFP和PIN2-GFP。以上材料均由本实验室保存。
1.4 溶液配制
(1)PAA溶液,用DMSO溶解PAA粉末并分别配置含5.0、10.0、15.0、150.0和450.0 μmol/L PAA的MS培养基;(2)卡诺固定剂,由无水乙醇和乙酸混合而成,二者的体积比为V无水乙醇∶V乙酸 = 1∶3;(3)透明剂,由水合氯醛、水和甘油混合而成,三者的体积比为V水合氯醛∶V水∶V甘油 = 8∶3∶1;(4)蛋白提取液,由含量为50.0 mmol/L Tris-HCl、10.0 mmol/L MgCl2、150.0 mmol/L NaCl、5.0‰ Triton X-100、1.0 mmol/L PMSF和2.0% β-巯基乙醇的混合溶液组成;(5)上样缓冲液,由含量为125.0 mmol/L Tris-HCl、4.0% SDS、20.0%甘油、200.0 mmol/L DTT、0.2‰溴酚蓝组成。注:文中若无特殊说明,%和‰均为体积分数。
1.5 拟南芥的消毒与培养条件
参考并改进王萌等[33]的方法消毒种子。在超净台中,依次将拟南芥种子用1 mL 70.0%乙醇浸泡5 min、1 mL 1.0% NaClO溶液浸泡10 min,水漂洗4次;将种子置于MS培养基中,置于4 ℃冰箱中春化处理2 d,再放于培养箱中培养。
1.6 PAA处理激活生长素响应报告基因检测
(1)GUS组织化学染色分析,参考并改进梁梦晓等[34]的方法染色GUS。将7日龄DR5rev:GUS拟南芥幼苗置于0和150.0 μmol/L PAA的MS培养基中培养2 h,然后将其完全浸泡于适量GUS染液中,37 ℃染色24 h;用2 mL卡诺固定剂固定3 h,再用2 mL透明剂过夜浸泡;无菌水漂洗3次后,观察GUS染色信号。
(2)报告基因检测。将5日龄的DR5rev:GFP拟南芥幼苗分别置于含有0和150.0 μmol/L PAA的MS培养基中培养2 h,观察荧光信号。
(3)蛋白表达检测。将5日龄的DR5rev:GFP拟南芥幼苗分别置于含有0、50.0、150.0和450.0 μmol/L PAA的MS培养基中培养2 h,分别称取100 mg上述幼苗置于液氮中研磨,加入500 μL蛋白提取液提取蛋白质并离心,离心速度为12 000 r/min、离心半径为10 cm、离心时间为10 min,转移上清液并加入等体积上样缓冲液混合,100 ℃加热8 min,待测。取10 μL样品在12.0% SDS-PAGE凝胶中分离蛋白质,电压为120 V,并进行蛋白免疫印迹分析。用Anti-GFP(1∶5 000)和Anti-Actin(1∶5 000)分别检测GFP蛋白和β-Actin(内参)。二抗采用(1∶10 000)稀释。使用Omni-ECLTM Pico化学发光试剂盒检测信号。
(4)YUC基因相对表达量检测。使用SteadyPure植物RNA提取试剂盒提取PAA处理下的拟南芥幼苗总RNA;使用Evo M-MLV Plus cDNA合成和SYBR Green Pro Taq HS预混型qPCR试剂盒进行逆转录和YUC基因相对表达量检测。采用Bio-Rad CFX96实时定量系统,通过观察熔解曲线来检测每个目的基因及内参基因引物的特异性。每个样品均重复3次。
1.7 PAA对根长的影响
为了验证生长素受体是否能够感知PAA,分别使用不同物质的量浓度PAA处理Col-0和受体突变体种子。将参考1.5节步骤处理的Col-0、tir1-1 afb1,2,3拟南芥种子分别播种于含有0、5.0、10.0和15.0 μmol/L PAA的MS培养基中,置于培养箱中培养7 d,待测。
为了确定PAA的运输机制,以不同物质的量浓度PAA处理Col-0和2种单突变体种子。将参考1.5节步骤处理的Col-0、aux1-T和pin2-T拟南芥种子分别播种于含有0、0.5、1.0、2.5和5.0 μmol/L PAA的MS培养基中,置于培养箱中培养7 d,待测。
1.8 分子对接
配体和受体的制备使用Mgltools 1.5.6软件模拟,通过Vina v1.2.3软件计算二者的结合能,并根据结合能选择最佳结合模式。利用Sybyl 6.9软件生成PAA的3D结构,并以1.0 kcal/mol对分子能量最小化,能量变化的阈值为0.05 cal/mol;配体为PAA,受体包括TIR1、AFB1~ AFB5共6种。其中,AFB1~AFB5的结构模型通过同源建模获得(https://swissmodel.expasy.org/)。
1.9 PAA对PIN2蛋白内吞作用的影响
为了探究PAA是否影响PIN2蛋白的内吞作用,采用PAA与BFA联合处理PIN2-GFP幼苗。分别使用2 mL含有0.1% DMSO和2 mL 150.0 μmol/L PAA的MS培养基处理5日龄PIN2-GFP幼苗30 min,然后各选取一半幼苗转移至2 mL 25.0 μmol/L BFA中处理30 min。待处理完成后,利用激光共聚焦显微镜观察并采集PIN2-GFP拟南芥幼苗的荧光信号图像。
1.10 数据处理与分析
数值以 x±s表示,所有实验重复3次。使用ImageJ软件测量幼苗的根长;使用Adobe Photoshop处理图像,并在Adobe Illustrator中完成图像组合;使用SPSS 25.0和GraphPad Prism软件分析数据;组间数据比较采用t检验。P < 0.05为差异具有显著性;P < 0.01为差异具有高度显著性;P < 0.001为差异具有极显著性。
2. 实验结果
2.1 PAA处理激活生长素响应报告基因的表达
不同物质的量浓度PAA处理后,5日龄DR5:GUS和DR5rev:GFP拟南芥幼苗的相关基因表达如图 1所示。与无PAA相比,150.0 μmol/L PAA处理后,DR5:GUS幼苗中,根冠、侧根冠、静止中心和伸长区的GUS信号显著增强(图 1(a));DR5rev:GFP幼苗中,根冠柱状细胞、静止中心、分生区和伸长区中GFP荧光信号增强(图 1(b))。蛋白质免疫印迹结果显示,PAA处理提高了DR5rev:GFP幼苗中GFP蛋白的表达水平,且随着PAA浓度的增加,GFP蛋白的表达量相应上升(图 1(c))。
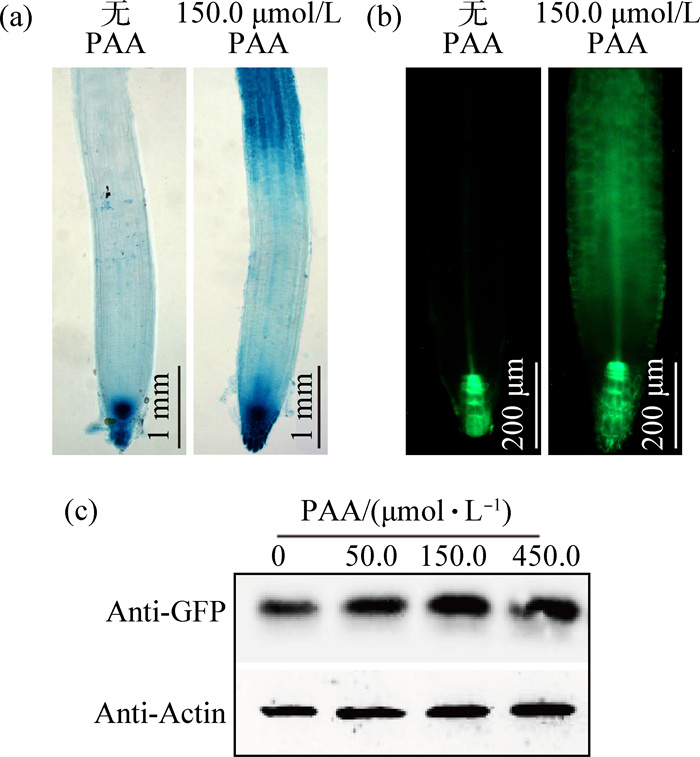 图 1 不同物质的量浓度苯乙酸(PAA)诱导生长素响应报告基因表达及其剂量依赖性注:Anti-GFP为抗绿色荧光蛋白单克隆抗体;Anti-Actin为β-肌动蛋白单克隆抗体。
(a)DR5:GUS植株的染色信号;(b)DR5rev:GFP植株的荧光信号;(c)DR5rev:GFP植株的蛋白质免疫印迹结果Fig. 1 phenylacetic acid(PAA) induces the expression of auxin-responsive reporter genes in a dose-dependent manner(a)staining signals in DR5: GUS plants; (b) fluorescence signals in DR5rev: GFP plants; (c) changes in the protein expression level of DR5rev: GFP plants 下载:
全尺寸图片
不同物质的量浓度PAA处理的7日龄拟南芥Col-0幼苗后,YUC基因的相对表达量列于表 1。PAA处理后,AtYUC1和AtYUC2基因的表达增加,AtYUC5基因的表达抑制,其余4种基因的表达呈波动趋势。与0相比,15 μmol/L PAA处理后AtYUC2和AtYUC3的表达量分别增加了57.0%和52.0%(P < 0.05);AtYUC4和AtYUC5的表达显著下调了24.0%和95.0%(P < 0.05);AtYUC1、AtYUC6和AtYUC7的表达差异无统计学意义(P > 0.05)。
表 1 不同物质的量浓度PAA处理后拟南芥YUC基因相对表达量Table 1 relative expression levels of YUC genes in ArabidopsisPAA/(μmol·L-1) AtYUC1 AtYUC2 AtYUC3 AtYUC4 AtYUC5 AtYUC6 AtYUC7 0 1.01±0.20 1.00±0.06 1.00±0.09 1.00±0.09 1.00±0.11 1.00±0.07 1.01±0.14 5.0 1.00±0.17 1.51±0.37 0.57±0.11 1.08±0.25 0.23±0.01 1.04±0.24 0.56±0.17 10.0 1.02±0.31 1.37±0.06 1.51±0.39 1.14±0.14 0.64±0.06 1.16±0.26 1.26±0.39 15.0 1.32±0.36 1.57±0.28a 1.52±0.33a 0.76±0.11a 0.05±0.01a 0.93±0.06 1.12±0.14 注:AtYUC1~ AtYUC7为拟南芥黄素单加氧酶1~拟南芥黄素单加氧酶7;a与0相比,P < 0.05。 2.2 PAA对根长的影响
不同物质的量浓度PAA处理后的2种拟南芥根部表型和根长度变化趋势如图 2所示。随着PAA物质的量浓度的增加,2种拟南芥幼苗的根长变短,生长受到抑制;相同物质的量浓度PAA处理时,tir1-1 afb1,2,3幼苗的根部长度长于Col-0幼苗。与0相比,5.0、10.0和15.0 μmol/L PAA处理后Col-0与tir1-1 afb1,2,3幼苗的根长均显著抑制(P < 0.05);与Col-0幼苗相比,tir1-1 afb1,2,3幼苗经5.0、10.0和15.0 μmol/L PAA处理后根长抑制减弱(P < 0.05),这表明PAA对拟南芥根生长的抑制作用依赖于TIR1/AFB1~AFB3受体的功能。
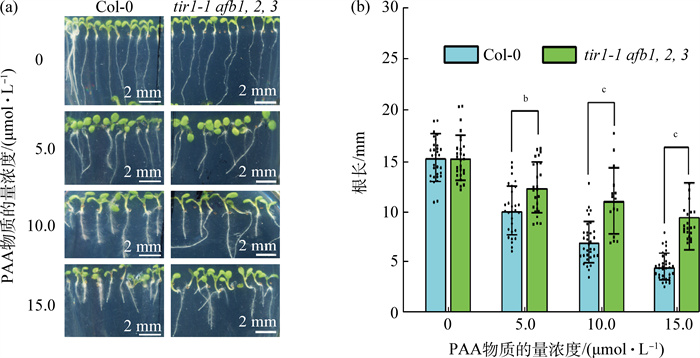 图 2 PAA对Col-0和tir1-1 afb1,2,3拟南芥幼苗根长的影响注:株数(n)=33;与Col-0相比,bP < 0.01, cP < 0.001。
(a)根长表型; (b)根长统计结果Fig. 2 effect of PAA treatment on root length in Col-0 and auxin receptor mutants (tir1-1 afb1, 2, 3)(a) root length phenotype; (b) statistical chart of root length下载:
全尺寸图片
不同物质的量浓度PAA处理后的3种拟南芥根部表型和根长度变化趋势如图 3所示。低物质的量浓度PAA(0.5和1.0 μmol/L)促进幼苗主根的伸长,而高物质的量浓度PAA(2.5和5.0 μmol/L)抑制根的伸长。在低物质的量浓度PAA处理时,相较于Col-0,aux1-T和pin2-T突变体幼苗对PAA超敏感,而高物质的量浓度PAA处理时则相对不敏感,尤其是aux1-T幼苗。这表明PAA能通过内输载体AUX1进入细胞,而其退出细胞似乎不依赖外输载体PIN2。
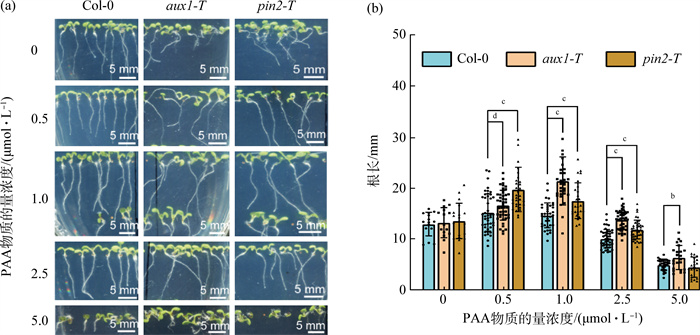 图 3 PAA处理对Col-0、aux1-T和pin2-T突变体幼苗根长的影响注:n=36;与Col-0相比,dP < 0.05。
(a)根长表型; (b)根长统计结果Fig. 3 effects of PAA treatment on root growth of Col-0, aux1-T, and pin2-T mutant seedlings(a) root length phenotype; (b) statistical results of root length下载:
全尺寸图片
2.3 PAA与拟南芥生长素受体TIR1及AFB1~AFB5的分子对接分析
PAA与拟南芥生长素受体的分子对接预测分析如图 4所示。在TIR1中,PAA的羧基与精氨酸(arginine,Arg)403和丝氨酸(serine,Ser)438形成氢键,并与苯丙氨酸(phenylalanine,Phe)82、亮氨酸(leucine,Leu)439、谷氨酸(glutamic acid,Glu)487和组氨酸(histidine,His)78等多个残基发生相互作用,从而稳定结合;对于AFB1,与PAA的结合则依赖于Arg399、酪氨酸(tyrosine,Tyr)78、Ser436和Arg432等关键残基的参与;对于AFB2,PAA主要与Ser433、Arg398、Arg431和Ser457等位点结合;对于AFB3,通过Arg400、Arg433、His73、和缬氨酸(valine,Val)436等残基与PAA结合;对于AFB4,主要借助甘氨酸(glycine,Gly)487与PAA形成稳定氢键,并通过Phe124、Phe127和Val485与PAA发生相互作用,表现出与其他受体不同的结合模式。注:数字指氨基酸残基位点。
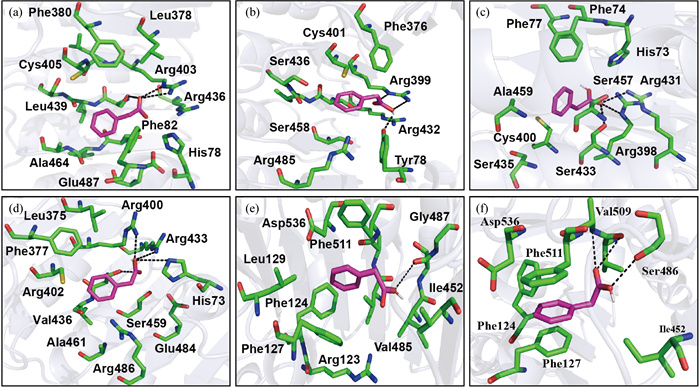 图 4 PAA与拟南芥生长素受体的分子对接预测分析注:字母与数字组合代表蛋白质受体上的特定氨基酸残基位点;Phe为苯丙氨酸;Leu为亮氨酸;Tyr为酪氨酸;Arg为精氨酸;Ser为丝氨酸;Phe为苯丙氨酸;Leu为亮氨酸;Glu为谷氨酸;His为组氨酸;Val为缬氨酸;Gly为甘氨酸;TIR1为运输抑制剂响应蛋白1;AFB1~ AFB5为生长素响应因子F-Box家族蛋白1~5。
(a)TIR1;(b)AFB1;(c)AFB2;(d)AFB3;(e)AFB4;(f)AFB5Fig. 4 molecular docking analysis of PAA with the auxin receptors TIR1 and AFB1-AFB5 in Arabidopsis(a)TIR1;(b)AFB1;(c)AFB2;(d)AFB3;(e)AFB4;(f)AFB5下载:
全尺寸图片
经计算,PAA与TIR1、AFB1~AFB5的结合能分别为-5.376、-4.801、-5.376、-4.634、-5.695和-5.862 kcal/mol。PAA与AFB5的结合能最低,即亲和力最高,提示其优先被AFB5蛋白识别。这是因为在AFB5中,PAA分子的羧基与其底物结合口袋中的Ser486和Val509形成稳定氢键,同时其苯环与Phe511、Phe124和Phe127残基发生疏水相互作用,所以二者优先识别。
2.4 PAA抑制生长素外输载体PIN2蛋白的内吞作用
不同处理条件下PIN2-GFP幼苗根尖激光共聚焦显微扫描结果如图 5所示。未处理时,PIN2蛋白均匀分布于细胞质膜,细胞内未形成BFA body,表明PIN2在正常条件下保持极性分布;仅BFA处理时,细胞内形成大量BFA body,PIN2蛋白在内膜系统中存在异常聚集;当PAA与BFA共同处理时,细胞内BFA body的形成显著减少。与仅BFA处理时相比,PAA与BFA共同处理时细胞内BFA body的数量显著下降了约70.0%(P < 0.01)。以上结果表明,PAA能抑制生长素外输载体的内吞作用,促进其在质膜上的定位,从而增强细胞内生长素的外排。
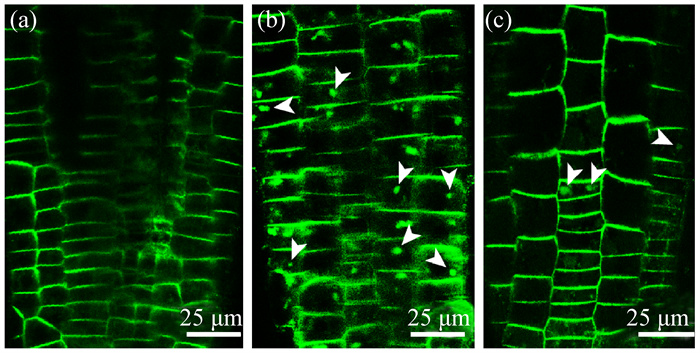 图 5 不同处理时PIN2-GFP幼苗根尖激光共聚焦显微扫描结果(a)未处理;(b)BFA;(c)BEA和PAAFig. 5 results of confocal laser scanning microscopy of PIN2-GFP seedling root tips under different treatments(a) untreated; (b) BFA; (c) added BEA and PAA together下载:
全尺寸图片
3. 讨论
PAA是一种广泛分布于维管植物和非维管植物中的内源生长素,在部分生理功能上与IAA具有相似性,但其信号识别与运输机制仍存在显著差异[26, 29]。本研究通过多角度实验证实,PAA能够激活典型的生长素信号通路,但其作用效能及受体偏好性与IAA有所不同。分子对接分析显示,PAA可与TIR1/AFB家族受体结合,且与AFB5的亲和力最高,提示PAA可能通过不同于IAA的受体选择模式激活下游响应。这一结果拓展了对生长素受体功能多样性的认识,并为解释PAA在部分组织(如侧根发生)中表现出的独特生理效应提供了结构基础。
Ray等[35]在玉米中的生长素结合实验表明,PAA可能是生长素结合位点的竞争性底物。因此,PAA处理激活生长素响应报告基因的表达,可能归因于其与TIR1/AFB等受体的特异性结合,从而促进下游信号转导。这种诱导效应反映了PAA在根组织分化和功能分区中的作用,进一步支持其具有激活生长素信号通路的能力。值得注意的是,PAA对YUC基因家族成员表达的影响呈现分化趋势,AtYUC1、AtYUC2和AtYUC3表达上调,而AtYUC4和AtYUC5则下调。该结果符合生长素生物合成中的反馈调节机制,同时暗示PAA可能通过差异化调控YUC亚家族成员,影响内源生长素合成稳态,进而参与生长素信号的精细调控。
在Col-0植株中,PAA通过激活生长素信号通路并调控根部细胞的分裂和伸长,导致根长显著抑制;而在tir1-1 afb1,2,3植株中,由于关键受体功能缺失,对PAA的响应明显减弱,表现出对根长抑制的耐受性。这一现象与Sugawara等[29]的根伸长实验结果一致,即tir1-1 afb2-3对PAA具有类似于IAA的抗性,进一步支持PAA作为天然生长素的作用,并表明TIR1/AFBs参与其信号转导。Calderón等[36]通过免疫共沉淀实验证实,PAA能增强TIR1/IAA7复合物的形成,但对TIR1/IAA3无显著影响,说明PAA介导受体与不同Aux/IAA蛋白的互作存在特异性。PAA可与TIR1及AFB1~AFB5特异性结合,其结合差异可能在生物学活性及对植物生长的调控中发挥关键作用。
植物生长素具有独特的极性运输特性[37],IAA极性运输依赖内输载体和外排载体的协同作用。例如,内输载体AUX1负责将IAA从细胞外转运至胞内,而外排载体PIN蛋白(如PIN2)介导胞内至胞外的输出,形成极性运输流[38]。2,4-二氯苯氧乙酸(2,4-D)依赖内输载体进入细胞,但难以通过外排载体输出,而1-萘乙酸(1-naphthylacetic acid, NAA)则主要依赖外排载体而不需要内输载体[36]。因此,aux1突变体对2,4-D不敏感但对NAA不耐受,pin2突变体对NAA高度敏感而对2,4-D的响应与Col-0无显著差异。本研究表明,PAA能通过内输载体AUX1进入细胞,但其出细胞过程不依赖PIN2。真菌内酯代谢物BFA可抑制PIN蛋白的再分泌,并诱导形成BFA body囊泡聚集体中[39-41]。PAA能显著抑制BFA诱导的PIN2内吞,减少BFA body形成,揭示其可能通过调控内膜循环过程维持PIN2在质膜上的稳定性。该机制与IAA既有相似性,又可能存在效应强度或动力学差异。PAA对PIN2内吞的抑制能力进一步支持其在维持生长素外排载体极性分布中的作用,从而间接影响生长素的定向运输。
4. 结束语
本研究系统探讨了PAA的信号传导与极性运输机制,表明PAA可显著诱导生长素响应报告基因DR5rev:GFP和DR5:GUS的表达,并能与TIR1及AFB1~AFB5受体特异性结合,其结合模式依赖于和关键氨基酸残基的相互作用,证实PAA可直接激活生长素信号通路。PAA对拟南芥根生长的抑制作用依赖于TIR1、AFB1~AFB3受体的功能,受体突变体tir1-1 afb1,2,3对PAA的耐受性揭示了其与IAA相似的信号感知机制。此外,PAA可以通过生长素内输载体进入细胞,并可抑制BFA诱导的PIN2内吞,表明其通过调控PIN2蛋白循环以维持极性分布,进而影响生长素的极性运输动态。本研究不仅深化了对PAA信号与运输机制的理解,也为阐释植物如何通过差异化感知与转运不同生长素分子以实现信号多样性提供了新依据。
© The editorial department of Journal of Capital Normal University (Natural Science Edition) 2025.This is an open access article under the CC BY-NC-ND 4.0 license (https://creativecommons.org/licenses/by-nc-nd/4.0/). -
图 1 不同物质的量浓度苯乙酸(PAA)诱导生长素响应报告基因表达及其剂量依赖性
注:Anti-GFP为抗绿色荧光蛋白单克隆抗体;Anti-Actin为β-肌动蛋白单克隆抗体。
(a)DR5:GUS植株的染色信号;(b)DR5rev:GFP植株的荧光信号;(c)DR5rev:GFP植株的蛋白质免疫印迹结果Fig. 1 phenylacetic acid(PAA) induces the expression of auxin-responsive reporter genes in a dose-dependent manner
(a)staining signals in DR5: GUS plants; (b) fluorescence signals in DR5rev: GFP plants; (c) changes in the protein expression level of DR5rev: GFP plants
下载:
全尺寸图片
图 2 PAA对Col-0和tir1-1 afb1,2,3拟南芥幼苗根长的影响
注:株数(n)=33;与Col-0相比,bP < 0.01, cP < 0.001。
(a)根长表型; (b)根长统计结果Fig. 2 effect of PAA treatment on root length in Col-0 and auxin receptor mutants (tir1-1 afb1, 2, 3)
(a) root length phenotype; (b) statistical chart of root length
下载:
全尺寸图片
图 3 PAA处理对Col-0、aux1-T和pin2-T突变体幼苗根长的影响
注:n=36;与Col-0相比,dP < 0.05。
(a)根长表型; (b)根长统计结果Fig. 3 effects of PAA treatment on root growth of Col-0, aux1-T, and pin2-T mutant seedlings
(a) root length phenotype; (b) statistical results of root length
下载:
全尺寸图片
图 4 PAA与拟南芥生长素受体的分子对接预测分析
注:字母与数字组合代表蛋白质受体上的特定氨基酸残基位点;Phe为苯丙氨酸;Leu为亮氨酸;Tyr为酪氨酸;Arg为精氨酸;Ser为丝氨酸;Phe为苯丙氨酸;Leu为亮氨酸;Glu为谷氨酸;His为组氨酸;Val为缬氨酸;Gly为甘氨酸;TIR1为运输抑制剂响应蛋白1;AFB1~ AFB5为生长素响应因子F-Box家族蛋白1~5。
(a)TIR1;(b)AFB1;(c)AFB2;(d)AFB3;(e)AFB4;(f)AFB5Fig. 4 molecular docking analysis of PAA with the auxin receptors TIR1 and AFB1-AFB5 in Arabidopsis
(a)TIR1;(b)AFB1;(c)AFB2;(d)AFB3;(e)AFB4;(f)AFB5
下载:
全尺寸图片
图 5 不同处理时PIN2-GFP幼苗根尖激光共聚焦显微扫描结果
(a)未处理;(b)BFA;(c)BEA和PAA
Fig. 5 results of confocal laser scanning microscopy of PIN2-GFP seedling root tips under different treatments
(a) untreated; (b) BFA; (c) added BEA and PAA together
下载:
全尺寸图片
表 1 不同物质的量浓度PAA处理后拟南芥YUC基因相对表达量
Table 1 relative expression levels of YUC genes in Arabidopsis
PAA/(μmol·L-1) AtYUC1 AtYUC2 AtYUC3 AtYUC4 AtYUC5 AtYUC6 AtYUC7 0 1.01±0.20 1.00±0.06 1.00±0.09 1.00±0.09 1.00±0.11 1.00±0.07 1.01±0.14 5.0 1.00±0.17 1.51±0.37 0.57±0.11 1.08±0.25 0.23±0.01 1.04±0.24 0.56±0.17 10.0 1.02±0.31 1.37±0.06 1.51±0.39 1.14±0.14 0.64±0.06 1.16±0.26 1.26±0.39 15.0 1.32±0.36 1.57±0.28a 1.52±0.33a 0.76±0.11a 0.05±0.01a 0.93±0.06 1.12±0.14 注:AtYUC1~ AtYUC7为拟南芥黄素单加氧酶1~拟南芥黄素单加氧酶7;a与0相比,P < 0.05。 -
[1] Teale W D, Paponov I A, Palme K. Auxin in action: signalling, transport and the control of plant growth and development[J]. Nature Reviews Molecular Cell Biology, 2006, 7(11): 847-859. DOI: 10.1038/nrm2020. [2] Saini S, Sharma I, Kaur N, et al. Auxin: a master regulator in plant root development[J]. Plant Cell Reports, 2013, 32(6): 741-757. DOI: 10.1007/s00299-013-1430-5. [3] Waadt R, Seller C A, Hsu P K, et al. Plant hormone regulation of abiotic stress responses[J]. Nature Reviews Molecular Cell Biology, 2022, 23(10): 680-694. DOI: 10.1038/s41580-022-00479-6. [4] Rayle D L, Cleland R. Enhancement of wall loosening and elongation by acid solutions[J]. Plant Physiology, 1970, 46(2): 250-253. doi: 10.1104/pp.46.2.250 [5] Hager A, Menzel H, Krauss A. Experiments and hypothesis concerning the primary action of auxin in elongation growth[J]. Planta, 1971, 100(1): 47-75. DOI: 10.1007/BF00386886. [6] Enders T A, Strader L C. Auxin activity: past, present, and future[J]. American Journal of Botany, 2015, 102(2): 180-196. DOI: 10.3732/ajb.1400285. [7] Zhao Y D. Auxin biosynthesis and its role in plant development[J]. Annual Review of Plant Biology, 2010, 61: 49-64. DOI: 10.1146/annurev-arplant-042809-112308. [8] Jia Z T, Giehl R F H, von Wirén N. Nutrient-hormone relations: driving root plasticity in plants[J]. Molecular Plant, 2022, 15(1): 86-103. DOI: 10.1016/j.molp.2021.12.004. [9] Anfang M, Shani E. Transport mechanisms of plant hormones[J]. Current Opinion in Plant Biology, 2021, 63: 102055. DOI: 10.1016/j.pbi.2021.102055. [10] Ubeda-Tomás S, Beemster G T S, Bennett M J. Hormonal regulation of root growth: integrating local activities into global behaviour[J]. Trends in Plant Science, 2012, 17(6): 326-331. DOI: 10.1016/j.tplants.2012.02.002. [11] Robert H S, Friml J. Auxin and other signals on the move in plants[J]. Nature Chemical Biology, 2009, 5(5): 325-332. DOI: 10.1038/nchembio.170. [12] Semeradova H, Montesinos J C, Benkova E. All roads lead to auxin: post-translational regulation of auxin transport by multiple hormonal pathways[J]. Plant Communications, 2020, 1(3): 100048. DOI: 10.1016/j.xplc.2020.100048. [13] Titapiwatanakun B, Murphy A S. Post-transcriptional regulation of auxin transport proteins: cellular trafficking, protein phosphorylation, protein maturation, ubiquitination, and membrane composition[J]. Journal of Experimental Botany, 2009, 60(4): 1093-1107. DOI: 10.1093/jxb/ern240. [14] Křeček P, Skůpa P, Libus J, et al. The PIN-FORMED (PIN) protein family of auxin transporters[J]. Genome Biology, 2009, 10(12): 249. DOI: 10.1186/gb-2009-10-12-249. [15] Stepanova A N, Robertson-Hoyt J, Yun J, et al. TAA1-mediated auxin biosynthesis is essential for hormone crosstalk and plant development[J]. Cell, 2008, 133(1): 177-191. DOI: 10.1016/j.cell.2008.01.047. [16] Cheng Y F, Dai X H, Zhao Y D. Auxin biosynthesis by the YUCCA flavin monooxygenases controls the formation of floral organs and vascular tissues in Arabidopsis[J]. Genes & Development, 2006, 20(13): 1790-1799. DOI: 10.1101/gad.1415106. [17] Zhao Y D. Auxin biosynthesis: a simple two-step pathway converts tryptophan to indole-3-acetic acid in plants[J]. Molecular Plant, 2012, 5(2): 334-338. DOI: 10.1093/mp/ssr104. [18] Song C H, Zhang D, Zheng L W, et al. Genome-wide identification and expression profiling of the YUCCA gene family in Malus domestica[J]. Scientific Reports, 2020, 10: 10866. DOI: 10.1038/s41598-020-66483-y. [19] Jang Y J, Kim T, Lin M K, et al. Genome-wide gene network uncover temporal and spatial changes of genes in auxin homeostasis during fruit development in strawberry (F. × ananassa)[J]. BMC Plant Biology, 2024, 24(1): 876. DOI: 10.1186/s12870-024-05577-5. [20] Qi L L, Kwiatkowski M, Chen H H, et al. Adenylate cyclase activity of TIR1/AFB auxin receptors in plants[J]. Nature, 2022, 611(7934): 133-138. DOI: 10.1038/s41586-022-05369-7. [21] Wang R H, Estelle M. Diversity and specificity: auxin perception and signaling through the TIR1/AFB pathway[J]. Current Opinion in Plant Biology, 2014, 21: 51-58. DOI: 10.1016/j.pbi.2014.06.006. [22] Fendrych M, Leung J, Friml J. TIR1/AFB-Aux/IAA auxin perception mediates rapid cell wall acidification and growth of Arabidopsis hypocotyls[J]. eLife, 2016, 5: e19048. DOI: 10.7554/eLife.19048. [23] Cook S D. An historical review of phenylacetic acid[J]. Plant & Cell Physiology, 2019, 60(2): 243-254. DOI: 10.1093/pcp/pcz004. [24] Ludwig-Müller J, Cohen J D. Identification and quantification of three active auxins in different tissues of Tropaeolum majus[J]. Physiologia Plantarum, 2002, 115(2): 320-329. DOI: 10.1034/j.1399-3054.2002.1150220.x. [25] Cook S D, Ross J J. The auxins, IAA and PAA, are synthesized by similar steps catalyzed by different enzymes[J]. Plant Signaling & Behavior, 2016, 11(11): e1250993. DOI: 10.1080/15592324.2016.1250993. [26] Perez V C, Zhao H H, Lin M K, et al. Occurrence, function, and biosynthesis of the natural auxin phenylacetic acid (PAA) in plants[J]. Plants, 2023, 12(2): 266. DOI: 10.3390/plants12020266. [27] Hayashi K I, Arai K, Aoi Y, et al. The main oxidative inactivation pathway of the plant hormone auxin[J]. Nature Communications, 2021, 12: 6752. DOI: 10.1038/s41467-021-27020-1. [28] Aoi Y, Tanaka K, Cook S D, et al. GH3 auxin-amido synthetases alter the ratio of indole-3-acetic acid and phenylacetic acid in Arabidopsis[J]. Plant & Cell Physiology, 2020, 61(3): 596-605. DOI: 10.1093/pcp/pcz223. [29] Sugawara S, Mashiguchi K, Tanaka K, et al. Distinct characteristics of indole-3-acetic acid and phenylacetic acid, two common auxins in plants[J]. Plant & Cell Physiology, 2015, 56(8): 1641-1654. DOI: 10.1093/pcp/pcv088. [30] Dharmasiri N, Dharmasiri S, Estelle M. The F-box protein TIR1 is an auxin receptor[J]. Nature, 2005, 435(7041): 441-445. DOI: 10.1038/nature03543. [31] Fischer U, Ikeda Y, Ljung K, et al. Vectorial information for Arabidopsis planar polarity is mediated by combined AUX1, EIN2, and GNOM activity[J]. Current Biology, 2006, 16(21): 2143-2149. DOI: 10.1016/j.cub.2006.08.091. [32] Men S Z, Boutté Y, Ikeda Y, et al. Sterol-dependent endocytosis mediates post-cytokinetic acquisition of PIN2 auxin efflux carrier polarity[J]. Nature Cell Biology, 2008, 10(2): 237-244. DOI: 10.1038/ncb1686. [33] 王萌, 易涛, 门淑珍. 拟南芥突变体表型分析在本科实验教学中的应用[J]. 生物学通报, 2017, 52(11): 28-31. Wang Meng, Yi Tao, Men Shuzhen. Application of Arabidopsis mutant phenotype analysis in undergraduate experimental teaching[J]. Bulletin of Biology, 2017, 52(11): 28-31. [34] 梁梦晓, 覃超, 刘华彬, 等. 生长素调控根向重力性在植物激素实验教学中的应用[J]. 生物学通报, 2024, 59(1): 1-5. DOI: 10.3969/j.issn.0006-3193.2024.01.001. Liang Mengxiao, Qin Chao, Liu Huabin, et al. The application of root gravitropism regulated by auxin in experimental courses of plant hormones[J]. Bulletin of Biology, 2024, 59(1): 1-5. doi: 10.3969/j.issn.0006-3193.2024.01.001 [35] Ray P M, Dohrmann U, Hertel R. Specificity of auxin-binding sites on maize coleoptile membranes as possible receptor sites for auxin action[J]. Plant Physiology, 1977, 60(4): 585-591. doi: 10.1104/pp.60.4.585 [36] Calderón V L I A, Lee S, De Oliveira C, et al. A combinatorial TIR1/AFB-Aux/IAA co-receptor system for differential sensing of auxin[J]. Nature Chemical Biology, 2012, 8(5): 477-485. DOI: 10.1038/nchembio.926. [37] Beyer E M Jr. Auxin transport: a new synthetic inhibitor[J]. Plant Physiology, 1972, 50(3): 322-327. DOI: 10.1104/pp.50.3. 322. [38] Yang Y D, Hammes U Z, Taylor C G, et al. High-affinity auxin transport by the AUX1 influx carrier protein[J]. Current Biology, 2006, 16(11): 1123-1127. DOI: 10.1016/j.cub.2006.04.029. [39] Jásik J, Schmelzer E. Internalized and newly synthesized Arabidopsis PIN-FORMED2 pass through Brefeldin A compartments: a new insight into intracellular dynamics of the protein by using the photoconvertible fluorescence protein Dendra2 as a tag[J]. Molecular Plant, 2014, 7(10): 1578-1581. DOI: 10.1093/mp/ssu052. [40] Kleine-Vehn J, Friml J. Polar targeting and endocytic recycling in auxin-dependent plant development[J]. Annual Review of Cell and Developmental Biology, 2008, 24: 447-473. DOI: 10.1146/annurev. cellbio.24.110707.175254. [41] Robinson D G, Jiang L W, Schumacher K. The endosomal system of plants: charting new and familiar territories[J]. Plant Physiology, 2008, 147(4): 1482-1492. DOI: 10.1104/pp.108.120105.
