
Comparison of the efficiency of different promoters driving foreign gene expression in microglia
-
摘要: 为了开发适用于腺相关病毒(AAV)载体的改造,并具备高度神经细胞组织特异性的启动子,以实现AAV基因治疗药物对神经系统的精准靶向。本研究将巨细胞病毒(CMV)、鸡β-肌动蛋白(CBA)和含有CMV与CBA的复合启动子(CBH)共3种强启动子分别装入AAV载体中,研究三者在小胶质细胞中驱动外源基因表达的能力。体外合成CMV、CBA和CBH启动子序列,并克隆在pSCAAV-EGFP载体上,构建了pLMV-EGFP、pLBA-EGFP和pLBH-EGFP共3个真核表达载体,分别用于驱动增强绿色荧光蛋白(EGFP)的表达。通过HB101感受态细胞转化得到重组质粒,在测序验证后转染到小鼠小胶质(BV2)细胞中。转染48 h后,荧光显微镜观察细胞中EGFP的表达情况,流式细胞仪和聚合酶链式反应(PCR)法检测EGFP的表达效率。结果表明3种启动子均可在BV2细胞内驱动外源基因表达,但启动效率存在差异。pLMV-EGFP转染后的EGFP阳性细胞百分数为4.92%,明显高于另外2种启动子。荧光定量PCR的结果与流式细胞仪检测结果一致,CMV对应细胞中的EGFP表达量最高、CBA次之、CBH最低。因此,CMV启动子在AAV载体上对小胶质细胞的专一性更好,可作为优选启动子用于神经系统基因治疗新药的开发,同时该结果也可为后续探索更多毒性弱、成本低的AAV基因治疗药物提供参考。Abstract: In order to develop promoters suitable for adeno-associated virus (AAV) vector modification and with high neural cell tissue specificity, and achieve the targeting of AAV gene therapy drugs on the nervous system. Three strong promoters, cytomegalovirus (CMV), chicken β-actin (CBA), and a composite promoter containing CMV and CBA (CBH), were each inserted into the AAV viral vector to investigate their ability to drive exogenous gene expression in microglia. Firstly, the sequences of the CMV, CBA and CBH promoters were synthesized in vitro. Secondly, they were inserted into the pSCAAV-EGFP vector, resulting in three eukaryotic expression vectors(pLMV-EGFP, pLBA-EGFP, and pLBH-EGFP) driving the expression of enhanced green fluorescent protein(EGFP). Following transformation into HB101 competent cells and sequencing verification, the recombinant plasmids were transfected into mouse microglial (BV2) cells. Finally, after transfection 48 h, the expression of EGFP in the cells was observed under a fluorescence microscope, and the efficiency of EGFP expression was detected by flow cytometry and polymerase chain reaction (PCR). The results showed that all three promoters could drive exogenous gene expression in BV2 cells, but there were differences in activation efficiency. The percentage of EGFP-positive cells after transfection with pLMV-EGFP was 4.92%, significantly higher than the other two promoters. The results of quantitative PCR were consistent with those of flow cytometry, showing the highest EGFP expression in cells corresponding to the CMV promoter, followed by CBA, and the lowest for CBH. Therefore, the CMV promoter has better specificity for microglia on the AAV vector and can be used as the preferred promoter for the development of new drugs for gene therapy in the nervous system. Additionally, these findings may also provide a reference for subsequent exploration of more AAV gene therapy drugs with lower toxicity and cost.
-
Keywords:
- CBH promoter /
- CBA promoter /
- CMV promoter /
- microglia /
- EGFP
-
0. 引言
基因治疗成功的关键之一在于利用安全的载体将基因药物专一且高效地递送到目标细胞中。腺相关病毒(adeno-associated virus,AAV)因其高安全性、低免疫原性和稳定的表达特性而成为基因治疗领域中的优选工具。然而,传统的AAV载体在实际应用中仍面临一些挑战,包括较低的转导效率、有限的载体容量以及不理想的组织或细胞靶向性[1-3]。尽管已有若干基于AAV的基因治疗药物获得批准,但现有AAV载体仍存在一些缺陷,尤其是组织特异性不足,导致在某些特定组织的感染效率较低[4-5]。以神经系统疾病为例,目前使用的AAV载体穿透血脑屏障的能力有限,即使是性能最佳的腺相关病毒9型(adeno-associated virus serotype 9,AAV9)也只能实现有限的穿越,导致药物如索伐瑞韦(Zolgensma)存在剂量大、成本高和潜在毒性等问题[6-9]。为了提升AAV载体在目标细胞中的特异性表达,研究者探索了多种策略:改造AAV的衣壳蛋白来增强其靶向性和转导效率。这包括创建嵌合血清型[10],即结合不同AAV血清型的衣壳蛋白特点,以及修饰调控衣壳蛋白的Cap基因[11],从而改变病毒颗粒的表面特性,以提高对特定细胞类型的亲和力。对AAV载体的基因组进行编辑和修饰,以增强其在特定细胞或组织中的表达。这可以通过使用针对特定细胞或组织具有选择性的启动子[12],利用微小核糖核酸(micro ribonucleic acid,mRNA)进行转录后调控[13],或是运用精准的基因编辑技术直接治疗疾病[14-15]来实现。在选择合适的AAV血清型基础上,选用能在目标细胞中特异性表达目的基因的启动子,是提高AAV载体组织或细胞靶向性的一种行之有效的策略。
启动子作为基因工程表达载体的核心元件,对基因的转录和表达起决定性作用。提高基因治疗药物启动子的组织专一性,可以在一定程度上解决上述问题,实现以更低剂量达到相同疗效的同时,降低不良反应和成本。巨细胞病毒(cytomegalovirus,CMV)、鸡β-肌动蛋白(chicken β-actin,CBA)和含有CMV与CBA的复合启动子(hybrid form of the CMV and CBA promoter,CBH)是3个广泛使用的强效启动子,能在体外培养的多种细胞及转基因动物的多个组织中有效激活目的基因的表达,但在不同组织或细胞中的活性存在显著差异[16-18]。如Musarò等[19]表明CMV和CBH在肌肉和心脏组织中有较高的启动效率,CBA则在肌肉、卵巢和肝脏等组织中表达更为显著。尽管现有研究已对多种启动子在不同类型细胞中的活性进行了初步探索,但针对CMV、CBA和CBH这3种启动子在小胶质细胞中直接比较的研究仍然匮乏[3, 16, 18]。
本研究在同一实验条件下,系统地比较CMV、CBA和CBH启动子在小胶质细胞中的转录活性,构建含有CMV、CBA和CBH启动子的pLMV-EGFP、pLBA-EGFP和pLBH-EGFP真核表达载体,并转染至小胶质细胞中,观察增强绿色荧光蛋白(enhancer green fluorescent protein,EGFP)的表达情况,利用流式细胞仪和聚合酶链式反应(polymerase chain reaction,PCR)技术评估各个启动子驱动外源基因表达的效率。研究结果有助于揭示不同启动子对小胶质细胞组织专一性的影响,并为神经系统疾病的基因治疗以及AAV载体的优化提供宝贵的理论依据和实验数据,从而有望为基因治疗领域的发展带来新的突破。
1. 实验部分
1.1 试剂
小鼠小胶质(BV2)细胞,质粒包括pSCMV、pSLBH、pSCAAV-EGFP和pSCLS-EGFP-BbsI,LB培养基,LB琼脂平板(氨苄抗性)均购自苏州瑞诺元生物科技有限公司;质粒小提试剂盒购自凯杰生物工程有限公司;限制性核酸内切酶包括BsaI-HFV2(编号为R3733S)、XhoI(编号为R0146S)、BbsⅠ(编号为R0539L)、10×rCutsmart(编号为B7204S)、NcoI-HF(编号为R3193S)、EcoRI(编号为R0101V)、T4脱氧核糖核酸(deoxyribo nucleic acid,DNA)连接酶(含T4 DNA连接酶Buffer(10×))(编号为M0202S)、PCR预混液(编号为M0543S)均购自纽英伦生物技术(北京)有限公司;DMEM培养基、胎牛血清(FBS)、青霉素/链霉素混合液(P/S)、胰蛋白酶、TRIzol试剂、Lipofectamine® 3000转染试剂、HB101感受态细胞均购自上海唯地生物技术有限公司;台盼蓝(编号为LM-0112D)、AO/PI染料均购自上海联迈生物工程有限公司;核糖核酸(ribonucleic acid,RNA)反转录试剂盒(编号为R323-01)购自南京诺唯赞生物科技股份有限公司;引物及探针均由苏州金唯智生物科技有限公司合成;实验用水均为超纯水。
1.2 仪器
使用德国艾本德股份公司生产的200和10 μL微量移液器移取溶液;使用梅特勒-托利多科技有限公司生产的XS204型电子天平称质量;使用美国赛默飞世尔科技有限公司生产的HERACELL 240i型CO2培养箱培养细胞;使用上海知仪器有限公司生产的ZHZY-BF型摇床振荡培养细胞;使用美国Bio-Rad公司生产的T100梯度PCR仪合成并扩增目的片段;使用美国赛默飞世尔科技有限公司生产的ABI 7500型荧光定量PCR仪检测荧光蛋白的mRNA表达水平;使用美国Bio-Rad公司生产的041BR322644型电泳进行琼脂糖凝胶电泳;使用日本尼康精机有限公司生产的ECLIPSE Ti2型荧光显微镜观察细胞生长状态;使用上海睿钰生物科技有限公司生产的Rigrl S2型全自动荧光细胞分析仪对细胞计数;使用美国赛默飞世尔科技有限公司生产的Attune NxT型流式细胞仪分析鉴定细胞群;使用德国默克密理博公司生产的Milli-Q IQ 7000型超纯水系统过滤实验用水,电阻率为18.2 mΩ·cm。
1.3 启动子片段的合成
CMV和CBH通过PCR扩增得到。根据启动子序列各设计2对引物(表 1),由于CMV和CBH序列中含有相关限制性内切酶序列不能直接进行酶切,所以在引物中分别加入限制性内切酶XhoⅠ、BsaⅠ和NcoⅠ的识别位点(表 1序列中斜体部分),引物均由苏州金唯智生物科技有限公司合成。将合成完毕的引物干粉稀释到10 pmol/μL,扩增模板pSCMV和pSCBH稀释10倍至质量浓度分别为8.0和15.1 ng/μL。PCR反应程序为,98 ℃预变性5 min,98 ℃变性30 s、65 ℃退火20 s、72 ℃延伸30 s,反应30个循环后,72 ℃延伸5 min, 回收扩增产物,得到纯化的CMV和CBH启动子片段。CBA启动子直接以pSCLS-EGFP-BbsI质粒为模板,使用XhoI+BbsI进行双酶切获得。
表 1 不同片段的PCR扩增引物序列片段 引物名称 序列 CMV NN-1F GTTAAGGTCTCCTCGAGCGTTACATAACTTACGGTAAATGGC NN-1R GTTAAGGTCTCCCATGGTGGCGACCGGTGGA CBH NN-5 TCTTTCCTCGAGGCGTTACATAACTTACGGTAA NN-3 GTTAAGGTCTCCCATGGTGGCACCGGTCCAACCTGAAAAAAAGTGATTTCAGGC 注:CMV为巨细胞病毒;CBH为含有CMV与鸡β-肌动蛋白(CBA)的复合启动子;PCR为聚合酶链式反应;斜体画线部分为XhoⅠ、BsaⅠ和NcoⅠ的识别位点。 1.4 含不同启动子的重组质粒的构建及鉴定
取pSCAAV-GFP载体2 μg,纯化后的CMV和CBH各1 μg,按照表 2分别配制酶切反应体系,37 ℃水浴锅反应2~3 h完成酶切。利用T4 DNA连接酶将酶切产物连接至pSCAAV-EGFP质粒上,按照表 3配置连接反应体系,室温放置1 h,构建pLBA-EGFP、pLMV-EGFP和pLBH-EGFP重组质粒。将重组质粒与解冻后的HB101感受态细胞混匀冰浴30 min、42 ℃热激45 s、冰浴2 min,加入LB培养基33 ℃摇床振荡培养1 h后涂布于LB琼脂平板上,33 ℃培养过夜;次日,各挑选3个阳性克隆,接种于LB培养基中,33 ℃培养过夜;采用质粒小提试剂盒进行质粒抽提,将抽提产物送苏州金唯智生物科技有限公司测序,验证重组质粒是否构建成功。
表 2 目的基因和载体的酶切体系酶切对象 试剂 体积/μL CBA pSCLS-EGFP-BbsI 5.5 XhoⅠ 2.0 BbsⅠ 2.0 10×rCutsmart 5.0 H2O 35.5 CMV单酶切 CMV 15.0 BsaⅠ-HFV2 5.0 10×rCutsmart 5.0 H2O 25.0 CBH双酶切 CBH 10.0 BsaⅠ-HFV2 2.5 XhoⅠ 2.5 10×rCutsmart 5.0 H2O 30.0 载体双酶切 pSCAAV-EGFP 3.0 XhoⅠ 1.0 NcoⅠ-HF 1.0 10×rCutsmart 2.0 H2O 13.0 表 3 载体和目的片段的连接体系重组质粒 试剂 体积/μL pLBA-EGFP pSCAAV-EGFP 5.6 CBA 4.5 T4 DNA连接酶Buffer(10×) 2.0 T4 DNA连接酶 1.0 H2O 6.9 pLMV-EGFP pSCAAV-EGFP 2.0 CMV 2.0 T4 DNA连接酶Buffer(10×) 2.0 T4 DNA连接酶 1.0 H2O 13.0 pLBH-EGFP pSCAAV-EGFP 2.0 CBH 3.0 T4 DNA连接酶Buffer(10×) 2.0 T4 DNA连接酶 1.0 H2O 12.0 注:DNA为脱氧核糖核酸。 1.5 BV2细胞的培养及转染
取出-80 ℃冻存的BV2细胞,复苏后用DMEM完全培养基(含1.00% P/S抗生素和10.00%FBS),在37 ℃、5.00%CO2培养箱中恒温培养,每周传代2~3次,并用0.40%台盼蓝染色计数,记录活细胞密度和活细胞率。细胞转染前24 h,用胰蛋白酶消化BV2细胞,DMEM培养基重悬细胞,计数后按一定比例铺于6孔板中,24 h后细胞长至约70.00%融合时进行转染。取1 μg待转染质粒,利用脂质体转染法将其转染到BV2细胞中,具体步骤参见Lipofectamine™ 3000试剂说明书。转染48 h后利用荧光显微镜观察EGFP的表达情况。
1.6 流式细胞仪分析EGFP表达强度
取一皿未转染的BV2细胞作为对照,与转染启动子的BV2细胞一起离心,离心力为300 g离心5 min,弃上清液,各加入200.0 μL DMEM培养基重悬细胞沉淀;取100.0 μL BV2细胞原液于1.5 mL离心管中,标记为阴性对照管;选用转染pCMV-EGFP 1 μg质粒的细胞样品作为FITC-EGFP管;取100.0 μL转染启动子的BV2细胞重悬液于1.5 mL离心管中,标记为样品管;向阴性对照管中加入600.0 μL DMEM培养基,FITC-EGFP管中加入300.0 μL DMEM培养基,样品管每管加入300.0 μL DMEM培养基和5.0 μL AO/PI染料,然后将所有管置于冰上备用。最后,以1×104个细胞/管的密度进行流式细胞仪检测,分析EGFP阳性细胞的比例。
1.7 荧光定量PCR检测EGFP表达水平
收集转染后的BV2细胞,利用Trizol试剂抽提细胞总RNA,提取出的RNA用反转录试剂盒反转录为互补DNA后,将互补DNA稀释5倍后作为模板,内参基因为甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH),引物及探针序列见表 4,进行荧光定量PCR检测。反应体系为5.0 μL样品、7.5 μL PCR预混液、1.0 μL引物R、1.0 μL引物F、1.0 μL探针和4.5 μL H2O,95 ℃预变性10 min、95 ℃变性15 s、59 ℃退火延伸30 s,反应40个循环,72 ℃延伸5 min,用Grahpad prism 8.0软件进行多重比较分析。
表 4 荧光定量PCR所用引物和探针基因 序列 5'修饰 3'修饰 GAPDH 引物F:gctTGGGCTTCCTTTAGGATTTGGC — — 引物R:TTGCCGTGAGTGGAGTCATA — — 探针:CCCTGGTGACCAGGCGCCCA FAM BHQ1 EGFP 引物F:AGCTTGCCGGTGGTGCAGAT — — 引物R:CGAGCTGGACGGCGACGTAA — — 探针:CCTCGCCCTCGCCGGACACG VIC MGB 注:GAPDH为甘油醛-3-磷酸脱氢酶;EGFP为增强绿色荧光蛋白;FAM和VIC为荧光报告基团;BHQ1和MGB为淬灭基团;—为无数据。 2. 结果
2.1 目的启动子合成及重组质粒构建结果
以CBA启动子合成质粒pSCQZ-EGFP为模板,XhoⅠ、EcoRⅠ酶切回收后成功得到了大小约713 bp的CBA启动子片段(图 1(a));以pSCMV和pSLBH为模板PCR扩增CMV、CBH启动子片段,PCR产物经1.00%琼脂糖凝胶电泳检测后,获得了清晰的约514 bp的CMV片段(图 1(b))和约838 bp的CBH片段(图 1(c)),与预期结果吻合,说明目的启动子片段扩增成功。获取目的启动子片段后,通过酶切连接构建了pLBA-EGFP、pLMV-EGFP和pLBH-EGFP重组质粒,转化培养后抽质粒进一步测序验证表明:3种质粒的序列与设计序列一致,重组质粒构建成功。
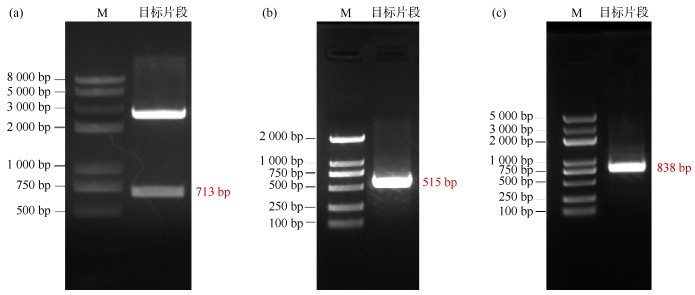 图 1 3种启动子扩增后电泳检测结果(a)CBA;(b)CMV;(c)CBH注:M为DNA相对分子质量标记。
 下载:
全尺寸图片
2.2 细胞转染结果
经pLBA-EGFP、pLMV-EGFP和pLBH-EGFP质粒转染BV2细胞48 h后,在倒置荧光显微镜下观察的结果如图 2所示:在白光下细胞生长状态良好、胞浆透亮、胞核隐约可见;蓝光激发时,细胞内均有绿色荧光出现。说明3种启动子在BV2细胞内均可表达。
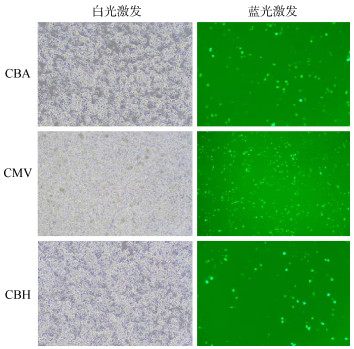 图 2 重组质粒转染BV2细胞下载:
全尺寸图片
2.3 流式细胞仪检测结果
不同启动子转染BV2细胞后的流式检测结果为散点图(图 3),可知,阴性对照的结果为0,检测过程无污染,结果有效。在相同剂量下,BV2细胞中pLMV-EGFP转染后的EGFP阳性细胞百分数为4.92%,而pLBH-EGFP和pLBA-EGFP对应的百分数分别为2.16%和3.60%,相较于CBH和CBA启动子,CMV启动子在AAV载体上对小胶质细胞的表达效果最强。
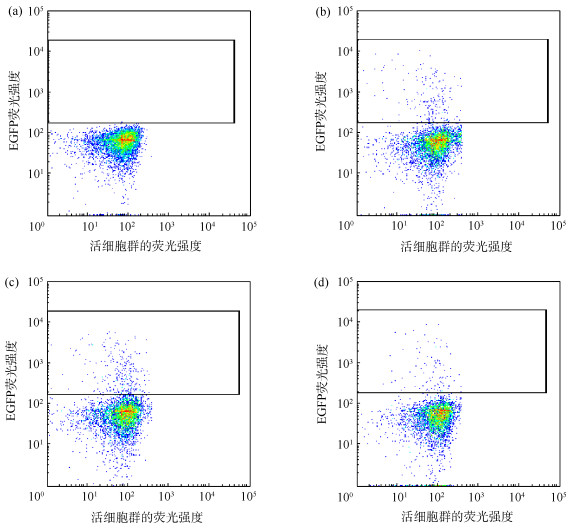 图 3 不同启动子转染BV2细胞散点图(a)BV2阴性对照;(b)CBA;(c)CMV;(d)CBH下载:
全尺寸图片
2.4 荧光定量PCR结果
通过荧光定量PCR检测不同转染组细胞EGFP基因表达水平,按照从低到高的顺序CBH、CBA和CMV的相对表达量分别为0.44、0.53和1.00,CMV与CBH、CMV与CBA、CBA与CBH两两相比,结果差异均有统计学意义(t=19.54、55.61、2.92,P < 0.05),表明3个启动子在BV2细胞中驱动外源基因表达的能力存在显著差异,对应的EGFP表达量由高到低分别为CMV、CBA、CBH,与流式细胞仪检测结果一致。
3. 讨论
AAV拥有一个4.7 kb的单链基因组,当去除约4.4 kb的病毒基因组后,可以与类似大小的外源DNA片段组装。鉴于AAV载体在包装外源基因时存在长度限制,临床上通常需要选择较小的启动子,如CMV、CBH和CBA。CMV启动子能够提供高水平的初始神经表达,但随时间推移表达水平会有所下降[20]。CBA启动子则表现出广泛的神经表达,尽管在运动神经元(motor neuron,MN)中的表达较低。相比之下,CBH启动子能够在CMV或CBA观察到的所有细胞类型(包括MN)中提供稳定而强大的长期表达。通过对AAV载体的衣壳蛋白进行工程化改造以及对基因组进行精确地编辑和修饰,可以显著提高AAV载体在基因治疗中的应用潜力。选择合适的启动子对于实现目标细胞或组织的特异性表达至关重要,而CMV、CBA和CBH等小型启动子在这一过程中扮演了重要的角色。本研究比较了3种启动子CMV、CBA和CBH在体外培养的BV2细胞中的表达强弱,表明CMV启动子在驱动小胶质细胞中外来基因的表达方面具有更高的效率。在未来研究中,可进一步探究将多种启动子进行组合优化,将实验结果在动物模型中进行进一步的验证,以提高基因治疗药物的靶向性和疗效。
4. 结束语
本研究利用绿色荧光蛋白报告系统,通过荧光显微镜观察、流式细胞分析、荧光定量PCR等手段,比较了3种启动子CBH、CMV和CBA在体外培养的BV2细胞中的表达强弱,相较于CBA和CBH启动子,CMV启动子在驱动小胶质细胞中外来基因的表达方面具有更高的效率。这一结果对于优化基因药物启动子的组织专一性选择,以及开发低毒性、成本效益高的基因治疗新药具有重要的科学意义和应用价值。
-
图 1 3种启动子扩增后电泳检测结果(a)CBA;(b)CMV;(c)CBH
注:M为DNA相对分子质量标记。
下载:
全尺寸图片
图 2 重组质粒转染BV2细胞
下载:
全尺寸图片
图 3 不同启动子转染BV2细胞散点图(a)BV2阴性对照;(b)CBA;(c)CMV;(d)CBH
下载:
全尺寸图片
表 1 不同片段的PCR扩增引物序列
片段 引物名称 序列 CMV NN-1F GTTAAGGTCTCCTCGAGCGTTACATAACTTACGGTAAATGGC NN-1R GTTAAGGTCTCCCATGGTGGCGACCGGTGGA CBH NN-5 TCTTTCCTCGAGGCGTTACATAACTTACGGTAA NN-3 GTTAAGGTCTCCCATGGTGGCACCGGTCCAACCTGAAAAAAAGTGATTTCAGGC 注:CMV为巨细胞病毒;CBH为含有CMV与鸡β-肌动蛋白(CBA)的复合启动子;PCR为聚合酶链式反应;斜体画线部分为XhoⅠ、BsaⅠ和NcoⅠ的识别位点。 表 2 目的基因和载体的酶切体系
酶切对象 试剂 体积/μL CBA pSCLS-EGFP-BbsI 5.5 XhoⅠ 2.0 BbsⅠ 2.0 10×rCutsmart 5.0 H2O 35.5 CMV单酶切 CMV 15.0 BsaⅠ-HFV2 5.0 10×rCutsmart 5.0 H2O 25.0 CBH双酶切 CBH 10.0 BsaⅠ-HFV2 2.5 XhoⅠ 2.5 10×rCutsmart 5.0 H2O 30.0 载体双酶切 pSCAAV-EGFP 3.0 XhoⅠ 1.0 NcoⅠ-HF 1.0 10×rCutsmart 2.0 H2O 13.0 表 3 载体和目的片段的连接体系
重组质粒 试剂 体积/μL pLBA-EGFP pSCAAV-EGFP 5.6 CBA 4.5 T4 DNA连接酶Buffer(10×) 2.0 T4 DNA连接酶 1.0 H2O 6.9 pLMV-EGFP pSCAAV-EGFP 2.0 CMV 2.0 T4 DNA连接酶Buffer(10×) 2.0 T4 DNA连接酶 1.0 H2O 13.0 pLBH-EGFP pSCAAV-EGFP 2.0 CBH 3.0 T4 DNA连接酶Buffer(10×) 2.0 T4 DNA连接酶 1.0 H2O 12.0 注:DNA为脱氧核糖核酸。 表 4 荧光定量PCR所用引物和探针
基因 序列 5'修饰 3'修饰 GAPDH 引物F:gctTGGGCTTCCTTTAGGATTTGGC — — 引物R:TTGCCGTGAGTGGAGTCATA — — 探针:CCCTGGTGACCAGGCGCCCA FAM BHQ1 EGFP 引物F:AGCTTGCCGGTGGTGCAGAT — — 引物R:CGAGCTGGACGGCGACGTAA — — 探针:CCTCGCCCTCGCCGGACACG VIC MGB 注:GAPDH为甘油醛-3-磷酸脱氢酶;EGFP为增强绿色荧光蛋白;FAM和VIC为荧光报告基团;BHQ1和MGB为淬灭基团;—为无数据。 -
[1] 卢森林, 刘欣元, 王吉莉, 等. 病毒载体介导的基因治疗在2型糖尿病中的研究进展[J]. 中国临床药理学与治疗学, 2022, 27(7): 800-807. [2] 徐文佳, 王凤山. 基于不同病毒载体的内皮抑素基因治疗的研究进展[J]. 中国药学杂志, 2021, 56(24): 1962-1967. [3] 代新岳, 张磊. 血友病AAV载体基因治疗研究进展[J]. 中国细胞生物学学报, 2022, 44(1): 87-92. [4] 李雅惠. 小鼠生精细胞AAV特异表达载体的构建及表达验证[D]. 太原: 山西医科大学, 2020. [5] 翟贯星, 傅卫辉, 徐建青, 等. 腺相关病毒载体优化的研究进展[J]. 复旦学报(医学版), 2021, 48(6): 827-833. [6] 吕亚丰, 曹春雨, 田国帅, 等. 一种用于神经系统药物递送的AAV病毒载体: CN202210283090.4[P]. 2024-03-02. [7] 吴会芳, 胡丹, 李泉晓, 等. 延长腺相关病毒递送药物的半衰期提高治疗效果[J]. 工程(英文), 2023, 21(2): 203-213. [8] 韩磊, 汤洪海, 王大奇, 等. OTOF基因突变听神经病的治疗进展[J]. 中国眼耳鼻喉科杂志, 2023, 23(2): 117-122. [9] 刘楚乔, 张鹏, 付莉莉, 等. 遗传性视网膜疾病基因治疗的研究进展[J]. 中国医药工业杂志, 2023, 54(10): 1403-1410. [10] GAO G, VANDENBERGHE L H, ALVIRA M R, et al. Clades of adenoassociated viruses are widely disseminated in human tissues[J]. Journal of Virology, 2004, 78(12): 6381-6388. doi: 10.1128/JVI.78.12.6381-6388.2004 [11] SHI W, BARTLETT J S. RGD inclusion in VP3 provides adeno-associated virus type 2(AAV2)-based vectors with a heparan sulfate-independent cell entry mechanism[J]. Molecular Therapy, 2003, 7(4): 515-525. doi: 10.1016/S1525-0016(03)00042-X [12] RIED M U, GIROD A, LEIKE K, et al. Adeno-associated virus capsids displaying immunoglobulin-binding domains permit antibody-mediated vector retargeting to specific cell surface receptors[J]. Journal of Virology, 2002, 76(9): 4559-4566. doi: 10.1128/JVI.76.9.4559-4566.2002 [13] DAVIDSON B L, STEIN C S, HETH J A, et al. Recombinant adeno-associated virus type 2, 4, and 5 vectors: transduction of variant cell types and regions in the mammalian central nervous system[J]. Proceedings of the National Academy of Sciences of the United States of America, 2000, 97(7): 3428-3432. [14] 覃鸿妮, 谢钰珍, 马傲, 等. 利用CRISPR/Cpf1系统构建人ABCG1和ABCG4基因敲除的293T细胞株[J]. 西南农业学报, 2019, 32(4): 741-750. [15] 覃鸿妮, 谢钰珍, 杨晨晨, 等. 慢病毒载体介导稳定表达Cas9基因的293T细胞系构建及其基因编辑效率验证[J]. 扬州大学学报(农业与生命科学版), 2020, 41(4): 29-35+45. [16] MELIANI A, BOISGERAULT F, FITZPATRICK Z, et al. Enhanced liver gene transfer and evasion of preexisting humoral immunity with exosome-enveloped AAV vectors[J]. Blood Advances, 2017, 1(23): 2019-203. doi: 10.1182/bloodadvances.2017010181 [17] NAKAI H, FUESS S, STORM T A, et al. Unrestricted hepatocyte transduction with adeno-associated virus serotype 8 vectors in mice[J]. Journal of Virology, 2005, 79(1): 214-224. doi: 10.1128/JVI.79.1.214-224.2005 [18] 杜宝珠, 覃玉凤, 杨晓亮, 等. CMV启动子驱动报告基因EGFP在转基因猪和转基因小鼠不同组织中的表达效率比较[J]. 农业生物技术学报, 2015, 23(10): 1327-1333. [19] MUSARÒ A, MCCULLAGH K, PAUL A, et al. Localized Igf-1 transgene expression sustains hypertrophy and regeneration in senescent skeletal muscle[J]. Nature Genetics, 2001, 27(2): 195-200. [20] GRAY S J, FOTI S B, SCHWARTZ J W, et al. Optimizing promoters for recombinant adeno-associated virus-mediated gene expression in the peripheral and central nervous system using self-complementary vectors[J]. Human Gene Therapy, 2011, 22(9): 1143-1153. doi: 10.1089/hum.2010.245