
Wound-induced calcium signal transmission patterns in Arabidopsis thaliana
-
摘要: 为了研究植物系统性钙信号的产生和传递,本研究采用化学损伤和机械损伤等刺激方式,利用能够实时记录细胞质中游离钙离子浓度变化的GCaMP6s荧光指示器,观察并比较拟南芥叶片受到刺激后产生的钙离子信号变化,系统地记录和分析不同方式诱导的钙离子信号在植物体内的长距离传递模式。结果显示:水滴加到拟南芥叶表面会引起较为微弱的钙信号产生,沿叶片发育顺序传递;化学损伤和机械损伤刺激诱导的钙信号主要由损伤组织产生并传递至临近叶片,其中强酸刺激和切除叶片时,植物体内钙离子信号的长距离传递速度较快。不同类型的损伤信号导致植物钙信号在长距离传递的速度、强度和模式上存在差异,表明植物采用多样的长距离信号传导方式适应环境变化。Abstract: In order to investigate the generation and transmission of systemic calcium signals in plants, this study used different damage methods, such as chemical damage and mechanical damage. The GCaMP6s fluorescent indicator, which can record the real-time changes in free calcium ion concentration in the cytoplasm, was used to observe and compare the changes in calcium ion signals produced by Arabidopsis thaliana leaves after stimulation. The long-distance transmission patterns of calcium ion signals induced by different damages in the plant were systematically recorded and analyzed. The results showed that adding water droplets to the surface of Arabidopsis thaliana leaves would cause relatively weak calcium signal production, which was transmitted along the developmental sequence of the leaves. The calcium signals induced by chemical damage and mechanical damage stimuli are mainly generated by damaged tissues and transmitted to adjacent leaves. When using strong acids for chemical damage and cutting leaves for mechanical damage, the long-distance transmission speed of calcium ion signals in plants is faster than other methods. Different damage signals lead to differences in the speed, intensity, and mode of long-distance transmission of calcium signals in plants, indicating that plants adopt diverse long-distance signal transmission methods to adapt to environmental changes.
-
0. 引言
地球上的生物依靠感觉或神经系统感受或享受色彩斑斓的世界,应对恶劣环境或灾难。多细胞动物依靠特化的神经系统快速地感受、传递外界的信号,经过加工、整合做出及时有效的反应。植物作为多细胞生物,也进化出特定功能的组织和器官,各器官和组织之间也需要功能协调,同时应对逆境胁迫[1]。与动物的细胞反应类似,植物细胞也是通过细胞内游离钙离子浓度的快速变化做出反应,细胞内钙离子作为第二信使在钙依赖的信号传递过程中起到了至关重要的作用,几乎参与了所有生理过程,如控制细胞的生长发育、细胞运动、伤害或其他逆境反应中[2-4],钙离子在细胞内会形成特定的振荡,将细胞内、外的刺激,以特定的电信号形式在细胞质内“发射”,导致相邻细胞膜电势变化或细胞内离子浓度变化,由此产生可以传递的电信号。
早期人们通过表面电极技术,证实植物在受机械损伤后,受损伤叶片表面发生去极化现象(wound activated surface potential changes,WASPs),此电信号可由切口扩散至远端未受损叶片,进而引起抗虫激素茉莉酸(jasmonic acid,JA)的积累,谷氨酸受体蛋白3.3和3.6在此过程中起到了关键作用[5-7]。植物在受到外界环境刺激后,不仅会引起钙离子的流动,还会有其他带电离子的流动,例如K+、Cl−等[8-9],这些离子的流动同样会引起膜电位的改变,因此利用表面电极并不能准确地记录钙离子信号长距离传递过程。随着钙荧光成像技术的发展,一些基于钙结合蛋白改造的钙荧光指示器已被用于胞内钙离子浓度变化检测,如YCs(yellow cameleons)、GCaMPs(GFP-calcium modulated proteins)等[10-12],这一工具的应用,使得实时观测植株体内钙离子浓度变化成为可能。通过使用钙荧光指示器,目前已鉴定到一些参与信号长距离传递的分子,如双孔通道1(two pore channel 1,TPC1)通过调控盐胁迫钙信号由地下向地上部分的传递来增强植株耐盐性[13-14],内质网钙离子泵1(ER-type Ca2+-ATPase 1,ECA1)通过调控钙信号由伸长区向成熟区的传递来调节根部向水性生长[15]。随后Toyota等[16]和Nguyen等[17]通过钙离子荧光指示器GCaMP3,证实拟南芥(Arabidopsis thaliana)植株在受到机械损伤或害虫啃食后,钙信号与电信号的长距离传递类似,均会从受损叶片传递至远端未受损叶片,并引起JA在远端叶片积累,进而增强植株对草食性昆虫的抵抗,而在谷氨酸受体蛋白3.3和3.6的双突变体中钙信号的长距离传递过程消失,抗虫能力明显减弱;另外,在野生型拟南芥的叶片上施加高浓度的谷氨酸,可以诱导出与机械性损伤类似的钙信号长距离传递现象[16, 18]。现阶段普遍认为受损细胞所释放的谷氨酸向远端未受损叶片流动,激活谷氨酸受体蛋白3.3和3.6是引起钙信号长距离传递的主要原因之一。[19-20]
目前对于钙信号长距离传递的研究主要集中在机械损伤与害虫啃食上,对于化学损伤诱导的钙信号长距离传递的研究还未见报道,因此本课题利用稳定表达钙离子GCaMP6s荧光指示器的拟南芥植株,分别进行机械或化学损伤处理,实时观察植株活体内钙信号长距离传递的路径,分析不同损伤信号长距离传递的差异及特点。
1. 实验材料与方法
1.1 材料及试剂
本研究使用的指示型拟南芥遗传背景为稳定表达钙离子指示器GCaMP6s的拟南芥株系(Arabidopsis thaliana Col-0),来自首都师范大学植物基因资源与低碳环境生物技术北京市重点实验室。分析纯浓HCl购自北京化工厂;分析纯KOH、蔗糖、乙酰丁香酮以及MgCl2购自默克化工技术(上海)有限公司。实验用水均为无菌水。
1.2 仪器
使用德国蔡司公司生产的ZEISS Discovery V20型荧光体式显微镜观察样品,使用1.0×目镜观察,放大倍数为7.5倍,X-Cite SERIES 120Q型汞灯为激发光源;使用英国安道尔科技有限公司生产的Andor ZYLA 4.2 Plus型高速互补式金属氧化物半导体(complementary metal oxide semiconductor,CMOS)相机采集数据,曝光时间为300 ms,每间隔1 s记录1张照片。
1.3 拟南芥培养
(1)拟南芥培养在温度为23 ℃、湿度为60% 的短日照温室(8 h光照、16 h黑暗交替进行)。
(2)构建稳定表达钙离子指示器的拟南芥:将含有GCaMP6s的pJL-12载体,通过拟南芥花序浸染法转化野生型拟南芥植株,筛选获得稳定表达钙离子指示器的拟南芥株系。
1.4 诱导损伤处理
取培养了4周的拟南芥植株进行损伤诱导实验,根据叶片的生长顺序进行编号(图 1),即第1片长出的真叶为1号叶片,编号为L1,依次类推。
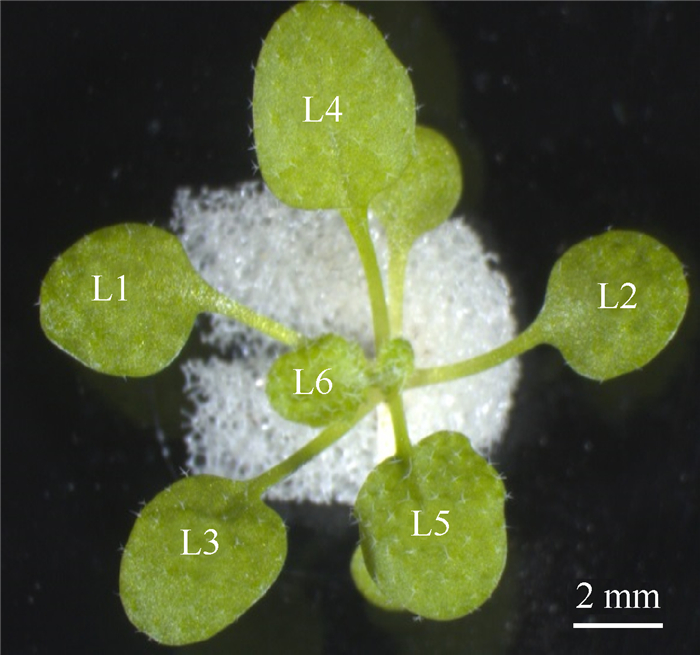 图 1 拟南芥叶片编号示意注:L1~L6为叶片编号。
 下载:
全尺寸图片
采用无损伤、化学损伤和机械损伤3种方式诱导并观察拟南芥细胞内钙离子浓度变化,每种处理均重复3次。无损伤,在指示型拟南芥植株L2叶片表面滴加1.5 μL水;化学损伤,在指示型拟南芥植株L2叶片表面滴加12.5% HCl或1 mol/L KOH,观察并记录荧光强度的变化;机械损伤,通过眼科剪切除或部分损伤拟南芥L2叶片,并观察记录钙荧光强度的变化。
1.5 数据统计分析
数据以x±s表示。应用Micro-Manager 1.4.23软件对实验数据进行统计,采用GraphPad Prism 8.3.0软件制图。
2. 结果
2.1 无损伤时拟南芥钙离子信号的长距离传递
将1.5 μL灭菌水滴加到拟南芥植株的L2叶片表面后荧光强度变化如图 2所示。在220 s时,在对侧的L1叶片的维管束先观察到荧光强度出现变化,随着观察时间的增加而缓慢增强;在996 s时,L3和L4叶片的荧光强度也有升高;最后在1 522 s时,L5和L6叶片的荧光强度上升较为明显(图 2)。最早产生荧光变化的L1叶片的荧光强度变化曲线如图 2(b)所示,其约在800 s时荧光强度达到最强,增加了约40%。实验结果表明,水滴加到叶表面所产生的细胞内信号较弱,沿着叶片的生长顺序,从老叶向新叶方向传递。
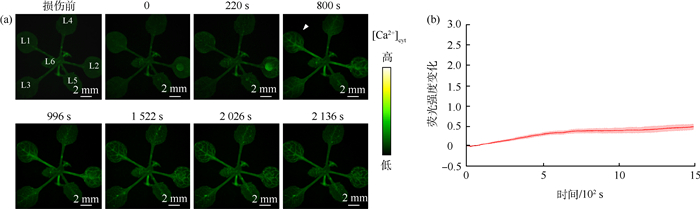 图 2 水滴刺激时指示型拟南芥植株的荧光强度变化注:白色箭头为荧光强度产生明显变化的叶片。
(a)整体变化;(b)L1叶片的荧光强度变化曲线下载:
全尺寸图片
2.2 强酸损伤时拟南芥钙离子信号的长距离传递
将1.5 μL 12.5 % HCl滴加到指示型拟南芥植株的L2叶片表面后荧光强度变化如图 3所示。在120 s时,L2叶片荧光强度明显增强,随后快速沿维管束传递至邻近的L4和L5叶片,然后是L1和L3叶片,最后是L6叶片(图 3(a))。在这一过程中,最早产生荧光变化的L4叶片的荧光强度变化曲线如图 3(b)所示,其在350 s左右达到最强荧光强度,且强度增加了约80%。这些结果表明,强酸产生的钙信号会首先传递至距离损伤叶片空间位置最近的叶片。
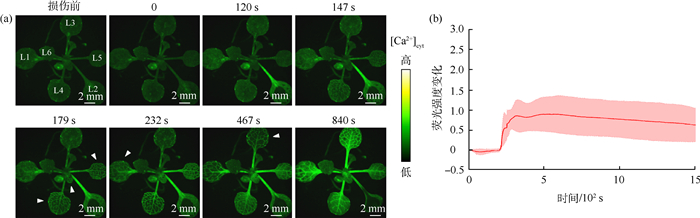 图 3 酸刺激时指示型拟南芥植株的荧光强度变化(a)整体变化;(b)L4叶片的荧光强度变化曲线下载:
全尺寸图片
2.3 强碱损伤时拟南芥钙离子信号的长距离传递
将1.5 μL 1 mol/L KOH滴加到指示型拟南芥植株的L2叶表面后荧光强度变化如 图 4所示。在814 s时,L2叶片才出现明显的荧光强度变化,这一变化明显滞后于滴加HCl溶液处理。强碱损伤的传递模式与强酸损伤类似,首先快速沿维管束传递至邻近的L4和L5叶片,然后是L1和L3叶片,最后是L6叶片(图 4(a))。在这一过程中,荧光信号最先传至的L4叶片的荧光强度变化曲线如图 4(b)所示,其在1 000 s左右达到最大值,且荧光强度增加了约200%。这些结果表明,强碱所产生的损伤信号与强酸相似,会首先传递至临近的叶片。综上所述,拟南芥植株对温和刺激(水)反应最不敏感,对化学刺激(强酸、强碱)的反应则表现出不同的敏感度。植物对强酸刺激更为敏感,损伤信号产生与传递速度较快;而对强碱刺激的敏感度较弱,损伤信号产生与传递速度较慢,但其荧光信号强度变化最大值约为酸刺激的2.5倍。
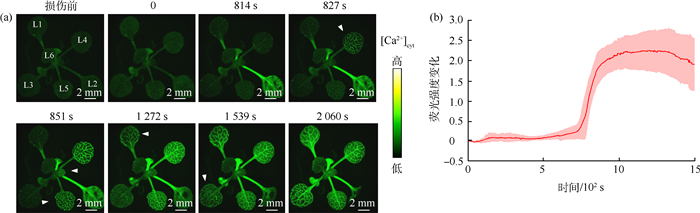 图 4 碱刺激时GCaMP6s转基因拟南芥植株的荧光强度变化(a)整体变化;(b)L4叶片的荧光强度变化曲线下载:
全尺寸图片
2.4 机械损伤时拟南芥钙离子信号的长距离传递
不同机械损伤程度时指示型拟南芥植株的荧光强度变化如图 5所示。对指示型拟南芥植株的L2叶片进行部分损伤后,观察到荧光信号强度首先在切口附近明显增强,迅速扩散至邻近未受损伤区域,并沿着维管束向下传递至植物体中心,最终传至整个植株,这一过程耗时较长(图 5(a))。接着,对指示型拟南芥植株的L2叶片进行切除,观察到叶柄处荧光强度快速升高,并沿维管束向下传递至植物体中心;大约23 s后,邻近的L4叶片荧光强度开始增加;40 s时,荧光信号传递至邻近的L4、刚萌发出的L7叶片,最后传至L5叶片,而其他叶片未显示明显的荧光强度变化(图 5(c))。在部分损伤后,邻近的L4叶的荧光强度变化曲线如图 5(b)所示,部分损伤时,其大约在650 s达到最大值,其荧光强度增加了约40%(图 5(a));切除叶片后,荧光信号最先传至的L4叶片大约在1 000 s达到最大值,其荧光强度增加了约60%(图 5(d))。以上结果表明,对拟南芥植株进行部分损伤时,损伤信号主要集中在受损的叶片,其传递速度相对较慢;切除叶片后,损伤信号会快速沿维管束传递至邻近的叶片,传递速度较快。
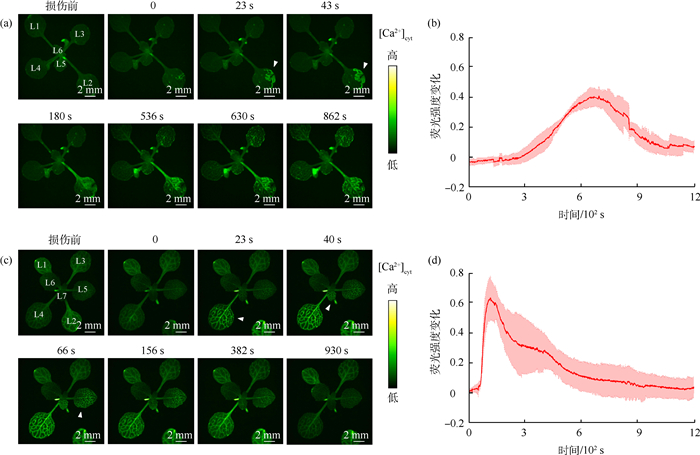 图 5 不同机械损伤程度时指示型拟南芥植株的荧光强度变化(a)部分损伤时的整体变化;(b)部分损伤时L4叶片的荧光强度变化曲线;(c)切除时的整体变化;(d)切除时L4叶片的荧光强度变化曲线下载:
全尺寸图片
3. 讨论
钙离子是生物体正常生长发育所必需的元素之一,钙及其化合物不仅是多种组织必不可少的成分,同时也是响应外界刺激和调控内部生理活动的信号分子。植物需要面对昆虫、真菌和病毒等生物胁迫以及温度、光照、渗透式、营养等非生物胁迫,因此细胞内的信号响应以及整体的信号传导机制对植物的生存至关重要。植物在受到外界生物或非生物胁迫时,其细胞内部的钙离子浓度会发生改变。钙离子可以参与到植物对多种胁迫的响应中,如外界病原微生物入侵、高盐胁迫、渗透势变化和干旱导致的气孔运动等过程。除响应外界胁迫外,钙离子同时也参与到信号的长距离传递过程中。植物可以通过信号的长距离传递所引起的全身性反应来增强植株整体对胁迫的抵抗[13]。
本研究表明植物对水、强酸、强碱以及机械损伤刺激时均产生了信号,水刺激是温和刺激,对外界微弱环境变化的感知;而酸、碱刺激以及机械损伤则为伤害信号,这些信号以不同的方式进行传导。从信号传递顺序来看,植物在应对水刺激时,产生的信号沿叶片生长的顺序传递,推测这可能与叶片中钙离子的分布有关,老叶片钙离子含量较多,更利于其信号的传递;而在应对强酸、强碱刺激以及切除整个叶片时,产生的信号主要沿损伤叶片相邻的叶片传递。从信号传递速度来看,植物对水刺激最不敏感,传递时间较长;植物对强酸刺激更为敏感,信号产生与传递速度较为迅速;植物对强碱刺激不如强酸敏感,信号产生与传递速度都较为缓慢;当机械损伤部分叶片时,信号传递速度较为缓慢,当切除整个叶片时,信号会快速传递至相邻的叶片。
4. 结束语
动物依靠特化的神经系统来感知外界环境,从而对不利的环境因素做出快速响应。在植物中并未发现有神经组织的特化,形态学比较表明植物的维管组织和动物的神经系统更为相似,并且植物受到损伤后引起的电信号与钙信号均主要沿维管组织传递至远端未受损的组织,从而产生系统性、获得性适应以增强对外界环境的适应能力。本实验表明,不同类型的损伤处理所诱导的钙信号传递方式也存在较大的差异,未来可通过转录组学分析不同类型损伤处理后基因表达种类及程度的差异,进一步揭示植物辨别外界刺激类型的机制,为理解植物如何感应整合外界刺激信号提供新思路。
-
图 1 拟南芥叶片编号示意
注:L1~L6为叶片编号。
下载:
全尺寸图片
图 2 水滴刺激时指示型拟南芥植株的荧光强度变化
注:白色箭头为荧光强度产生明显变化的叶片。
(a)整体变化;(b)L1叶片的荧光强度变化曲线下载:
全尺寸图片
图 3 酸刺激时指示型拟南芥植株的荧光强度变化
(a)整体变化;(b)L4叶片的荧光强度变化曲线
下载:
全尺寸图片
图 4 碱刺激时GCaMP6s转基因拟南芥植株的荧光强度变化
(a)整体变化;(b)L4叶片的荧光强度变化曲线
下载:
全尺寸图片
图 5 不同机械损伤程度时指示型拟南芥植株的荧光强度变化
(a)部分损伤时的整体变化;(b)部分损伤时L4叶片的荧光强度变化曲线;(c)切除时的整体变化;(d)切除时L4叶片的荧光强度变化曲线
下载:
全尺寸图片
-
[1] CHOI W G, HILLEARY R, SWANSON S J, et al. Rapid, long-distance electrical and calcium signaling in plants[J]. Annual Review of Plant Biology, 2016, 67: 287-307. doi: 10.1146/annurev-arplant-043015-112130 [2] DODD A N, KUDLA J, SANDERS D. The language of calcium signaling[J]. Annual Review of Plant Biology, 2010, 61: 593-620. doi: 10.1146/annurev-arplant-070109-104628 [3] STEINHORST L, KUDLA J. Signaling in cells and organisms-calcium holds the line[J]. Current Opinion in Plant Biology, 2014, 22: 14-21. doi: 10.1016/j.pbi.2014.08.003 [4] HIMSCHOOT E, BEECKMAN T, FRIML J, et al. Calcium is an organizer of cell polarity in plants[J]. Biochimica et Biophysica Acta(BBA)-Molecular Cell Research, 2015, 1853: 2168-2172. doi: 10.1016/j.bbamcr.2015.02.017 [5] MOUSAVI S A, CHAUVIN A, PASCAUD F, et al. Glutamate receptor-like genes mediate leaf-to-leaf wound signaling[J]. Nature, 2013, 500(7463): 422-426. doi: 10.1038/nature12478 [6] WU Q, STOLZ S, KUMARI A, et al. The carboxy-terminal tail of GLR3.3 is essential for wound-response electrical signaling[J]. The New Phytologist, 2022, 236(6): 2189-2201. doi: 10.1111/nph.18475 [7] GRENZI M, BONZA M C, ALFIERI A, et al. Structural insights into long-distance signal transduction pathways mediated by plant glutamate receptor-like channels[J]. The New Phytologist, 2021, 229(3): 1261-1267. doi: 10.1111/nph.17034 [8] SIERLA M, HÕRAK H, OVERMYER K, et al. The receptor-like pseudokinase GHR1 is required for stomatal closure[J]. Plant Cell, 2018, 30(11): 2813-2837. doi: 10.1105/tpc.18.00441 [9] FÖRSTER S, SCHMIDT L K, KOPIC E, et al. Wounding-induced stomatal closure requires jasmonate-mediated activation of GORK K+ channels by a Ca2+ sensor-kinase CBL1-CIPK5 complex[J]. Development Cell, 2019, 48(1): 87-99.e6. doi: 10.1016/j.devcel.2018.11.014 [10] MONSHAUSEN G B, MESSERLI M A, GILROY S. Imaging of the Yellow Cameleon 3.6 indicator reveals that elevations in cytosolic Ca2+ follow oscillating increases in growth in root hairs of Arabidopsis[J]. Plant Physiology, 2008, 147(4): 1690-1698. doi: 10.1104/pp.108.123638 [11] CHEN T W, WARDILL T J, SUN Y, et al. Ultrasensitive fluorescent proteins for imaging neuronal activity[J]. Nature, 2013, 499(7458): 295-300. doi: 10.1038/nature12354 [12] MOLLINEDO-GAJATE I, SONG C, KNÖPFEL T. Genetically encoded fluorescent calcium and voltage indicators[J]. Handbook of Experimental Pharmacology, 2019, 260: 209-229. [13] CHOI W G, TOYOTA M, KIM S H, et al. Salt stress-induced Ca2+ waves are associated with rapid, long-distance root-to-shoot signaling in plants[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(17): 6497-6502. [14] EVANS M J, CHOI W G, GILROY S, et al. A ROS-assisted calcium wave dependent on the AtRBOHD NADPH oxidase and TPC1 cation channel propagates the systemic response to salt stress[J]. Plant Physiology, 2016, 171(3): 1771-1784. doi: 10.1104/pp.16.00215 [15] SHKOLNIK D, NURIEL R, BONZA M C, et al. MIZ1 regulates ECA1 to generate a slow, long-distance phloem-transmitted Ca2+ signal essential for root water tracking in Arabidopsis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(31): 8031-8036. [16] TOYOTA M, SPENCER D, SAWAI-TOYOTA S, et al. Glutamate triggers long-distance, calcium-based plant defense signaling[J]. Science, 2018, 361(6407): 1112-1115. doi: 10.1126/science.aat7744 [17] NGUYEN C T, KURENDA A, STOLZ S, et al. Identification of cell populations necessary for leaf-to-leaf electrical signaling in a wounded plant[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(40): 10178-10183. [18] MOE-LANGE J, GAPPEL N M, MACHADO M, et al. Interdependence of a mechanosensitive anion channel and glutamate receptors in distal wound signaling[J]. Science Advances, 2021, 7(37): eabg4298. doi: 10.1126/sciadv.abg4298 [19] BELLANDI A, PAPP D, BREAKSPEAR A, et al. Diffusion and bulk flow of amino acids mediate calcium waves in plants[J]. Science Advances, 2022, 8(42): eabo6693. doi: 10.1126/sciadv.abo6693 [20] GRENZI M, BURATTI S, PARMAGNANI A S, et al. Long-distance turgor pressure changes induce local activation of plant glutamate receptor-like channels[J]. Current Biology, 2023, 33(6): 1019-1035.e8. doi: 10.1016/j.cub.2023.01.042
