
Progress in the study of Phasmatodea fossils
-
摘要: 回顾了竹节虫目化石的研究简史以及目前竹节虫目化石的分类和系统发育研究情况,概述了世界已报道竹节虫目化石类群的多样性及其产地和时代,总结了竹节虫目所有化石中已发现的拟态现象和防御行为,探讨了竹节虫翅及拟态相关结构的早期演化情况,分析了竹节虫目化石研究仍存在的问题,并展望未来的研究方向。Abstract: The research history of fossil Phasmatodea is reviewed in this paper, focusing on the current status of taxonomic and phylogenetic studies. The diversity, localities and ages of all reported fossil taxa of Phasmatodea all over the world are overviewed. The mimicry and defense behavior revealed by Phasmatodea fossils are summarized, involving their early evolution of wings and mimicry related body characters. The existing problems in the studies of fossil Phasmatodea are discussed, along with an outlook on future research of Phasmatodea.
-
Keywords:
- stick insect /
- fossil /
- taxonomy /
- mimicry /
- early evolution
-
0. 引言
竹节虫目,又称䗛目(Phasmatodea),俗称竹节虫,属于昆虫纲的有翅亚纲,是一个较小的昆虫类群,全世界已知3 000余种[1]。竹节虫身体呈棒状、枝状或叶状,通常模拟树枝或树叶的形态,拟态现象明显,被称为昆虫界的“伪装大师”。目前,已发现并报道的竹节虫化石非常稀少,具有拟态现象的更是屈指可数。因此,对竹节虫化石开展研究不仅能补充和丰富世界竹节虫目昆虫化石的物种数目,还对其形态结构和拟态等行为的早期演化研究具有重要意义。本文就当前竹节虫目化石研究现状和仍存在的问题进行综述。
1. 研究简史
1.1 世界竹节虫目昆虫化石研究简史
世界竹节虫目昆虫化石研究始于20世纪初期:Tillyard[2]于1918年首次对产于澳大利亚晚三叠世的竹节虫化石进行研究,根据1新属1新种建立了三叠䗛科(Aeroplanidae);Martynov[3]于1928年对产于哈萨克斯坦早侏罗世的竹节虫化石进行研究,根据1新属1新种建立了飞䗛科(Aerophasmatidae)。20世纪中后期:Bode[4]于1953年对产于德国早侏罗世的竹节虫化石进行研究,在飞䗛科下又建立了1新属5新种;Sharov[5]于1968年对产于吉尔吉斯斯坦晚三叠世的竹节虫化石进行研究,根据1新属2新种,建立了剑翅䗛科(Xiphopteridae),此外还补充了三叠䗛科1新属1新种,飞䗛科1新种,初步建立了竹节虫化石研究的分类体系;Vishniakova[6]于1980年对产于哈萨克斯坦的竹节虫化石进行研究,根据1新属1新种建立了原邻飞䗛科(Prochresmodidae);Gorochov[7]于1988年对产于俄罗斯的竹节虫化石进行研究,根据6新属8新种建立了泛神䗛科(Susumaniidae);Gorochov[8]于1993年对产于蒙古国的竹节虫化石进行研究,根据1新属1新种建立了二叠䗛科(Permophasmatidae);Gorochov[9]于1994年对竹节虫目化石的分类体系进行了重新整理和归纳,建立了剑翅䗛总科(Xiphopteroidea),原邻飞䗛总科(Prochresmodidea)和三叠䗛总科(Aeroplanoidea),并将大部分类群归入其中。21世纪初期:Gorochov[10]和Tilgner[11]分别在2000和2002年重新分析和研究了所有已发表的竹节虫化石,得出基本一致的分类体系,一直沿用至今;Zompro[12]于2001年对波罗的海琥珀中保存的大量竹节虫若虫和2件成虫标本进行研究,建立了原拟䗛科(Archipseudophasmatidae);此外,1981年Birket-Smith[13]、1985年Whalley[14]、2004和2011年Nel团队[15-16]、2007年Wedmann等[17]、2011年Poinar[18]、2015年Archibald和Bradler[19]也对产自世界各地的竹节虫化石进行了细致的研究工作,均归入以上类群或现存的新䗛亚目(Timematodea)和真䗛亚目(Euphasmatodea)当中。
1.2 中国竹节虫目昆虫化石研究简史
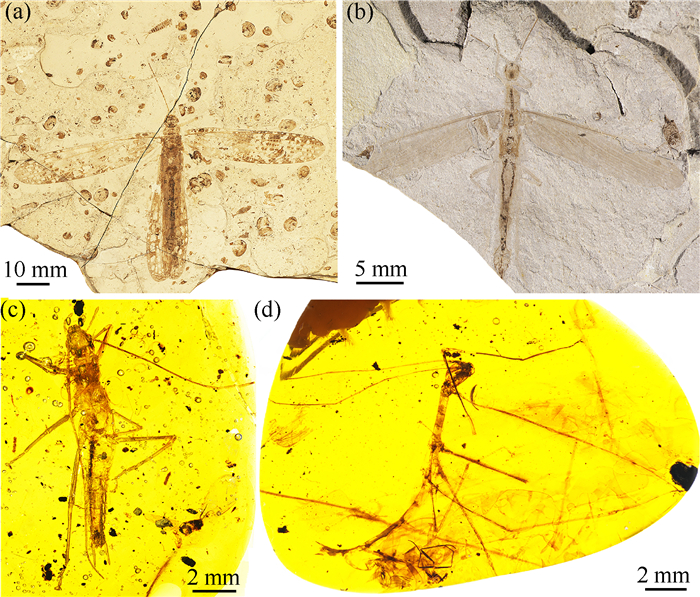
我国对于竹节虫化石的研究开展较晚,在我国发现的竹节虫化石主要集中在北方地区[20-23],代表类群如图 1(a、b)。最早由任东教授于1997年对产于我国辽宁省的竹节虫化石进行研究,建立了神䗛科(Hagiphasmatidae),详细描述了该科的3新属3新种和1个未定种的雄性[24]。然而,Gorochov[10]于2000年认为神䗛科和泛神䗛科属于同物异名。因此,泛神䗛科为研究领域沿用的分类体系。此后,任东课题组又多次对产于我国北方地区以及缅甸北部克钦琥珀中的竹节虫进行了细致研究。2011和2014年,对产于我国内蒙古和辽宁地区的竹节虫化石进行分析和研究[25-26],补充了大量泛神䗛科的身体特征;2017—2019年,对产于缅甸北部克钦邦胡康河谷的竹节虫琥珀标本进行研究[27-29],发现了大量与现存竹节虫十分相似的类群(图 1(c、d)),根据克钦琥珀中的多件有翅竹节虫标本建立了翼䗛科(Pterophasmatidae)[30];2020—2023年,根据产于我国北方内蒙古地区的竹节虫化石在泛神䗛科下建立了隐蔽䗛亚科(Aclistophasmatinae)[31],并对竹节虫化石的拟态行为及身体形态的早期演化进行了研究[28, 32-33]。
 下载:
全尺寸图片
2. 分类和系统发育研究
目前,普遍认为现存的竹节虫目包括新䗛亚目和真䗛亚目,且互为姐妹群[34-36]。绝灭的化石竹节虫类群包括二叠䗛科、原邻飞䗛科、剑翅䗛科、三叠䗛科、飞䗛科、泛神䗛科、原拟䗛科和翼䗛科等。
近年来,与竹节虫目系统发育相关的研究工作主要集中在分子生物学领域,形态学基础研究相对较少,尤其是包括化石类群的系统发育研究工作。根据现存竹节虫类群的形态学数据建立的系统发育关系也较少。Tilgner [11]于2002年和Bradler [37]于2009年的研究工作,并未涉及化石类群。直到2019年,在已有的形态学研究基础上,任东课题组才开始尝试将化石类群加入,初步建立了仅包括泛神䗛科、原拟䗛科、翼䗛科、新䗛亚目和真䗛亚目的竹节虫目系统发育关系[28, 30];2021和2023年,又对所有化石和现生的竹节虫代表类群进行了系统发育研究工作[31, 33]。然而,竹节虫化石稀少,且目前已发现的大多数化石保存并不完整,使得这些系统发育研究工作的结果均还不够完善,需要进一步研究和探讨。
3. 类群多样性及产地和时代
全世界范围内已报道竹节虫化石共61属100余种(图 2),详情请参考2023年Yang等[33]世界竹节虫目化石名录。其中,古生代最少,仅包括3属5种,发现于北半球的欧亚大陆;中生代较多,共包括44属78种,发现于世界各地,但主要集中在欧亚大陆和南美;新生代较少,共包括16属18种,主要发现于北美和欧洲。根据所有化石记录,推测竹节虫可能于二叠纪开始起源于欧亚大陆,到中生代扩散到世界各地,一直繁盛至今。
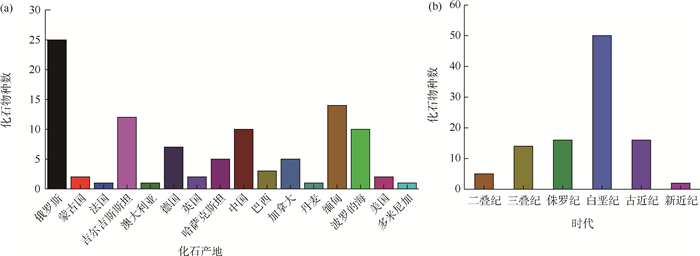 图 2 世界竹节虫目化石分布(a)地理分布;(b)时代分布下载:
全尺寸图片
3.1 古生代
目前已知时代最早的竹节虫化石来自晚古生代的二叠纪(约2.5亿年前),共包括3属5种,产自俄罗斯和蒙古国,被归入二叠䗛科当中,但由于保存十分不完整,仅发表了部分残缺的翅,具体分类位置还有待于进一步研究[9]。
3.2 中生代
三叠纪的原邻飞䗛科、剑翅䗛科和三叠䗛科开始出现,但报道的所有标本仍然不完整,大部分仅保存了翅脉结构,需要进一步补充描述。原邻飞䗛科被发现于法国和吉尔吉斯斯坦的晚三叠世,共报道3属9种,身体结构保存相对于二叠䗛科来说较好[5, 8-9, 15]。剑翅䗛科被发现于吉尔吉斯斯坦的晚三叠世,仅报道1属2种,该科具有独特的狭长似剑的前后翅,故名剑翅䗛科,其除了前后翅翅脉特征保存完整外,头、前胸和足的特征也保存了下来[14]。三叠䗛科被发现于澳大利亚和吉尔吉斯斯坦的晚三叠世,共报道2属3种,该科与剑翅䗛科一样具有狭长的前翅,但末端不弯曲,身体结构几乎没有保存,目前仅前翅的翅脉特征被描述[38-39]。
侏罗纪的飞䗛科、泛神䗛科和翼䗛科开始出现,大部分已报道的化石均保存了较完整的身体结构,翅脉与三叠纪和二叠纪的类群仍然十分类似,而与现存竹节虫存在较大差异。飞䗛科分布较广,被发现于德国和英国的早侏罗世和哈萨克斯坦的中侏罗世,共报道5属9种,然而,这些类群大多数仅保存了翅,其他身体结构较少被保存下来[3-4]。泛神䗛科被发现于我国东北和哈萨克斯坦的中侏罗世,共报道4属6种,其中我国东北地区发现的类群保存最为完整[25-26, 31-32]。翼䗛科发现于我国东北地区的中侏罗世,共报道1属1种,保存较完整[32]。
白垩纪的飞䗛科物种数量减少,主要被发现于俄罗斯和巴西的早白垩世,以及哈萨克斯坦的晚白垩世,共报道2属4种[5, 8, 39]。泛神䗛科较为繁盛,分布范围更广,主要被发现于早白垩世的俄罗斯、蒙古国、英国、巴西和我国东北地区,以及晚白垩世的俄罗斯、加拿大和丹麦,共报道15属31种[7, 13, 16, 24, 26, 39-42]。翼䗛科被发现于白垩纪中期的缅甸北部克钦琥珀当中,共报道3属3种[30]。与此同时,原拟䗛科、新䗛亚目和真䗛亚目的部分类群开始出现。现存的竹节虫均属于新䗛亚目和真䗛亚目,因此,现存的竹节虫目最早的化石记录来自白垩纪。原拟䗛科最早的化石记录被发现于白垩纪中期的缅甸北部克钦琥珀当中,共报道1属2种,均为若虫、无翅,身体特征与现存竹节虫极其相似[27]。新䗛亚目是一个古老的孓遗类群,但化石记录最早被发现于白垩纪中期的克钦琥珀当中,共报道4属4种[29, 33]。真䗛亚目最早的化石记录发现于巴西的早白垩世[43],其次,在白垩纪中期的克钦琥珀中也有发现,共报道5属6种,但多为若虫,成虫十分少见[28, 32, 44]。
3.3 新生代
新生代发现的竹节虫化石主要包括泛神䗛科、原拟䗛科、新䗛亚目和真䗛亚目,多数与现存竹节虫外部形态十分相似。其中,泛神䗛科被发现于加拿大的古新世和始新世,共报道4属4种[19, 45]。原拟䗛科被发现于始新世的波罗的海琥珀当中,共报道6属8种,和一些未定种的若虫标本[12]。新䗛亚目仅在始新世的波罗的海琥珀中被发现1属1种,与现存的新䗛亚目类群最为相似[46]。真䗛亚目分别被发现于美国、德国和波罗的海的始新世,共报道3属3种,另外在中新世的多米尼加琥珀当中被发现1属1种,在美国的上新世被发现1属1种,均与现存真䗛亚目类群相似度极高,大部分已被归入现生科[17-18, 44]。
4. 拟态现象
竹节虫目的拟态现象在现存类群中非常普遍,而在化石当中却十分少见,主要包括叶状拟态和枝状拟态2种。
4.1 叶状拟态
目前,竹节虫最早的叶状拟态化石记录被发现于中侏罗世,距今约1.65亿年(图 3)。任东课题组在我国东北地区发现了这件保存十分完整的竹节虫化石标本多刺隐蔽䗛(Aclistophasma echinulatum)(图 3(a)),该标本腹部出现了与现存竹节虫叶状扩展十分相似的结构,即腹部每一节的背板都出现了扩展,且呈向两边突出的叶状,末端向下略微弯曲(图 3(c))。经测量和对比,该标本腹部扩展结构的大小和形态与同时期同地层的蕨类植物叶片Cladophlebis sp(.图 3(d))极其相似,被认为是竹节虫叶状拟态的一种初期表现形式。此外,在其叶状扩展的边缘还发现了许多微刺,足股节上也发现了整齐排列的刺状结构(图 3(b)),起到防御功能。因此,研究者认为侏罗纪的竹节虫就已经进化出了初期的叶状拟态和防御功能[31]。
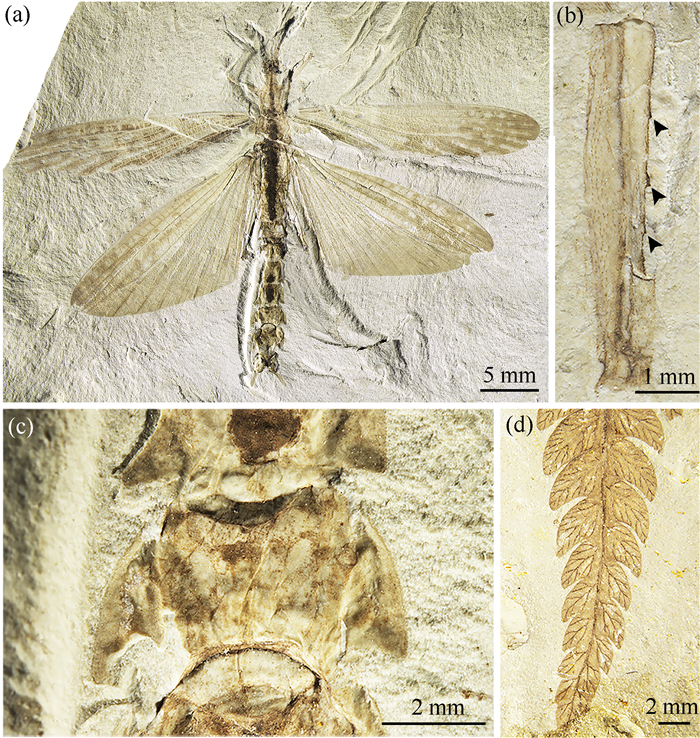 图 3 侏罗纪的竹节虫叶状拟态和防御行为[31](a)多刺隐蔽䗛(Aclistophasma echinulatum);(b)足股节上的“防御刺”;(c)腹部“叶状扩展”;(d)同时期同地层的蕨类植物叶片Cladophlebis sp.下载:
全尺寸图片
竹节虫的叶状拟态现象在距今约1.25亿年的早白垩世也有发现。任东课题组在我国东北地区发现了一个翅脉模拟裸子植物叶子的竹节虫化石类群黑带白垩䗛(Cretophasmomima melanogramma),该类群具有奇特的翅脉颜色和纵向的深色脉纹,与同时期同地层的植物奇异膜质叶(Membranifolia admirabilis)非常相似。研究者认为黑带白垩䗛的翅很可能模拟了该类植物的叶片,从而在具有大量奇异膜质叶的环境当中更好地隐藏和保护自己[26]。
Wedmann等[17]在德国梅塞尔的始新统地层当中发现了迄今为止最早的叶䗛化石(Eophyllium messelensis),距今约0.47亿年。这一叶䗛化石标本的形态与现存的叶䗛极为相似,前股节基部明显弯曲,前翅短小,腹部出现了明显的叶状扩展,拥有肛下犁突,根据这些结构特征可以确定其具体分类位置属于叶䗛科。因此,该化石的发现将叶䗛的起源时间提前到了始新世。
4.2 枝状拟态
目前,最早的枝状拟态现象出现于白垩纪中期,距今约0.99亿年[28, 32]。任东课题组在缅甸北部的克钦琥珀中发现了这件竹节虫化石标本斑点薄片䗛(Elasmophasma stictum)。该竹节虫外形呈明显的树枝状,包括胸部、腹部和足部均发生了延长。另外,在其胸部、腹部和足股节还出现了薄膜状的扩展结构,表现出背板多次扩展的痕迹,这样的扩展机制被认为是竹节虫身体扩展的另一种早期演化形式[28]。此后,在克钦琥珀中又发现了许多这种身体细长像树枝的竹节虫标本(如图 1(d)),拥有不同形式的枝状拟态和扩展方式[32]。由此,研究者认为白垩纪的竹节虫就已经具有了模拟树枝形态的能力,而身体不同部位薄膜状的扩展可以进一步加强其隐蔽性。进一步说明在当时复杂的森林生态系统中,昆虫模拟植物及增强隐蔽性的策略就已经存在,并且在竹节虫中已被完美体现。
5. 重要形态结构的早期演化
在漫长的演化历程中,竹节虫的形态结构发生了明显的变化,从最原始的身体粗壮且具有发育完整的翅,到现在的身体细长或扁平、翅短小或缺失等。近些年,学者也进行了相关研究,主要集中在翅的演化以及与拟态相关的身体形态的变化。
有关竹节虫翅演化的争论已经持续了很长时间[33-34, 47]。现存竹节虫的翅均发生了不同程度的退化或消失,表现出极其复杂的演化方式。许多分子生物学证据认为竹节虫的祖先是无翅的,但这一结论忽视了化石证据。目前,已经发现的白垩纪之前的竹节虫类群均具有发育完整的前后翅,直到白垩纪才开始发现无翅的类群,表明竹节虫的翅很可能在白垩纪才开始发生退化。已经发现的大多数竹节虫灭绝类群均具有复杂的翅脉结构,根据任东课题组最新的系统发育研究工作,竹节虫翅的演化很可能是翅由大变小、翅脉由复杂变简单的一个过程;综合分析了竹节虫所有的化石证据和现存竹节虫的代表类群,结果表明竹节虫目的祖先一定是有翅的,而后出现的短翅和无翅类群是翅退化的结果,且前翅的退化要早于后翅,大小和形态不同的翅是由于退化程度不同造成的。因此,竹节虫目翅的演化过程远比学者们想象的更加复杂,翅的退化现象也很可能随着环境的变化多次且独立出现[33]。
目前,已经发现的竹节虫基干类群身体均十分粗壮,直到白垩纪才出现了细长像树枝的竹节虫。为了研究在演化过程中竹节虫身体形态的变化,任东课题组将所有中生代保存完整的竹节虫化石进行了统计和测量,表明中生代的竹节虫在进化过程当中,整个身体逐渐变得细长,包括胸部、腹部、足部的分别延长。其中:腹部和足部均是等比例延长;胸部首先是各分节均发生了延长,随后前胸缩短、中胸延长,或者中、后胸同时延长,使得胸部整体更加细长。而缩短的前胸则是为了让前足股节基部形成的凹槽在前足向前伸的时候更好地将头置于其中,增强其枝状拟态的效果。甚至所有现存竹节虫的后胸和第一腹节都发生了不同程度的融合,而多数基干类群却并没有融合,表明这一融合也是逐渐形成的[32]。竹节虫身体不同程度地延长以及融合使得其外形更加纤细,与树枝的形态更加相似,竹节虫也因此而得名。
竹节虫形态除了像树枝,身体的扩展形式也使得其部分类群形态像树叶,比如叶䗛。竹节虫叶状拟态相关的形态结构变化也是逐渐形成的,包括不同的扩展形式。最早,在侏罗纪发现了腹部背板扩展的形式,如Aclistophasma echinulatum;在白垩纪发现了胸部和腹部背板同时出现扩展的形式,以及足股节侧边缘的扩展,如Elasmophasma stictum;在始新世发现了腹部背板和腹板均出现扩展的形式,但胸部和足部并没有发现扩展,如Eophyllium messelensis。对于现存的竹节虫来说,其叶状扩展同时出现在胸部、腹部和足部,且背板和腹板均出现了扩展。因此,笔者认为竹节虫叶状扩展的出现很可能是先从背板开始的,然后腹板、侧板才出现了扩展。另外,竹节虫腹部扩展的出现可能要早于胸部和足部等身体其他部位[17, 28, 31]。而现存的叶䗛可以说是将叶状扩展的拟态形式发挥到了极致。
综上所述,竹节虫的形态结构随着环境的变化不断改变。最初,竹节虫可能主要依靠翅的飞行能力逃避其捕食者,而随着被子植物在白垩纪的逐渐繁盛,竹节虫的生存策略发生了转变,逐渐放弃了飞行的优势,而采用更加有效的拟态躲避方式,来适应环境的变化。显然,这种策略对于植食性、非攻击性的竹节虫来说,更加适应生存在白垩纪逐渐繁盛的被子植物环境中。
6. 问题与展望
目前,竹节虫目已报道的化石仍然十分稀少,相关研究资料也较少,且已发表的大部分化石保存不完整。因此,仍需要更多保存比较完整的化石标本来填补大量特征的缺失。其中,二叠䗛科、原邻飞䗛科、剑翅䗛科、三叠䗛科和飞䗛科的大部分类群仅保存了翅脉,其他结构非常少,具体的分类情况尚未明晰,未来需要大量标本深入研究。泛神䗛科虽然发现了一些虫体保存较完整的化石,但还存在大量仅翅脉留存的类群需要进行补充描述,从而完善该科的分类和系统发育情况。翼䗛科目前只发现了雄性标本,雌性的身体结构及雌雄配对情况需要进一步研究。新䗛亚目和真䗛亚目的化石主要被发现于琥珀中,且大多为无翅的若虫,成虫很少被报道。因此,这些类群的具体分类位置难以确定,未来需要发现并报道更多的成虫标本来系统地进行分析和研究。无论是发现老种还是新种,只要是保存完整的标本对于竹节虫目的研究均具有重要的意义。
竹节虫目的形态学系统发育研究较少,尤其是加入化石类群的系统发育关系,仅近几年我国学者做了相关研究。因此,对于竹节虫目形态学特征的系统发育分析仍需要更系统的研究工作,这也提醒学者在当代分子生物学数据研究较热的环境下,也不要忽视基础形态学分类的研究。对于竹节虫目昆虫在更长地质历史尺度上的起源和演化情况,最终还是需要确切的化石证据来证明。同时,将分子生物学数据和化石证据相结合来进行研究,也将有助于探究竹节虫目更逼近真实的演化历史。
竹节虫目的拟态和防御行为非常普遍,而在化石当中却十分少见,仅有几件标本被报道。因此,竹节虫目的拟态行为及其演化机制还需要更多关键的化石进行研究和补充。另外,竹节虫的翅演化一直是一个热点研究问题,目前加入化石证据来看其翅的演化方式与仅通过现存类群研究的结果有所不同。因此,很多结构演化上的问题都需要通过将化石和现生类群结合起来研究,仅依靠现存竹节虫或者仅依靠化石去研究一个类群的演化历史很大程度上都存在一定偏差。只有将更多的具有时间和空间信息的化石和现存类群结合研究,才能最大限度地逼近其真实的演化过程。
综上所述,目前竹节虫目化石研究虽然已经取得了一些成果,但由于各种原因,研究工作仍存在很多问题。我国化石资源丰富,相信在未来的研究当中存在的问题将逐步解决,也期待竹节虫目的研究在系统发育和起源演化等方面取得新的突破。
-
下载:
全尺寸图片
图 2 世界竹节虫目化石分布
(a)地理分布;(b)时代分布
下载:
全尺寸图片
-
[1] 陈树椿, 何允恒. 中国䗛目昆虫[M]. 北京: 中国林业出版社, 2008. [2] TILLYARD R J. Mesozoic insects of Queensland. 3. Odonata and Protodonata[J]. Proceedings of the Linnean Society of the New South Wales, 1918, 43: 417-435. [3] MARTYNOV A. A new fossil form of Phasmatodea from Galkino(Turkestan), and on Mesozoic Phasmids in general[J]. Annals and Magazine of Natural History, 1928, 10: 319-328. [4] BODE A. Die Insektenfauna des ostneidersächsischen oberen Lias. Palaeontogr[J]. Palaeontographica, 1953, 103: 107-113. [5] SHAROV A G. Phylogeny of the Orthopteroid insects[J]. Trudy Paleontologicheskogo Instituta, Akademiya Nauk SSSR, 1968, 118: 109-122. [6] VISHNIAKOVA V N. Historical development of the class Insecta[J]. Trudy Paleontologicheskogo Instituta, Akademiya Nauk SSSR, 1980, 175: 171-173. [7] GOROCHOV A V. O klassifikatzii iskapaemykh priamokrylykh nadsemieistva Phasmomimoidea (Orthoptera) s apicaniem novykh taksonof[J]. Trudy Zoologicheskogo Instituta Akademii Nauk SSSR, 1988, 178: 32-44. [8] GOROCHOV A V. Fossil stick-insects (Phasmoptera) from Jurassic and Cretaceous[J]. Trudy Paleontologicheskogo Instituta, Akademii Nauk SSSR, 1993, 252: 112-116. [9] GOROCHOV A V. Permian and Triassic walking sticks (Phasmoptera) from Eurasia[J]. Paleontological Journal, 1994, 28: 83-98. [10] GOROCHOV A V. Phasmomimidae: are they Orthoptera or Phasmatoptera?[J]. Paleontological Journal, 2000, 34: 295-300. [11] TILGNER E H. Systematics of Phasmida[D]. Athens: The University of Georgia, 2002. [12] ZOMPRO O. The Phasmatodea and Raptophasma n. gen., Orthoptera incertae sedis, in Baltic amber(Insecta: Orthoptera)[J]. Mitteilungen aus dem Geologisch-Paläontologischen Institut der Universität Hamburg, 2001, 85: 229-261. [13] BIRKET-SMITH S J R. A wing of Phasmida from the Cretaceous period (Insecta)[J]. Entomologica Scandinavica, 1981, 12: 245-249. doi: 10.1163/187631281794709872 [14] WHALLEY P E S. The systematics and palaeogeography of the lower Jurassic insects of Dorset, England[J]. Bulletin of the British Museum of Natural History, Geology, 1985, 39: 107-187. [15] NEL A, MARCHAL-PAPIER F, BÉTHOUX O, et al. A "stick insect-like" from the Triassic of the Vosges (France)(Insecta : "Phasmatodea ")[J]. Annales de la Société Entomologique de France, 2004, 40(1): 31-36. doi: 10.1080/00379271.2004.10697402 [16] NEL A, DELFOSSE E. A new Chinese Mesozoic stick insect[J]. Acta Palaeontologica Polonica, 2011, 56(2): 429-432. doi: 10.4202/app.2009.1108 [17] WEDMANN S, BRADLER S, RUST J. The first fossil leaf insect: 47 million years of specialized cryptic morphology and behavior[J]. Proceedings of the National Academy of Sciences of the United States of America, 2007, 104(6): 565-569. [18] POINAR G J R. A walking stick, Clonistria dominicana n. sp. (Phasmatodea: Diapheromeridae) in Dominican amber[J]. Historical Biology, 2011, 23: 223-226. doi: 10.1080/08912963.2010.522405 [19] ARCHIBALD S B, BRADLER S. Stem-group stick insects(Phasmatodea)in the early Eocene at McAbee, British Columbia, Canada, and Republic, Washington, United States of America[J]. Entomological Society of Canada, 2015, 147(6): 744-753. [20] 王茂民, 任东. 世界中生代竹节虫目昆虫化石研究[J]. 动物分类学报, 2013, 38(3): 626-633. https://www.cnki.com.cn/Article/CJFDTOTAL-DWFL201303032.htm [21] REN D, SHIH C K, GAO T P, et al. Rhythms of insect evolution: evidence from the Jurassic and Cretaceous in Northern China[M]. UK: John Wiley & Sons, 2019. [22] GAO T P, SHIH C K, REN D. Behaviors and interactions of insects in mid-Mesozoic ecosystems of Northeastern China[J]. Annual Review of Entomology, 2021, 66: 337-354. doi: 10.1146/annurev-ento-072720-095043 [23] 任东, 史宗冈, 高太平, 等. 昆虫演化的旋律: 来自中国北方侏罗纪和白垩纪的证据[M]. 郑州: 河南科学技术出版社, 2023. [24] REN D. First record of fossil stick-insects from China with analyses of some palaeobiological features (Phasmatodea: Hagiphasmatidae fam. nov. )[J]. Acta Zootaxonomica Sinica, 1997, 22(3): 268-282. [25] SHANG L J, BÉTHOUX O, REN D. New Stem-Phasmatodea from the Middle Jurassic of China[J]. European Journal of Entomology, 2011, 108: 677-685. doi: 10.14411/eje.2011.086 [26] WANG M M, BÉTHOUX O, BRADLER S, et al. Under cover at pre-angiosperm times: a cloaked phasmatodean insect from the Early Cretaceous Jehol Biota[J]. PLoS One, 2014, 9(3): e91290. doi: 10.1371/journal.pone.0091290 [27] CHEN S, ZHANG W W, SHIH C K, et al. Two new species of Archipseudophasmatidae (Insecta: Phasmatodea)from Upper Cretaceous Myanmar amber[J]. Cretaceous Research, 2017, 73: 65-70. doi: 10.1016/j.cretres.2017.01.007 [28] CHEN S, YIN X C, LIN X D, et al. Stick insect in Burmese amber reveals an early evolution of lateral lamellae in the Mesozoic[J]. Proceedings of the Royal Society B, 2018, 285: 20180425. doi: 10.1098/rspb.2018.0425 [29] CHEN S, DENG S W, SHIH C K, et al. The earliest timematids in Burmese amber reveal diverse tarsal pads of stick insects in the mid-Cretaceous[J]. Insect Science, 2019, 26(5): 945-957. doi: 10.1111/1744-7917.12601 [30] YANG H R, YIN X C, LIN X D, et al. Cretaceous winged stick insects clarify the early evolution of Phasmatodea[J]. Proceedings of the Royal Society B, 2019, 286: 20191085. doi: 10.1098/rspb.2019.1085 [31] YANG H R, SHI C F, ENGEL M S, et al. Early specializations for mimicry and defense in a Jurassic stick insect[J]. National Science Review, 2021, 8: nwaa056. doi: 10.1093/nsr/nwaa056 [32] YANG H R, ENGEL M S, ZHANG W W, et al. Mesozoic insect fossils reveal the early evolution of twig mimicry[J]. Science Bulletin, 2022, 67: 1641-1643. doi: 10.1016/j.scib.2022.07.007 [33] YANG H R, ENGEL M S, SHIH C K, et al. Independent wing reductions and losses among stick and leaf insects (Phasmatodea), supported by new Cretaceous fossils in amber[J]. BMC Biology, 2023, 21: 210. doi: 10.1186/s12915-023-01720-0 [34] WHITING M F, BRADLER S, MAXWELL T. Loss and recovery of wings in stick insects[J]. Nature, 2003, 421(6920): 264-267. doi: 10.1038/nature01313 [35] BRADLER S, BUCKLEY T R. Biodiversity of Phasmatodea[J]. Insect Biodiversity (Science and Society), 2018, 2: 281-313. [36] SIMON S, LETSCH H, BANK S, et al. Old world and new world Phasmatodea: phylogenomics resolve the evolutionary history of stick and leaf insects[J]. Frontiers in Ecology and Evolution, 2019, 7: 345. doi: 10.3389/fevo.2019.00345 [37] BRADLER S. Die Phylogenie der Stab- und Gespentschrecken(Insecta: Phasmatodea)[J]. Species, Phylogeny and Evolution, 2009, 2(1): 3-139. [38] ENDERLEIN G. Die fossilen Copeognathan und ihre phylogenie[J]. Palaentographica, 1911, 58: 279-360. [39] MARTINS-NETO R G. Primeiro registro de Phasmatodea(Insecta Orthopteromorpha)na Formacao Santana, Bacia do Araripe(Cretaceo Inferior), Nordeste do Brasil[J]. Acta Geologica Leopoldensia, 1989, 12: 91-104. [40] KUZMINA S A. New Orthoptera of the family Phasmomimida from the lower Cretaceous in Transbaikalia[J]. Paleontological Journal, 1985, 3: 56-63. [41] RICE H M A. An antlion(Neuroptera) and a stonefly (Plecoptera) of Cretaceous age from labrador, newfoundland[J]. Geological Survey of Canada, 1969, 44: 65-68. [42] XU C P, JARZEMBOWSKI E A, FANG Y. A new stick insect(Phasmatodea: Susumanioidea) from the Lower Cretaceous Wealden Group of southern England[J]. Cretaceous Research, 2020, 112: 104387. doi: 10.1016/j.cretres.2020.104387 [43] GHIROTTO V M, CRISPINO E B, CHIQUETTOMACHADO P I, et al. The oldest Euphasmatodea (Insecta, Phasmatodea) : modern morphology in an Early Cretaceous stick insect fossil from the Crato Formation of Brazil[J]. Papers Palaeontology, 2022, 8: e1437. doi: 10.1002/spp2.1437 [44] ENGEL M S, WANG B, ALQARNI A S. A thorny, 'anareolate' stick-insect (Phasmatidae sl) in Upper Cretaceous amber from Myanmar, with remarks on diversification times among Phasmatodea[J]. Cretaceous Research, 2016, 63: 45-53. doi: 10.1016/j.cretres.2016.02.015 [45] KEVAN D K, WIGHTON D. Paleocene Orthopteroids from south-central, Alberta, Canada[J]. Canadian Journal of Earth Sciences, 1981, 18: 1824-1837. doi: 10.1139/e81-170 [46] ZOMPRO O. Inter-and intra-ordinal relationships of the Mantophasmatodea, with comments on the phylogeny of polyneopteran orders (Insecta: Polyneoptera)[J]. Mitteilungen aus dem Geologisch-Paläontologischen Institut der Universität Hamburg, 2005, 89: 85-116. [47] BANK S, BRADLER S. A second view on the evolution of flight in stick and leaf insects (Phasmatodea)[J]. BMC Ecology and Evolution, 2022, 22: 62. doi: 10.1186/s12862-022-02018-5
