
Advances in chitin metabolic pathway and its regulatory mechanisms in insects
-
摘要: 几丁质是昆虫外骨骼、气管系统、唾液腺、围食膜以及翅原基等的重要结构性组分。几丁质代谢酶在几丁质的合成和降解过程中起重要作用,在发育过程中的精确表达,确保了昆虫几丁质合成及蜕皮等生理过程的正确发生。几丁质代谢途径不存在于植物和脊椎动物体内,因此几丁质代谢途径中的关键酶被认为是开发绿色农药的潜在作用靶标。本文综述了昆虫几丁质的代谢途径、代谢酶和代谢途径的调控,及其在害虫防治应用中存在的不足与研究前景,以期为昆虫几丁质代谢酶在害虫防治中更深入的研究和应用提供理论依据。Abstract: Chitin is an important structural component of insect exoskeleton, tracheal system, salivary gland, peritrophic membrane, wing hinges and so on. The chitin metabolism enzymes play a major role in the synthesis and degrade of chitin, and their precise expression during development ensures the correct occurrence of physiological processes such as chitin synthesis and molting in insects. Chitin metabolic pathway is not present in plant and vertebrate animals, so key enzymes in the chitin metabolic pathway are considered to be potential targets for designing new pesticides. This paper summarized the chitin metabolic pathways, the metabolism enzymes, and the regulation mechanism, as well as the shortcomings and research prospects in pest control, in order to provide a theoretical basis for the development and application of insect chitin metabolism enzymes in the field of pest management.
-
Keywords:
- chitin /
- chitin metabolism enzyme /
- molting /
- regulation /
- pest control
-
0. 引言
我国是一个农业大国,粮食安全是“国之大者”。近年来,我国农业害虫的种类不断增加,虫灾日益频繁,对我国国民经济造成了严重损失。目前,我国对害虫的防治主要还是以化学防治为主。各类化学农药的过度使用,促使害虫抗药性水平快速上升,导致害虫的防治效果越来越差,甚至造成恶性循环,对人类健康和粮食安全造成了严重的威胁。因此,探索绿色防控的新技术是目前亟待解决的关键问题之一。
几丁质是存在于昆虫、线虫、真菌和甲壳类动物体内的一类高分子聚合物,是昆虫外骨骼、气管系统、唾液腺、围食膜以及翅原基等的重要结构性组分。昆虫的成长发育和形态建成依赖于几丁质结构的可塑性,需要周期性地合成和降解几丁质来满足虫体生长发育和蜕皮的需求,而参与该代谢途径的酶包括几丁质合成酶和几丁质降解酶。几丁质生物合成途径不存在于植物和脊椎动物体内,因此几丁质代谢途径的关键酶被认为是潜在的、环境安全的且超高效的绿色农药靶标[1-2],在生物农药领域的应用前景极为广泛。
1. 昆虫几丁质代谢途径
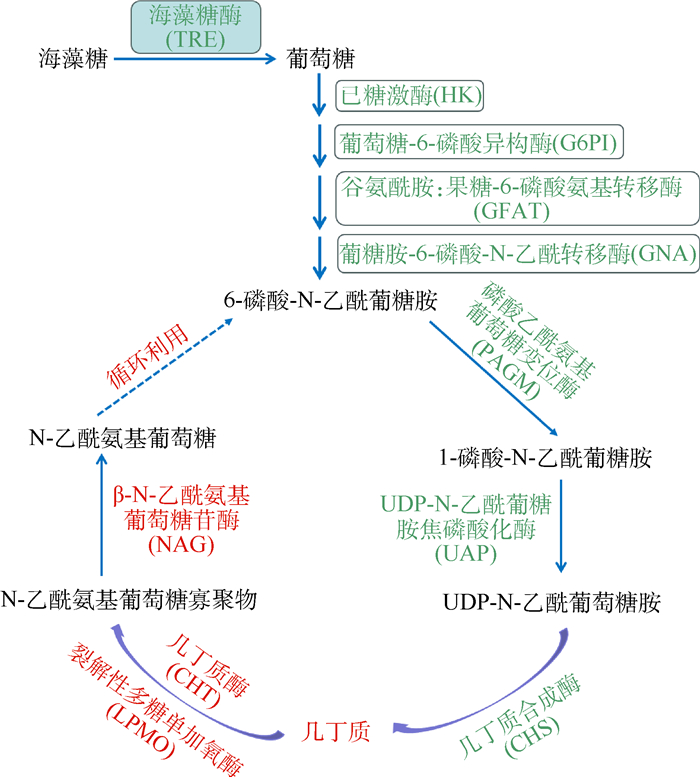
蜕皮是昆虫整个生命周期中的重要环节,在昆虫适应环境及抵御外界侵害等方面发挥了重要作用。昆虫由幼虫发育到成虫,必须经历定期脱去旧外骨骼并合成新外骨骼。这种周期性交替进行的过程是由几丁质合成酶和几丁质降解酶协同完成。昆虫几丁质的合成是以海藻糖为底物,在合成酶的催化下,生成几丁质[3]。昆虫几丁质的降解则主要在几丁质酶(chitinase,CHT)、β-N-乙酰氨基葡萄糖苷酶(β-N-acetylglucosaminidase,NAG)和其他协同酶的作用下,将几丁质最终降解为N-乙酰氨基葡萄糖(N-acetylglucosamine,GlcNAc)单体,这些游离的GlcNAc可以被真皮细胞重新吸收,并在沉积新表皮时再度用于几丁质的重建(图 1)[4]。
2. 几丁质代谢酶
昆虫的几丁质代谢途径是一类极其复杂的生理和生化过程。这个过程包括几丁质的合成和降解,其中涉及很多关键酶[1]。几丁质代谢途径中的这些关键酶的精确表达对于昆虫的生长和发育具有至关重要的作用(图 1和表 1[5-15])。
表 1 几丁质合成和降解酶蛋白类型 调节蛋白 来源物种(拉丁名) 作用 参考文献 几丁质合成酶 TRE 甜菜夜蛾(Spodoptera exigua) 催化海藻糖水解,生成葡萄糖 [5] HK 柑橘木虱(Diaphorina citri Kuwayama) 催化葡萄糖磷酸化,生成葡萄糖-6-磷酸 [6] G6PI 桔小实蝇(Bactrocera dorsalis) 催化葡萄糖-6-磷酸生成果糖-6-磷酸 [7] GFAT 飞蝗(Locusta migratoria) 催化果糖-6-磷酸与谷氨酰胺反应,生成D-葡萄糖胺-6-磷酸 [8] GNA 埃及伊蚊(Aedes aegypti) 催化D-葡萄糖胺-6-磷酸生成N-乙酰葡萄糖胺-6-磷酸 [9] PAGM 埃及伊蚊 催化N-乙酰葡萄糖胺-1-磷酸的生成 [10] UAP 赤拟谷盗(Tribolium castaneum) 催化UDP-N-乙酰葡萄糖胺的生成 [11] CHS 飞蝗 合成几丁质 [12] 几丁质降解酶 CHT 烟草天蛾(Manduca sexta) 水解几丁质,生成几丁寡糖 [13] NAG 烟草甲(Lasioderma serricorne) 催化几丁寡糖或二糖水解生成N-乙酰葡萄糖胺 [14] LPMO 飞蝗 催化晶态几丁质中糖苷键的氧化裂解,辅助CHT降解几丁质 [15] 2.1 几丁质合成酶
2.1.1 海藻糖酶(trehalase,TRE)
在昆虫几丁质合成途径中,第1个酶是TRE。昆虫中含有2种TRE,即可溶性TRE1和膜结合型TRE2。张文庆团队的Chen等[5]利用核糖核酸干扰(ribonucleic acid interference,RNAi)技术阐明了这2种TRE基因在甜菜夜蛾(Spodoptera exigua)几丁质合成途径中的不同功能,结果表明可溶性TRE基因SeTRE1的敲除显著抑制了几丁质合成酶A基因(chitin synthase gene A,CHS1)的表达,导致表皮几丁质的含量减少,约为对照的2/3;而注射膜结合型TRE基因SeTRE2的双链后,几丁质合成酶B基因(chitin synthase gene B,CHS2)的表达受到显著抑制,导致中肠围食膜中几丁质的含量下降了25.0%。张倩等[16]则利用饲喂双链RNA(double strand RNA,dsRNA)法研究了这2种TRE基因在灰飞虱(Laodelphax striatellus)中的不同功能,研究结果表明沉默其可溶性TRE基因LsTRE1和膜结合型TRE基因LsTRE2表达后,TRE的酶活力分别下降了25.3% 和25.1%,并且导致灰飞虱体质量减轻、生长发育受到抑制而死亡。昆虫体内合成几丁质时需要大量的葡萄糖,当抑制TRE基因的表达时,血淋巴运送葡萄糖的效率会迅速下降,从而抑制了昆虫的生长发育。综上所述,TRE通过海藻糖代谢调节昆虫能量代谢和葡萄糖生成,在昆虫几丁质合成、生长发育和飞行等过程中具有至关重要的作用。
2.1.2 己糖激酶(hexokinase,HK)
在昆虫几丁质合成途径中,第2个酶是HK,是糖酵解途径的第一个必需步骤,对于功能蛋白的合成具有非常重要的作用。HK在昆虫几丁质合成途径中的功能是催化己糖磷酸化,生成葡萄糖-6-磷酸[17]。杨珊[6]表明柑橘木虱(Diaphorina citri Kuwayama)HK基因DcHK在3龄若虫、成虫和马氏管中的表达最高,通过RNAi技术敲低DcHK的表达,导致柑橘木虱在给药36 h后死亡率高达26.1%,体质量减轻0.168 mg,并且在若虫期和成虫期的畸形率分别达到6.5% 和21.4%,远高于对照组,该结果为柑橘木虱RNAi控制病虫害提供研究新思路。
2.1.3 葡萄糖-6- 磷酸异构酶(glucose-6-phosphate isomerase,G6PI)
昆虫体内几丁质合成途径中的第3个酶是G6PI[7],其也是糖酵解途径的第2个酶。G6PI是一种二聚体酶,其功能是催化葡萄糖-6-磷酸与果糖-6-磷酸的可逆反应,在保证血糖的动态平衡方面起重要作用[18]。Gurney等[19]的研究表明G6PI不仅在几丁质合成的过程中发挥重要的催化作用,而且G6PI还具有细胞和生长因子的活性。
2.1.4 谷氨酰胺:果糖-6-磷酸氨基转移酶(glutamine:fructose-6-phosphate aminotransferase,GFAT)
GFAT是昆虫体内几丁质合成途径中的第4个酶[20]。马恩波和张建珍团队的张欢欢[8]使用基因克隆的方法获得GFAT基因序列,RNAi飞蝗(Locusta migratoria)中GFAT基因LmGFAT可导致其新旧表皮发生分离,不能顺利完成蜕皮过程。埃及伊蚊(Aedes aegypti)GFAT基因AeGFAT的RNAi表型与LmGFAT干扰的表型不同,将AeGFAT-1 dsRNA注射到2日龄埃及伊蚊中,AeGFAT-1的表达显著降低,且未观察到中肠围食膜的结构[21];RNAi沉默长角血蜱(Haemaphysalis longicornis)GFAT基因HlGFAT的表达,成年雌性的充血量显著减少,体质量显著减轻,推测原因可能是沉默HlGFAT的表达,抑制了长角血蜱角质层的生长和围食膜的形成[22]。以上研究结果表明,埃及伊蚊和长角血蜱中的GFAT基因更多参与了角质层的生长和中肠围食膜几丁质的形成,而飞蝗GFAT基因则对体壁几丁质的合成作用更显著。
2.1.5 葡糖胺-6-磷酸-N-乙酰转移酶(N-acetylglucosamine-6-phosphate,GNA)
GNA是昆虫体内几丁质合成途径中的第5个酶,催化葡糖胺-6-磷酸(GlcN6P)生成N-乙酰葡糖胺-6-磷酸(GlcNAc6P)。研究认为GNA基因在飞蝗表皮、脂肪体和肌肉中的表达量最高,并且在刚蜕皮后表皮中的表达量最高,之后逐渐降低;RNAi沉默后,GNA基因的表达显著降低,但是飞蝗的蜕皮和发育未受到影响,具体机制还需要进一步探索[8]。另外,在埃及伊蚊中也检测到GNA基因的表达[9]。
2.1.6 磷酸乙酰氨基葡萄糖变位酶(phosphoacetylglucosamine mutase,PAGM)
PAGM是昆虫体内几丁质合成途径中的第6个酶。Kato等[10]克隆得到了埃及伊蚊的PAGM基因AePAGM,并且认为该基因存在于埃及伊蚊生命周期的各个阶段;张政等[23]研究证实注射PAGM基因LmPAGM双链至飞蝗5龄若虫,LmPAGM的表达显著降低,导致约30.0% 飞蝗不能成功羽化,推测其在飞蝗的几丁质合成过程中发挥了重要作用;杨珊[6]首次克隆了柑橘木虱的PAGM基因,其在4龄若虫和脂肪体中的表达量最高;Mariappa等[24]认为在PAGM基因缺失的突变体果蝇(Drosophila)中,蛋白质的O-糖基化被切断,导致UDP-GlcNAc的合成减少,进而多种生命物质包括几丁质在内的合成不能正常进行。
2.1.7 UDP-N- 乙酰葡糖胺焦磷酸化酶(UDP-N-acetylglucosamine pyrophosphorylase,UAP)
UAP是生物体内一种普遍存在的酶,同时是几丁质合成途径中的第7个酶,昆虫中关于UAP的研究还很少,研究表明沉默赤拟谷盗(Tribolium castaneum)UAP基因TcUAP1的表达,可引起赤拟谷盗出现蜕皮困难现象,而RNAi沉默UAP基因TcUAP2的表达,会导致幼虫生长受到抑制和蛹羽化失败。经几丁质染色实验证实通过RNAi技术敲低TcUAP1的表达,导致赤拟谷盗围食膜几丁质的缺失,该研究结果表明TcUAP1参与几丁质的合成,而TcUAP2只影响幼虫和蛹的发育,但对几丁质的含量则没有影响[11],说明这2个基因除与几丁质合成有关之外,可能还参与蛋白质或者次级代谢物的糖基化。另外,近期的研究表明飞蝗UAP基因LmUAP1对其生长发育至关重要,沉默LmUAP1能引起飞蝗蜕皮困难死亡,这与RNAi沉默TcUAP1的表型比较相似,但沉默飞蝗UAP基因LmUAP2后,并不影响其蜕皮过程,这暗示了LmUAP2可能不参与表皮几丁质的合成,而是影响了其他生理功能[25]。
2.1.8 几丁质合成酶(chitin synthase,CHS)
CHS是昆虫体内几丁质合成途径中的第8个酶,是昆虫几丁质代谢途径中的关键酶,属于糖基转移酶家族。昆虫中存在2个CHS基因,包括CHS1和CHS2[26],其中CHS1的功能是参与形成表皮几丁质和气管几丁质,而CHS2的功能则与中肠围食膜几丁质的形成有关[27-28]。Zhang等[12]的研究表明飞蝗中存在2个CHS基因互补脱氧核糖核酸(complementary deoxyribonucleic acid,cDNA)的全长序列,当飞蝗CHS基因LmCHS1表达下调后,出现蜕皮时间延迟、蜕皮困难导致死亡,而沉默CHS基因LmCHS2表达后,中肠和胃盲囊的长度明显缩短,围食膜不完整或完全缺失。当沉默赤拟谷盗CHS基因TcCHS1表达后,出现蜕皮异常现象,敲低TcCHS1的表达将大大降低预蛹全身的几丁质含量;特异性的RNAi实验显示,TcCHS1的剪接体8a(splice variant 8a)在幼虫-蛹和蛹-成虫的蜕皮过程中都是必需的,而剪接体8b(splice variant 8b)只在蛹-成虫蜕皮过程中是必需的。RNAi赤拟谷盗CHS基因TcCHS2则对其变态和体内总几丁质含量没有影响,但是会导致其取食量减少,体型变小和中肠中几丁质含量降低[27]。此外,赤拟谷盗的研究认为其CHS基因TcCHS1和TcCHS2对成虫和卵的发育也非常重要,当将TcCHS1基因的dsRNA注射到羽化后7~10 d的成虫中,雌性能正常产卵,但是卵的几丁质含量显著降低,卵不能成功孵化。而沉默TcCHS2后,雌虫则不能正常产卵[29]。在甜菜夜蛾中,注射其CHS基因CHS1双链可以显著降低CHS1表达,幼虫出现表皮几丁质层形成紊乱、气管上皮不均匀扩张、蜕皮受阻等现象[30]。
2.2 几丁质降解酶
2.2.1 CHT
CHT是昆虫体内几丁质降解途径中的关键酶,属于糖苷水解酶18家族,其基因最初于1993年在烟草天蛾(Manduca sexta)中被发现[13]。近年来随着高通量测序技术的发展和测序成本的不断降低,越来越多的昆虫物种基因组完成了测序,不断完善了昆虫物种基因库,这使昆虫CHT基因的准确鉴定得以实现。基于CHT的序列和功能,Arakane和Muthukrishnan[31]将已报道的CHT分为了8个组(表 2)。Zhu等[32]使用RNAi技术对赤拟谷盗CHT基因的生物学功能进行了研究,表明3个CHT基因与赤拟谷盗发育有关:赤拟谷盗CHT基因TcCHT10对其整个生命周期都十分重要,沉默TcCHT10后,赤拟谷盗不能进入下个发育阶段;赤拟谷盗CHT基因TcCHT5在蛹到成虫的变态发育过程中起重要作用,沉默TcCHT5后蛹无法成功羽化;而其CHT基因TcCHT7则会影响成虫翅原基以及翅鞘的发育。张建珍团队的李大琪[33]采用RNAi技术证实飞蝗CHT基因LmCHT10对飞蝗每个发育龄期都至关重要,其沉默可导致旧表皮降解受阻,飞蝗因不能正常蜕皮而死亡。
表 2 赤拟谷盗几丁质酶的结构域组成[31]编号 信号肽 跨膜螺旋结构域 催化结构域 几丁质结合结构域 ST连接区 基因 Ⅰ 1 0 1 1 1 TcCHT5 Ⅱ 1 0 5 5 很多 TcCHT10 Ⅲ 0 1 2 1 0 TcCHT7 Ⅳ 1 0 1 0/1 0 TcCHT4、TcCHT8、TcCHT9、TcCHT12、TcCHT13、TcCHT14、TcCHT15、TcCHT16、TcCHT17、TcCHT18、TcCHT19、TcCHT20、TcCHT21和TcCHT22 Ⅴ 1 0 1 0 0 TcIDGF2、TcIDGF4 Ⅵ 1 0 1 1 1 TcCHT6 Ⅶ 1 0 1 0 1 TcCHT2 Ⅷ 0 1 1 0 0 TcCHT11 注:ST为富含丝氨酸/苏氨酸。 2.2.2 NAG
NAG是昆虫几丁质降解途径中的另一个关键酶,是几丁质酶系的重要成员。Hogenkamp等[34]采用RNAi技术沉默了赤拟谷盗4个NAG基因的表达,同时观察和记录幼虫-幼虫、幼虫-蛹、蛹-成虫蜕皮过程中的变化,证实4个NAG基因都能导致虫体发育迟缓,部分虫体因蜕皮困难而死亡;Rong等[35]对飞蝗NAG基因LmNAG1进行RNAi,表明2和5龄若虫中LmNAG1的沉默会导致其NAG总酶活性显著降低,飞蝗若虫不能成功蜕皮并最终死亡;Yang等[14]研究认为敲除烟草甲(Lasioderma serricorne)NAG基因LsNAG2的表达后,5龄若虫出现若虫-蛹蜕皮受阻,并且证实几丁质合成通路中的4个基因,包括LsTRE1、LsUAP1、LsUAP2和LsCHS1的表达也相应下调,而在晚期蛹中,LsNAG2的缺失会导致烟草甲无法成功羽化为成虫和翅的畸形。
2.2.3 裂解性多糖单加氧酶(lytic polysaccharide monooxygenase,LPMO)
LPMO是近年来在真菌和细菌中发现的几丁质降解途径中的一类新酶,其能够催化晶态几丁质中糖苷键的氧化裂解,辅助CHT降解几丁质,从而极大地提高了几丁质的降解效率。研究表明LPMO(如LPMO15)可能参与协助生长和发育过程中外骨骼、气管和围食膜几丁质的降解[15, 36]。昆虫中LPMO15可分为3个家族,其中I家族LPMO15基因LPMO15-1主要在昆虫蜕皮过程的表皮和气管系统中高表达,杨青团队的Qu等[36]利用RNAi技术沉默LPMO15-1的表达,导致东亚飞蝗和赤拟谷盗在蜕皮过程中表皮几丁质层无法有效降解而死亡。Ⅲ家族LPMO15基因LPMO15-3则在昆虫蜕皮过程的中肠中高表达。对LPMO15-3进行RNAi实验,结果表明东亚飞蝗在蜕皮过程中由于中肠中围食膜不能得到有效降解而死亡[15]。该研究结果革新了人们对昆虫几丁质降解途径的认识,为指导筛选昆虫潜在的绿色农药新靶标提供重要的科学依据。
3. 昆虫几丁质代谢途径的调控
昆虫几丁质代谢酶基因的表达具有组织和发育阶段上的特异性,表明几丁质代谢酶基因在体内受到了严密的调控,其精确的调控和表达对于维持昆虫正常的生长和发育是不可或缺的,如几丁质代谢酶表达异常,则导致昆虫无法正常合成几丁质,虫体因蜕皮异常而死亡。
3.1 激素调控
昆虫的个体发育、变态和繁殖等过程会受到多种内分泌激素的协同调控,几丁质代谢酶是蜕皮过程中的关键酶,与激素的调节密切相关。目前,有关昆虫几丁质代谢酶基因调控的研究大多集中在激素调节方面,主要有蜕皮激素(20-hydroxyecdysone,20E)和保幼激素(juvenile hormone,JH)2类。
昆虫体内20E的滴度会影响几丁质代谢途径中许多酶的表达和活性。Gagou等[37]研究认为果蝇CHS基因DmeCHS1和DmeCHS2的表达与生长发育密切相关,同时这2种基因的表达随着20E含量的减少而增加,在3龄末期和化蛹前2 h几乎检测不到DmeCHS1和DmeCHS2的表达,但是在化蛹后3 h时DmeCHS2的表达显著升高,在化蛹后8 h时DmeCHS1的表达达到最高,而此时20E的表达量则降到最低,由此推测,DmeCHS1和DmeCHS2是受20E调控的。Tellam等[38]表明CHS基因DmCHS1起始密码子上游约500 bp的区域,可能包含2个启动子和1个20E反应元件,该研究结果证实20E可以调节CHS的转录。另外,将20E加入到人工饲料中饲喂5龄期云杉卷叶蛾(Choristoneura fumiferana)幼虫,显示20E能够在早期(< 4 h)起到抑制云杉卷叶蛾CHS基因CfCHS1表达的作用[39]。在甜菜夜蛾中,20E受体EcR基因可以调控几丁质合成途径基因的表达,当抑制EcR基因的表达,会导致表皮中几丁质含量显著降低,引起昆虫蜕皮异常而死亡,同时几丁质合成途径中SeTRE1、SeG6PI、SeUAP、SeCHS1和SeCHS2共5种基因的表达水平也显著降低,而体内注射20E后可诱导这5种基因的表达[40]。另外一项研究显示在亚洲玉米螟(Ostrinia furnacalis)中,注射20E也可以激活其CHS基因的表达[41]。在果蝇中,20E能抑制其成虫盘中几丁质的合成以及前表皮蛋白的表达[42]。上述研究结果反映了20E在正、反2个方面的双重调节效应。另外,20E能够促进果蝇和烟草天蛾CHS基因在气管中的表达[26, 43-44],表明在不同组织中可能存在不同的响应20E的元件。埃及伊蚊AeGFAT基因的调控区包含20E的顺式作用元件E74和BR-C,推测埃及伊蚊GFAT可能在几丁质生物合成和围食膜形成中起调控作用,并可能受到20E的调控[45]。Zen等[46]研究认为烟草天蛾中NAG基因在表皮和中肠中高表达,且在成虫第6~7天时表达水平最高,推测该酶可能受到20E的调控。
相反地,JH会拮抗20E信号,抑制几丁质酶基因的表达,从而阻碍变态的发生[47]。李胜团队的Liu等[48]证实JH在果蝇前胸腺中通过其受体MET/ GCE及其初级反应基因Kr-h1阻碍20E合成的正反馈调控,同时抑制前胸腺细胞生长,导致20E合成受到抑制,变态发生受阻。
3.2 转录因子调控
蜕皮是昆虫整个生命周期中的重要环节,受到蜕皮激素的精密调控。转录因子是20E信号通路的关键应答基因,从而调控了昆虫蜕皮期新表皮合成以及蜕皮的正常进行。Bray和Kafatos[49]表明Grainy head(Grh)是一个进化上保守的CP2型转录因子,Grh基因的突变会导致胚胎死亡,并伴有表皮层紊乱等缺陷,突变表型分析结果表明Grh在果蝇表皮分化中起非常重要的作用。Gangishetti等[50]认为Grh基因能够调控表皮形成因子knk和pio基因的表达,而几丁质修饰和组装因子rtv、verm和serp基因的表达则受到20E信号通路的调控;过表达Grh基因可以增强kkv基因(CHS基因的同源基因)的转录水平,进一步通过软件预测显示kkv基因的启动子区有6个Grh转录因子的结合位点,将Grh和kkv基因一同转染至HEK293细胞,荧光素酶活性显著增强,由此得出果蝇Grh转录因子可以调控CHS基因的表达。
3.3 小分子核糖核酸(microRNA,miRNA)调控
miRNA首次在秀丽隐杆线虫(Caenorhabditis elegans)中被发现[51],是生物体生命活动中重要的调控因子,在基因转录后水平的调控中起着重要作用,因此推测miRNA可能也参与了昆虫几丁质的代谢途径。Agrawal等[52]研究显示miR-24抑制了棉铃虫(Helicoverpa armigera)CHT基因的表达,导致几丁质的合成减少,引起蜕皮异常;Chen等[53]认为在20E激素信号的作用下,miR-8-5p和miR-2a-3p负调控了褐飞虱(Nilaparvata lugens)几丁质合成通路中TRE和PAGM基因的表达,从而引起几丁质的合成减少,导致褐飞虱蜕皮困难;康乐院士团队的Yang等[54]表明miR-71和miR-263能对几丁质代谢途径的CHS基因CHS1和CHT基因CHT10起调控作用,引起新表皮合成和旧表皮降解双重受阻,导致飞蝗蜕皮发育异常而死亡。
3.4 全基因组层面探究几丁质代谢的分子机制
除激素、转录因子以及miRNA对几丁质代谢的调控外,有关昆虫几丁质代谢的正、负调控元件以及相关影响网络和分子机制目前还不清楚。Yue等[55]通过基于细胞的RNAi筛选技术在全基因组范围内,获得了537个影响果蝇几丁质合成的调控元件,接着在转基因果蝇体内进行RNAi实验验证,最终确定了6个调控几丁质合成酶kkv基因的调控因子,特别是Fer3蛋白,其可以与kkv启动子特异性结合来激活kkv基因的转录,从而调控昆虫气管的发育。王云[56]基于时序性转录组(RNA-sequencing,RNA-seq)和ATAC-seq(assay for transposase accessible chromatin with high-throughout sequencing)等多组学数据,获得了2个调控新表皮形成的关键因子Bmftz-f1(nuclear hormone receptor ftz-f1)和BmCEBP(CCAAT/enhancer-binding protein),暗示二者可能参与了新表皮的形成。总之,全基因组层面的研究将为探究几丁质合成和降解的分子机制开辟新的途径。
4. 讨论
昆虫的生长发育和形态建成依赖于几丁质结构的可塑性。因此,昆虫以一定的规律不断地合成和降解几丁质,来保证昆虫蜕皮的顺利完成和围食膜的再生。针对昆虫几丁质合成与降解途径,抑制或者反调节其关键酶,将其作为害虫防治的重要靶标,可为害虫的有效防控提供新的思路和手段。目前的研究中仍存在一些不足:尽管昆虫体内几丁质合成和降解途径的大部分相关酶都已经明确,但是对于昆虫中几丁质生物合成和降解途径的研究仍不是特别透彻;对于几丁质合成和降解途径中调控网络的认识依然有限,关键调控因子的确定以及调控因子间的相互作用关系依然是研究的难点,关键调控因子调控蜕皮相关酶的级联通路仍处于空白的状态。
几丁质生物合成和降解途径关键酶在害虫绿色防治方面具有广阔的应用前景。主要集中体现在2个方面:一方面,昆虫几丁质合成和降解途径酶的抑制剂作为生物杀虫剂越来越受到关注。目前,关于几丁质代谢酶抑制剂的研究大多集中在几个关键酶上[57-60],主要涉及几丁质合成酶(如TRE、CHS)、降解酶(如CHT)和修饰酶(如几丁质脱乙酰酶(chitin deacetylase,CDA))。近年来,随着几丁质代谢相关酶结构的不断解析[61],基于几丁质合成和降解酶的结构精准设计抑制其活性的小分子化合物可以作为绿色杀虫剂,表现出巨大的市场应用前景。另一方面,昆虫几丁质合成和降解途径酶作为RNAi的靶标基因应用于害虫防治。已有研究表明通过注射或饲喂几丁质代谢途径关键酶的dsRNA,都可以降低昆虫几丁质的含量。然而,由于不同昆虫中的几丁质代谢酶基因的RNAi效率不同,以及在重要害虫中的效率较低,阻碍了RNAi在害虫防治中的广泛应用。为了提高RNAi效率,研究人员开发了多种技术[62-63]:(1)通过喷洒dsRNA到受感染的农作物上,从而特异性抑制昆虫中基因的表达;(2)使用dsRNA/纳米颗粒可以帮助dsRNA免受dsRNA降解酶(dsRNases)的降解,促进dsRNA通过昆虫肠道上皮,从而提高RNAi效率;(3)利用特异性细菌和病毒等微生物表达dsRNA,当昆虫摄入这些表达dsRNA的微生物后抑制靶基因的表达。RNAi技术的多样性必将推动昆虫几丁质代谢途径关键酶在害虫防治中的应用。另外,随着RNAi技术在害虫防控应用研究的不断发展,RNAi介导的转基因作物在抗虫方面也表现出巨大的应用前景,转基因植物介导RNA沉默的害虫控制被称为“新型杀虫剂”。选择昆虫特异的几丁质代谢途径关键酶基因作为抗虫靶标,可提高转基因作物的抗虫效果、靶标专一性和环境安全性。随着人们对昆虫几丁质代谢途径研究的不断深入,几丁质代谢途径关键酶的转基因作物将为植物抗虫育种以及虫害的有效防控提供新的思路和方法。
综上所述,针对昆虫几丁质合成和降解途径关键酶开发用于虫害防治的药物,在农业害虫绿色防控中具有巨大的应用潜力。为了促进昆虫几丁质代谢酶的应用,本文提出了几点策略:首先,继续加强对昆虫几丁质代谢酶的功能认识和晶体结构的解析,开展有助于深化昆虫几丁质代谢酶抑制剂的基础研究;其次,加强对昆虫几丁质合成和降解途径的分子调控网络的探索,为筛选潜在的杀虫剂作用靶标提供新思路和新方法;最后,利用dsRNA/纳米颗粒、特异性细菌和病毒等微生物表达dsRNA以及转基因植物介导RNA沉默等,开发控制害虫和病毒媒介的RNAi方法,找到抑制目标害虫的靶标基因,提高RNAi的效率。
5. 结束语
昆虫几丁质代谢途径是一类极其复杂的生理和生化过程。代谢酶基因的精确调控和表达对于维持昆虫正常的生长发育是至关重要的。由于植物和脊椎动物体内不存在几丁质代谢途径,因此几丁质代谢途径中的关键酶被认为是开发绿色农药的潜在作用靶标。基于几丁质代谢途径关键酶在害虫绿色防控中的应用可以通过2种方式实现:一是昆虫几丁质代谢途径关键酶的抑制剂作为生物杀虫剂;二是植物介导的昆虫几丁质代谢途径关键酶的RNAi或者直接体外喷洒关键酶的dsRNA。但是目前还面临一些问题,比如对于昆虫几丁质合成和降解途径中调控网络的研究仍不是特别透彻。但随着昆虫几丁质合成和降解途径关键酶研究的不断深入,将进一步推动以昆虫几丁质代谢关键酶为靶标的新型绿色农药的设计与开发,为农业害虫绿色防控提供全新视角。
-
表 1 几丁质合成和降解酶
蛋白类型 调节蛋白 来源物种(拉丁名) 作用 参考文献 几丁质合成酶 TRE 甜菜夜蛾(Spodoptera exigua) 催化海藻糖水解,生成葡萄糖 [5] HK 柑橘木虱(Diaphorina citri Kuwayama) 催化葡萄糖磷酸化,生成葡萄糖-6-磷酸 [6] G6PI 桔小实蝇(Bactrocera dorsalis) 催化葡萄糖-6-磷酸生成果糖-6-磷酸 [7] GFAT 飞蝗(Locusta migratoria) 催化果糖-6-磷酸与谷氨酰胺反应,生成D-葡萄糖胺-6-磷酸 [8] GNA 埃及伊蚊(Aedes aegypti) 催化D-葡萄糖胺-6-磷酸生成N-乙酰葡萄糖胺-6-磷酸 [9] PAGM 埃及伊蚊 催化N-乙酰葡萄糖胺-1-磷酸的生成 [10] UAP 赤拟谷盗(Tribolium castaneum) 催化UDP-N-乙酰葡萄糖胺的生成 [11] CHS 飞蝗 合成几丁质 [12] 几丁质降解酶 CHT 烟草天蛾(Manduca sexta) 水解几丁质,生成几丁寡糖 [13] NAG 烟草甲(Lasioderma serricorne) 催化几丁寡糖或二糖水解生成N-乙酰葡萄糖胺 [14] LPMO 飞蝗 催化晶态几丁质中糖苷键的氧化裂解,辅助CHT降解几丁质 [15] 表 2 赤拟谷盗几丁质酶的结构域组成[31]
编号 信号肽 跨膜螺旋结构域 催化结构域 几丁质结合结构域 ST连接区 基因 Ⅰ 1 0 1 1 1 TcCHT5 Ⅱ 1 0 5 5 很多 TcCHT10 Ⅲ 0 1 2 1 0 TcCHT7 Ⅳ 1 0 1 0/1 0 TcCHT4、TcCHT8、TcCHT9、TcCHT12、TcCHT13、TcCHT14、TcCHT15、TcCHT16、TcCHT17、TcCHT18、TcCHT19、TcCHT20、TcCHT21和TcCHT22 Ⅴ 1 0 1 0 0 TcIDGF2、TcIDGF4 Ⅵ 1 0 1 1 1 TcCHT6 Ⅶ 1 0 1 0 1 TcCHT2 Ⅷ 0 1 1 0 0 TcCHT11 注:ST为富含丝氨酸/苏氨酸。 -
[1] COHEN E. Chitin synthesis and inhibition: a revisit[J]. Pest Management Science, 2001, 57(10): 946-950. doi: 10.1002/ps.363 [2] MERZENDORFER H. The cellular basis of chitin synthesis in fungi and insects: common principles and differences[J]. European Journal of Cell Biology, 2011, 90(9): 759-769. doi: 10.1016/j.ejcb.2011.04.014 [3] CANDY D J, KILBY B A. Studies on chitin synthesis in the desert locust[J]. Journal of Experimental Biology, 1962, 39(1): 129-140. doi: 10.1242/jeb.39.1.129 [4] 李春春, 苟玉萍, 张克信, 等. 昆虫几丁质酶及其应用研究综述[J]. 中国生物防治学报, 2022, 38(4): 1020-1029. https://www.cnki.com.cn/Article/CJFDTOTAL-ZSWF202204031.htm [5] CHEN J, TANG B, CHEN H X, et al. Different functions of the insect soluble and membrane-bound trehalase genes in chitin biosynthesis revealed by RNA interference[J]. PLoS One, 2010, 5(4): e10133. doi: 10.1371/journal.pone.0010133 [6] 杨珊. 柑橘木虱几丁质合成关键基因的表达和功能研究[D]. 南昌: 南昌大学, 2022. [7] 陈力. 桔小实蝇几丁质合成通路上3个基因的cDNA克隆及功能分析[D]. 重庆: 西南大学, 2013. [8] 张欢欢. 飞蝗GFAT和GNA的分子特性及生物学功能研究[D]. 太原: 山西大学, 2012. [9] KATO N, MUELLER C R, WESSELY V, et al. Mosquito glucosamine-6-phosphate N-acetyltransferase: cDNA, gene structure and enzyme kinetics[J]. Insect Biochemistry and Molecular Biology, 2005, 35(6): 637-646. doi: 10.1016/j.ibmb.2005.02.005 [10] KATO N, MUELLER C R, WESSELY V, et al. Aedes aegypti phosphohexomutases and uridine diphosphatehexose pyrophosphorylases: comparison of primary sequences, substrate specificities and temporal transcription[J]. Insect Molecular Biology, 2010, 14(6): 615-624. [11] ARAKANE Y, BAGUINON M C, JASRAPURIA S, et al. Both UDP N-acetylglucosamine pyrophosphorylases of Tribolium castaneum are critical for molting, survival and fecundity[J]. Insect Biochemistry and Molecular Biology, 2011, 41(1): 42-50. doi: 10.1016/j.ibmb.2010.09.011 [12] ZHANG J, LIU X, ZHANG J, et al. Silencing of two alternative splicing-derived mRNA variants of chitin synthase 1 gene by RNAi is lethal to the oriental migratory locust, Locusta migratoria manilensis (Meyen)[J]. Insect Biochemistry and Molecular Biology, 2010, 40(11): 824-833. doi: 10.1016/j.ibmb.2010.08.001 [13] KRAMER K J, CORPUZ L, CHOI H K, et al. Sequence of a cDNA and expression of the gene encoding epidermal and gut chitinases of Manduca sexta[J]. Insect Biochemistry and Molecular Biology, 1993, 23(6): 691-701. doi: 10.1016/0965-1748(93)90043-R [14] YANG W J, XU K K, YAN X, et al. Knockdown of β-N-acetylglucosaminidase 2 impairs molting and wing development in Lasioderma serricorne (Fabricius)[J]. Insects, 2019, 10(11): 396. doi: 10.3390/insects10110396 [15] QU M B, GUO X X, KONG L, et al. A midgut-specific lytic polysaccharide monooxygenase of Locusta migratoria is indispensable for the deconstruction of the peritrophic matrix[J]. Insect Science, 2022, 29(5): 1287-1298. doi: 10.1111/1744-7917.13016 [16] 张倩, 鲁鼎浩, 蒲建, 等. 灰飞虱海藻糖酶基因的克隆及RNA干扰效应[J]. 昆虫学报, 2012, 55(8): 911-920. https://www.cnki.com.cn/Article/CJFDTOTAL-KCXB201208004.htm [17] WILSON J E. An introduction to the isoenzymes of mammalian hexokinase types Ⅰ-Ⅲ[J]. Biochemical Society Transactions, 1997, 25 (1): 103-107. doi: 10.1042/bst0250103 [18] MERKLE S, PRETSCH W. Glucose-6-phosphate isomerase deficiency associated with nonspherocytic hemolytic anemia in the mouse: an animal model for the human disease[J]. Blood, 1993, 81 (1): 206-213. doi: 10.1182/blood.V81.1.206.206 [19] GURNEY M E, HEINRICH S P, LEE M R, et al. Molecular cloning and expression of neuroleukin, a neurotrophic factor for spinal and sensory neurons[J]. Science, 1986, 234 (4776): 566-574. doi: 10.1126/science.3764429 [20] DURAND P, GOLINELLI-PIMPANEAU B, MOUILLERON S, et al. Highlights of glucosamine-6P synthase catalysis[J]. Archives of Biochemistry and Biophysics, 2008, 474(2): 302-317. doi: 10.1016/j.abb.2008.01.026 [21] KATO N, MUELLER C R, FUCHS J F, et al. Regulatory mechanisms of chitin biosynthesis and roles of chitin in peritrophic matrix formation in the midgut of adult Aedes aegypti[J]. Insect Biochemistry and Molecular Biology, 2006, 36(1): 1-9. doi: 10.1016/j.ibmb.2005.09.003 [22] HUANG X, TSUJI N, MIYOSHI T, et al. Characterization of glutamine: fructose-6-phosphate aminotransferase from the ixodid tick, Haemaphysalis longicornis, and its critical role in host blood feeding[J]. International Journal for Parasitology, 2007, 37(3/4): 383-392. [23] 张政, 张学尧, 张建珍, 等. 飞蝗磷酸乙酰氨基葡萄糖变位酶基因表达及功能[J]. 山西大学学报(自然科学版), 2019, 42(4): 929-934. https://www.cnki.com.cn/Article/CJFDTOTAL-SXDR201904031.htm [24] MARIAPPA D, SAUERT K, MARINO K, et al. Protein O-GlcNAcylation is required for fibroblast growth factor signaling in Drosophila[J]. Science Signaling, 2011, 4(204): ra89. [25] LIU X J, LI F, LI D Q, et al. Molecular and functional analysis of UDP-N-acetylglucosamine pyrophosphorylases from the migratory locust, Locusta migratoria[J]. PLoS One, 2013, 8(8): e71970. doi: 10.1371/journal.pone.0071970 [26] MERZENDORFER H. Insect chitin synthases: a review[J]. Journal of Comparative Physiology B, 2006, 176: 1-15. doi: 10.1007/s00360-005-0005-3 [27] ARAKANE Y, MUTHUKRISHNAN S, KRAMER K J, et al. The Tribolium chitin synthase genes TcCHS1 and TcCHS2 are specialized for synthesis of epidermal cuticle and midgut peritrophic matrix[J]. Insect Molecular Biology, 2005, 14(5): 453-463. doi: 10.1111/j.1365-2583.2005.00576.x [28] ZIMOCH L, HOGENKAMP D G, KRAMER K J, et al. Regulation of chitin synthesis in the larval midgut of Manduca sexta[J]. Insect Biochemistry and Molecular Biology, 2005, 35(6): 515-527. doi: 10.1016/j.ibmb.2005.01.008 [29] ARAKANE Y, SPECHT C A, KRAMER K J, et al. Chitin synthases are required for survival, fecundity and egg hatch in the red flour beetle, Tribolium castaneum[J]. Insect Biochemistry and Molecular Biology, 2008, 38(10): 959-962. doi: 10.1016/j.ibmb.2008.07.006 [30] CHEN X F, TIAN H G, ZOU L Z, et al. Disruption of Spodoptera exigua larval development by silencing chitin synthase gene A with RNA interference[J]. Bulletin of Entomological Research, 2008, 98(6): 613-619. doi: 10.1017/S0007485308005932 [31] ARAKANE Y, MUTHUKRISHNAN S. Insect chitinase and chitinase-like proteins[J]. Cellular and Molecular Life Sciences, 2010, 67(2): 201-216. doi: 10.1007/s00018-009-0161-9 [32] ZHU Q S, ARAKANE Y, BEEMAN R W, et al. Functional specialization among insect chitinase family genes revealed by RNA interference[J]. Proceedings of the National Academy of Sciences of the United States of America, 2008, 105(18): 6650-6655. [33] 李大琪. 飞蝗几丁质酶家族基因功能及RNAi介导的害虫防治应用研究[D]. 太原: 山西大学, 2016. [34] HOGENKAMP D G, ARAKANE Y, KRAMER K J, et al. Characterization and expression of the beta-N-acetylhexosaminidase gene family of Tribolium castaneum[J]. Insect Biochemistry and Molecular Biology, 2008, 38(4): 478-489. doi: 10.1016/j.ibmb.2007.08.002 [35] RONG S, LI D Q, ZHANG X Y, et al. RNA interference to reveal roles of beta-N-acetylglucosaminidase gene during molting process in Locusta migratoria[J]. Insect Science, 2013, 20(1): 109-119. doi: 10.1111/j.1744-7917.2012.01573.x [36] QU M, GUO X, TIAN S, et al. AA15 lytic polysaccharide monooxygenase is required for efficient chitinous cuticle turnover during insect molting[J]. Communications Biology, 2022, 5(1): 518. doi: 10.1038/s42003-022-03469-8 [37] GAGOU M E, KAPSETAKI M, TURBERG A, et al. Stage-specific expression of the chitin synthase DmeCHSA and DmeCHSB genes during the onset of Drosophila metamorphosis[J]. Insect Biochemistry and Molecular Biology, 2002, 32(2): 141-146. doi: 10.1016/S0965-1748(01)00101-1 [38] TELLAM R L, VUOCOLO T, JOHNSON S E, et al. Insect chitin synthase cDNA sequence, gene organization and expression[J]. European Journal of Biochemistry, 2000, 267(19): 6025-6043. doi: 10.1046/j.1432-1327.2000.01679.x [39] AMPASALA D R, ZHENG S, ZHANG D, et al. An epidermis-specific chitin synthase cDNA in Choristoneura fumiferana: cloning, characterization, developmental and hormonal-regulated expression[J]. Archives of Insect Biochemistry and Physiology, 2011, 76(2): 83-96. doi: 10.1002/arch.20404 [40] YAO Q, ZHANG D W, TANG B, et al. Identification of 20-hydroxyecdysone late-response genes in the chitin biosynthesis pathway[J]. PLoS One, 2010, 5(11): e14058. doi: 10.1371/journal.pone.0014058 [41] QU M, YANG Q. Physiological significance of alternatively spliced exon combinations of the single-copy gene class A chitin synthase in the insect Ostrinia furnacalis(Lepidoptera)[J]. Insect Molecular Biology, 2012, 21(4): 395-404. doi: 10.1111/j.1365-2583.2012.01145.x [42] APPLE R T, FRISTROM J W. 20-Hydroxyecdysone is required for, and negatively regulates, transcription of Drosophila pupal cuticle protein genes [J]. Developmental Biology, 1991, 146(2): 569-582. doi: 10.1016/0012-1606(91)90257-4 [43] HIRUMA K, HARDIE J, RIDDIFORD L M. Hormonal regulation of epidermal metamorphosis in vitro: control of expression of a larval-specific cuticle gene[J]. Developmental Biology, 1991, 144(2): 369-378. doi: 10.1016/0012-1606(91)90429-7 [44] DEVINE W P, LUBARSKY B, SHAW K, et al. Requirement for chitin biosynthesis in epithelial tube morphogenesis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(47): 17014-17019. [45] KATO N, DASGUPTA R, SMARTT C T, et al. Glucosamine: fructose-6-phosphate aminotransferase: gene characterization, chitin biosynthesis and peritrophic matrix formation in Aedes aegypti[J]. Insect Molecular Biology, 2002, 11(3): 207-216. doi: 10.1046/j.1365-2583.2002.00326.x [46] ZEN K C, CHOI H K, KRISHNAMACHARY N, et al. Cloning, expression, and hormonal regulation of an insect beta-N-acetylglucosaminidase gene[J]. Insect Biochemistry and Molecular Biology, 1996, 26(3): 435-444. [47] 王艳丽. 飞蝗miRNA的合成及对表皮代谢相关基因的调控机制研究[D]. 太原: 山西大学, 2017. [48] LIU S N, LI K, GAO Y, et al. Antagonistic actions of juvenile hormone and 20-hydroxyecdysone within the ring gland determine developmental transitions in Drosophila[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(1): 139-144. [49] BRAY S J, KAFATOS F C. Developmental function of Elf-1: an essential transcription factor during embryogenesis in Drosophila[J]. Genes Development, 1991, 5(9): 1672-1683. doi: 10.1101/gad.5.9.1672 [50] GANGISHETTI U, VEERKAMP J, BEZDAN D, et al. The transcription factor grainy head and the steroid hormone ecdysone cooperate during differentiation of the skin of Drosophila melanogaster[J]. Insect Molecular Biology, 2012, 21(3): 283-295. doi: 10.1111/j.1365-2583.2012.01134.x [51] ROSALIND C L, RHONDA L F, VICTOR A. The C. elegans heterochronic gene lin-4 encodes small RNAs with antisense complementarity to lin-14[J]. Cell, 1993, 75(5): 843-854. doi: 10.1016/0092-8674(93)90529-Y [52] AGRAWAL N, SACHDEV B, RODRIGUES J, et al. Development associated profiling of chitinase and microRNA of Helicoverpa armigera identified chitinase repressive microRNA[J]. Scientific Reports, 2013, 3: 2292. doi: 10.1038/srep02292 [53] CHEN J, LIANG Z K, LIANG Y K, et al. Conserved microRNAs miR-8-5p and miR-2a-3p modulate chitin biosynthesis in response to 20-hydroxyecdysone signaling in the brown planthopper, Nilaparvata lugens[J]. Insect Biochemistry and Molecular Biology, 2013, 43(9): 839-848. doi: 10.1016/j.ibmb.2013.06.002 [54] YANG M L, WANG Y L, JIANG F, et al. miR-71 and miR-263 jointly regulate target genes chitin synthase and chitinase to control locust molting[J]. PLoS Genetic, 2016, 12(8): e1006257. doi: 10.1371/journal.pgen.1006257 [55] YUE X Z, LIANG Y K, WEI Z S, et al. Genome-wide in vitro and in vivo RNAi screens reveal Fer3 to be an important regulator of kkv transcription in Drosophila[J]. Insect Science, 2022, 29(3): 614-630. doi: 10.1111/1744-7917.12954 [56] 王云. 家蚕幼虫蜕皮过程的分子调控机制研究[D]. 重庆: 重庆大学, 2022. [57] 师东梅, 蒋志洋, 邹雪君, 等. 海藻糖酶结构及其抑制剂的农用活性研究[J]. 农药学学报, 2022, 24(5): 1017-1033. https://www.cnki.com.cn/Article/CJFDTOTAL-NYXB202205009.htm [58] YU A, BECK M, MERZENDORFER H, et al. Advances in understanding insect chitin biosynthesis[J]. Insect Biochemistry and Molecular Biology, 2024, 164: 104058. doi: 10.1016/j.ibmb.2023.104058 [59] 张婧瑜, 韩清, 蒋志洋, 等. 几丁质酶抑制剂及噻唑烷酮类化合物合成与农用活性研究进展[J]. 农药学学报, 2021, 23(3): 421-437. https://www.cnki.com.cn/Article/CJFDTOTAL-NYXB202103002.htm [60] 徐欢, 何祺, 崔佳琳, 等. 几丁质脱乙酰酶的生物学功能、三维结构及其抑制剂的研究进展[J]. 农药学学报, 2024, 26(2): 211-223. https://www.cnki.com.cn/Article/CJFDTOTAL-NYXB202402001.htm [61] CHEN W, CAO Y, LIU Y S, et al. Structural basis for directional chitin biosynthesis[J]. Nature, 2022, 610(7931): 402-408. doi: 10.1038/s41586-022-05244-5 [62] PALLI S R. RNAi turns 25: contributions and challenges in insect science[J]. Frontiers in Insect Science, 2023, 3: 1209478. doi: 10.3389/finsc.2023.1209478 [63] ZAND K H, INNES R W. Molecular mechanisms underlying host-induced gene silencing[J]. Plant Cell, 2022, 34(9): 3183-3199. doi: 10.1093/plcell/koac165
 下载:
